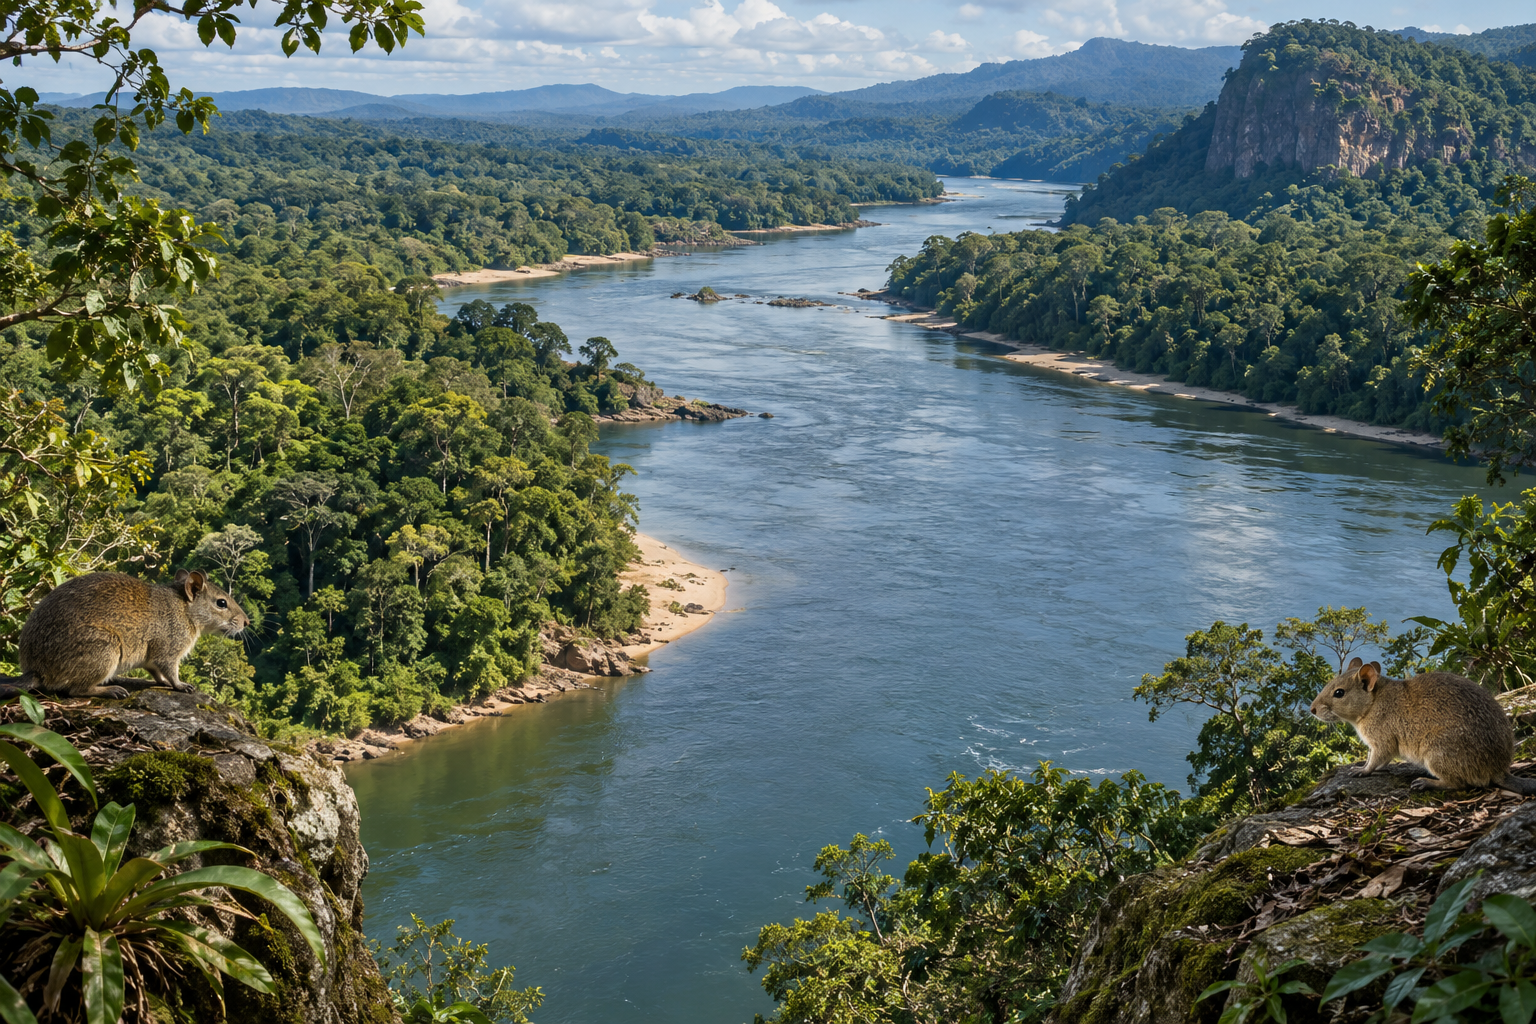
No museu, o esqueleto de uma baleia tem dois ossinhos soltos perto da cauda e a radiografia da asa de um morcego mostra os mesmos ossos da mão humana. O que esses dois fatos permitem concluir sobre parentesco, o que não permitem, e como uma única espécie de roedor separada por um rio pode virar duas?
O que você vai aprender
Explicar por que a ancestralidade comum é sustentada pela convergência de linhas de evidência independentes e por previsões testáveis, e limitar cada conclusão ao que o dado autoriza.
Definir fóssil como qualquer vestígio preservado (mineralizado, molde, icnofóssil, âmbar, congelado), descrever como se forma e explicar por que o registro é incompleto e enviesado, sem deixar de documentar a sequência das formas no tempo.
Distinguir datação relativa (superposição, fósseis-guia) de absoluta (meia-vida) e calcular a idade de um resto orgânico pelo carbono-14 (meia-vida de 5 730 anos, limite de cerca de 50 mil anos), sabendo quando usar potássio-argônio e urânio-chumbo.
Reconhecer formas de transição (Archaeopteryx, Tiktaalik, Pakicetus, Ambulocetus, cavalos) e explicar por que as expressões elo perdido e fóssil vivo são inadequadas.
Classificar pares de estruturas como homólogas, análogas ou vestigiais a partir da origem e da função, e relacionar homologia a ancestral comum, analogia a convergência e estrutura vestigial a herança com perda de função.
Interpretar semelhanças embrionárias (arcos faríngeos, notocorda, cauda) como evidência de ancestralidade comum, rejeitando a ideia de que o embrião humano tem brânquias ou repete estágios adultos de ancestrais.
Ler a distribuição geográfica (linha de Wallace, marsupiais e Mesosaurus em Gondwana, endemismo de ilhas) como registro histórico e distinguir vicariância de dispersão.
Usar evidências moleculares: código genético quase universal, comparação de sequências, relógio molecular (converter diferenças em tempo), identidade humano-chimpanzé (98,8 % e 96 %, conforme o critério), fusão do cromossomo 2, pseudogenes e retrovírus endógenos.
Citar casos de evolução observada (tentilhões de Daphne Major, E. coli de Lenski, Biston betularia, linhagem híbrida isolada em três gerações) e situar a espécie humana como prima dos chimpanzés, sem raças biológicas.
Enunciar o conceito biológico de espécie e seus limites, e classificar barreiras reprodutivas em pré-zigóticas (habitat, temporal, comportamental, mecânica, gamética) e pós-zigóticas (inviabilidade, esterilidade, degeneração do híbrido), explicando a esterilidade da mula pelos 63 cromossomos.
Descrever a especiação alopátrica na ordem correta (barreira, divergência por seleção, deriva e mutação, isolamento reprodutivo) e a simpátrica (poliploidia, mudança de hospedeiro, seleção sexual), com radiação adaptativa, zonas híbridas, reforço e espécies em anel.
Resolver itens que exigem leitura de coluna estratigráfica, tabela de diferenças moleculares, árvore com escala de tempo e mapa biogeográfico, e identificar os erros clássicos que os itens exploram.
Num museu de história natural, o esqueleto de uma baleia pende do teto. Perto da cauda, soltos, há dois ossinhos que não se articulam com nada. Na sala ao lado, a radiografia da asa de um morcego mostra um úmero, dois ossos de antebraço, um punho e cinco dedos compridos, os mesmos ossos da mão de quem olha. E um painel conta que, há cerca de 3 milhões de anos, o istmo do Panamá fechou a passagem entre o Atlântico e o Pacífico e dividiu em duas as populações de peixes e camarões que viviam ali; hoje, de cada lado, vive uma espécie parecida o bastante para ser confundida com a do outro lado e diferente o bastante para não se cruzar mais com ela.
Os três painéis respondem a duas perguntas. A primeira é como se reconhece um parentesco antigo: os ossinhos da baleia são a pelve que os ancestrais terrestres dela usavam para andar, e a asa do morcego é a mesma mão de um ancestral mamífero, esticada e coberta de pele. Nenhum projeto feito do zero repetiria esse esqueleto numa asa e numa nadadeira; herdar o plano de um ancestral comum e modificá-lo é a explicação econômica. A segunda pergunta é como uma espécie vira duas: uma população dividida por uma barreira, cada metade seguindo o próprio caminho por tempo suficiente, até que o cruzamento entre elas deixe de produzir descendentes férteis.
Esta página percorre as duas perguntas. Começa pelo que conta como evidência em uma ciência histórica; apresenta os fósseis, como se formam, como se datam e o que o registro deixa de fora, com as formas de transição e os fósseis brasileiros; compara a anatomia e os embriões de espécies diferentes e separa homologia, analogia e estruturas vestigiais; lê a distribuição geográfica dos seres vivos como um mapa da história; chega às evidências moleculares, do código genético ao cromossomo 2 humano; mostra a evolução observada em tempo de vida humana; e termina com a espécie, as barreiras reprodutivas e os modos de especiação, com a leitura dos dados e os erros que os itens de prova exploram. As teorias que explicam o mecanismo da mudança (Lamarck, Darwin, síntese moderna) estão em teorias evolutivas; a montagem e a leitura formal de cladogramas, em taxonomia e sistemática; a origem da primeira célula, em origem da vida; as organelas com DNA próprio como evidência, em endossimbiose; as mutações, que fornecem a variação, em mutações.
O que conta como evidência: linhas independentes que apontam para o mesmo lado
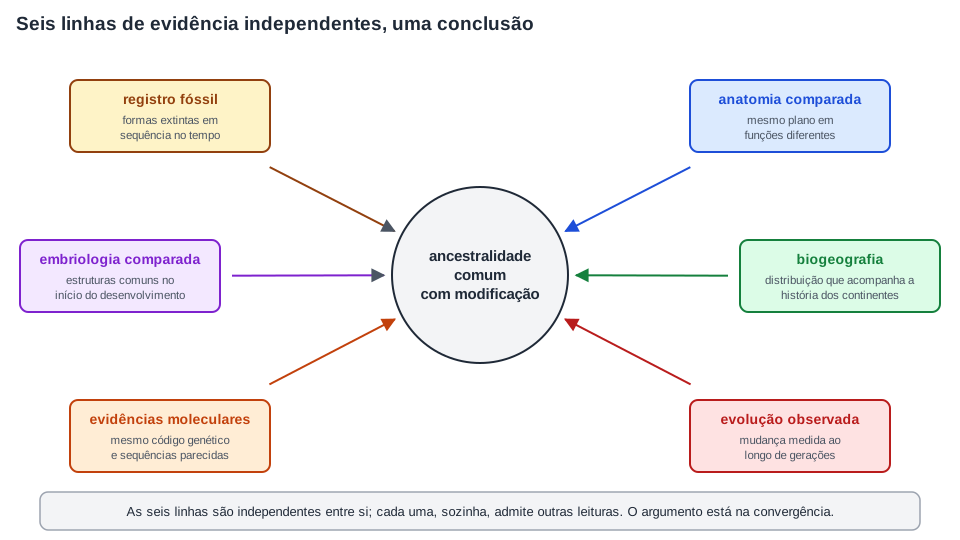
Ninguém assistiu à separação entre a linhagem dos morcegos e a dos primatas. A evolução é, em grande parte, uma ciência histórica, e uma ciência histórica trabalha como um perito criminal: não refaz o evento, reúne vestígios deixados por ele e pergunta qual explicação dá conta de todos ao mesmo tempo. Uma única pista pode ter mais de uma leitura. Seis pistas de naturezas diferentes que apontam para a mesma resposta já não.
É isso que torna a ancestralidade comum uma conclusão sólida, e não uma opinião. O registro fóssil, a anatomia comparada, a embriologia, a distribuição geográfica das espécies, a comparação de moléculas e a evolução observada em laboratório e no campo são linhas independentes: os ossos de um fóssil não dependem da sequência de DNA de uma espécie viva, e a posição de um continente não depende do desenho de um embrião. Quando a comparação de proteínas, feita nos anos 1960, produziu árvores de parentesco que coincidiam com as árvores construídas um século antes a partir de esqueletos, a coincidência pedia explicação, e a explicação era a mesma para as duas: descendência com modificação a partir de ancestrais comuns.
Seis linhas de evidência, uma conclusão. Cada caixa é um tipo de dado colhido de modo independente dos outros; o argumento não está em nenhuma delas isoladamente, e sim na convergência. Diagrama autoral.
Há um segundo traço de ciência nessa história: a teoria faz previsões que poderiam dar errado. Se as aves descendem de répteis, deve haver, em rochas de idade intermediária, animais com penas e dentes, cauda longa com vértebras e dedos com garras nas asas; o primeiro esqueleto de Archaeopteryx, encontrado em 1861 na Alemanha, tinha tudo isso. Se os tetrápodes descendem de peixes, deve haver, em rochas do Devoniano, um peixe com nadadeiras que começam a parecer membros; Tiktaalik roseae, encontrado no Ártico canadense em 2004 e descrito em 2006, tinha ombro, cotovelo e punho rudimentares dentro da nadadeira. Se humanos e chimpanzés descendem de um ancestral comum e nós temos um par de cromossomos a menos, dois cromossomos do ancestral devem ter se fundido em um dos nossos, e a marca da fusão deve estar lá; está, no cromossomo 2. Uma afirmação que não arrisca nada não é testada por nada; a ancestralidade comum arriscou muito e foi confirmada muitas vezes. A relação entre hipótese, previsão e teste está discutida, para a primeira célula, em origem da vida.
Evidência histórica e o que ela permite afirmar
Um fóssil, uma homologia ou uma sequência de DNA são dados; a ancestralidade comum é a explicação que os organiza. A conclusão só vale até onde os dados a autorizam. Um fóssil mostra que um organismo existia em dado intervalo de tempo e lugar; não diz, por si, por que a espécie se extinguiu. Uma semelhança anatômica indica parentesco quando é herdada do mesmo ancestral; não indica nada quando resulta de pressões parecidas em linhagens independentes. Uma porcentagem de identidade entre dois genomas mede uma distância; não transforma duas espécies em uma. Boa parte dos erros em itens de prova consiste em esticar a conclusão além do que o dado autoriza.
Essa regra tem um nome nos itens de prova: quando o enunciado começa com “infere-se do texto” ou “conclui-se do texto”, a resposta tem de estar sustentada pelas linhas impressas, não pelo que a biologia explicaria em tese. Em 2013, o PAS 3 apresentou um texto sobre a descoberta de um mamute congelado na Sibéria e propôs, no item 31, que se inferia do texto que a extinção dos mamutes se devera à seleção natural; o texto não dizia palavra sobre a causa da extinção. Gabarito E (o item está na lista de exercícios desta página). Em 2018, o item 84 de um bloco sobre a fauna sul-americana antiga trazia, como opção, que os dinossauros e os animais do texto foram extintos por seleção natural; o texto também não dizia isso. A opção estava errada pelo mesmo motivo.
Fósseis: o que são, como se formam e o que o registro deixa de fora
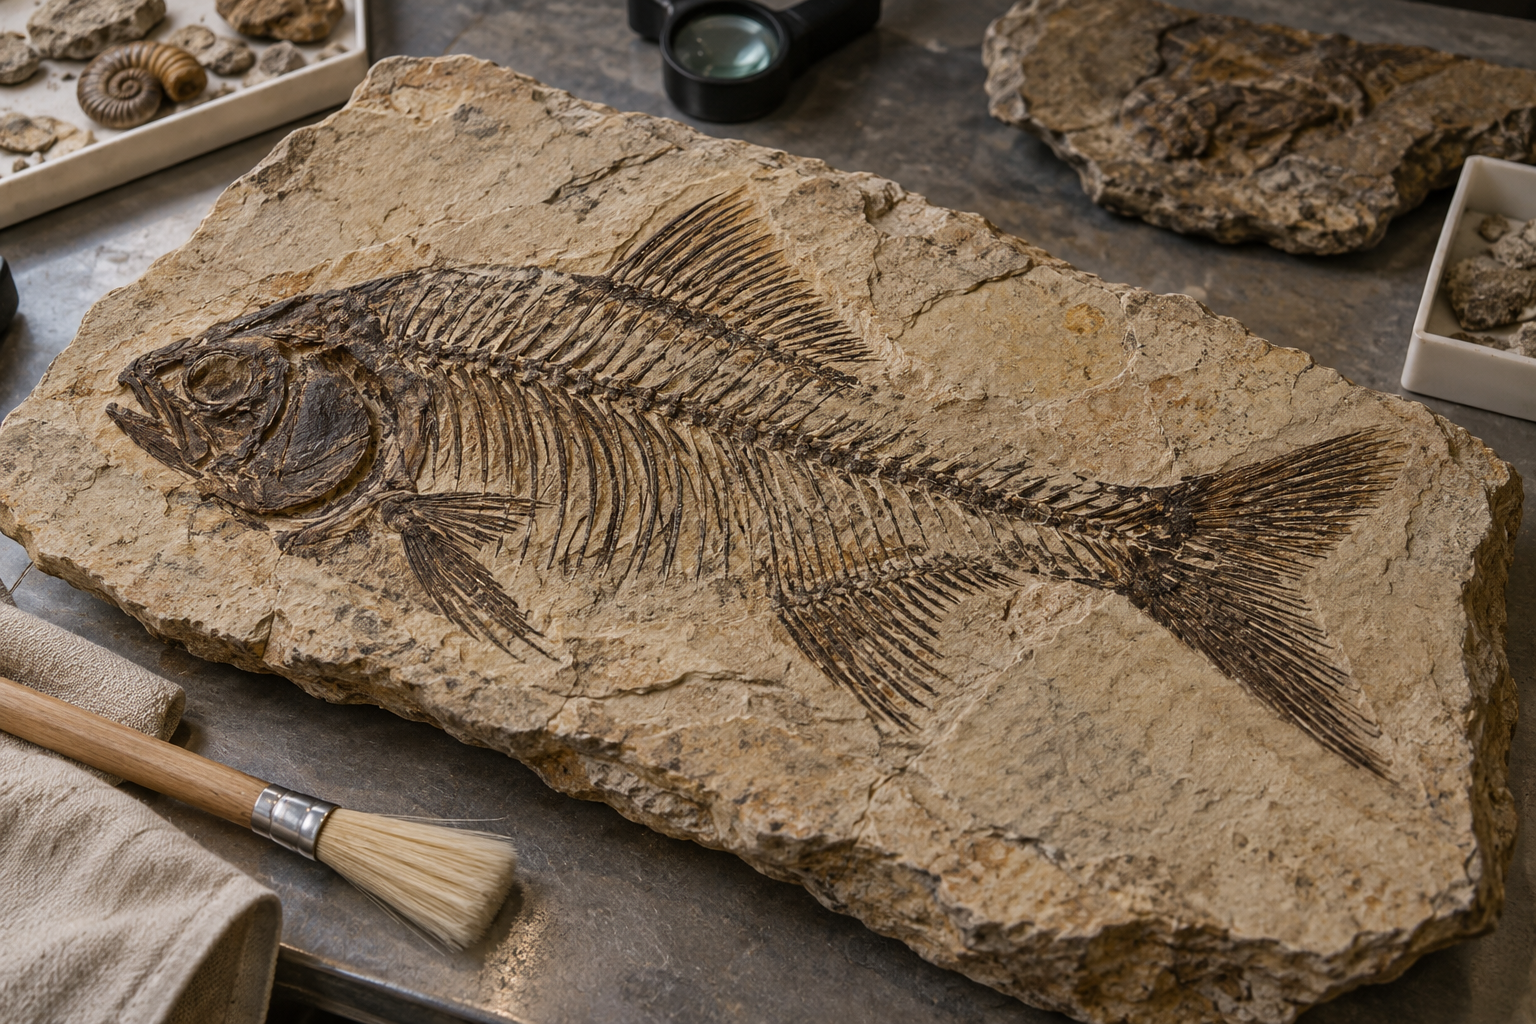
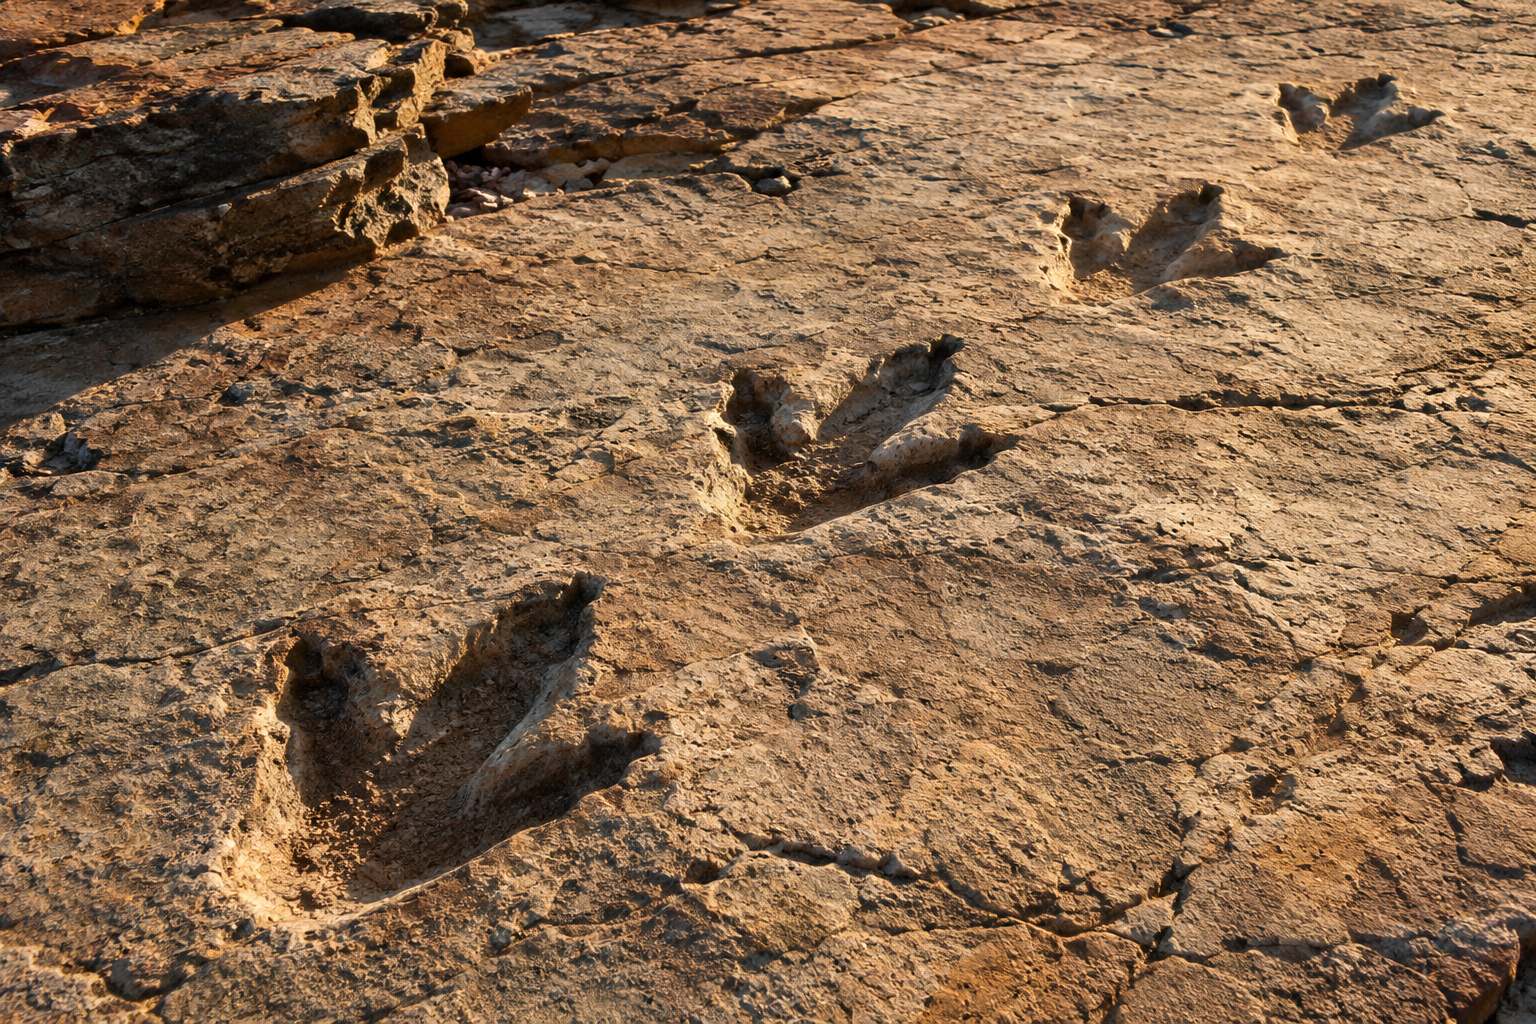
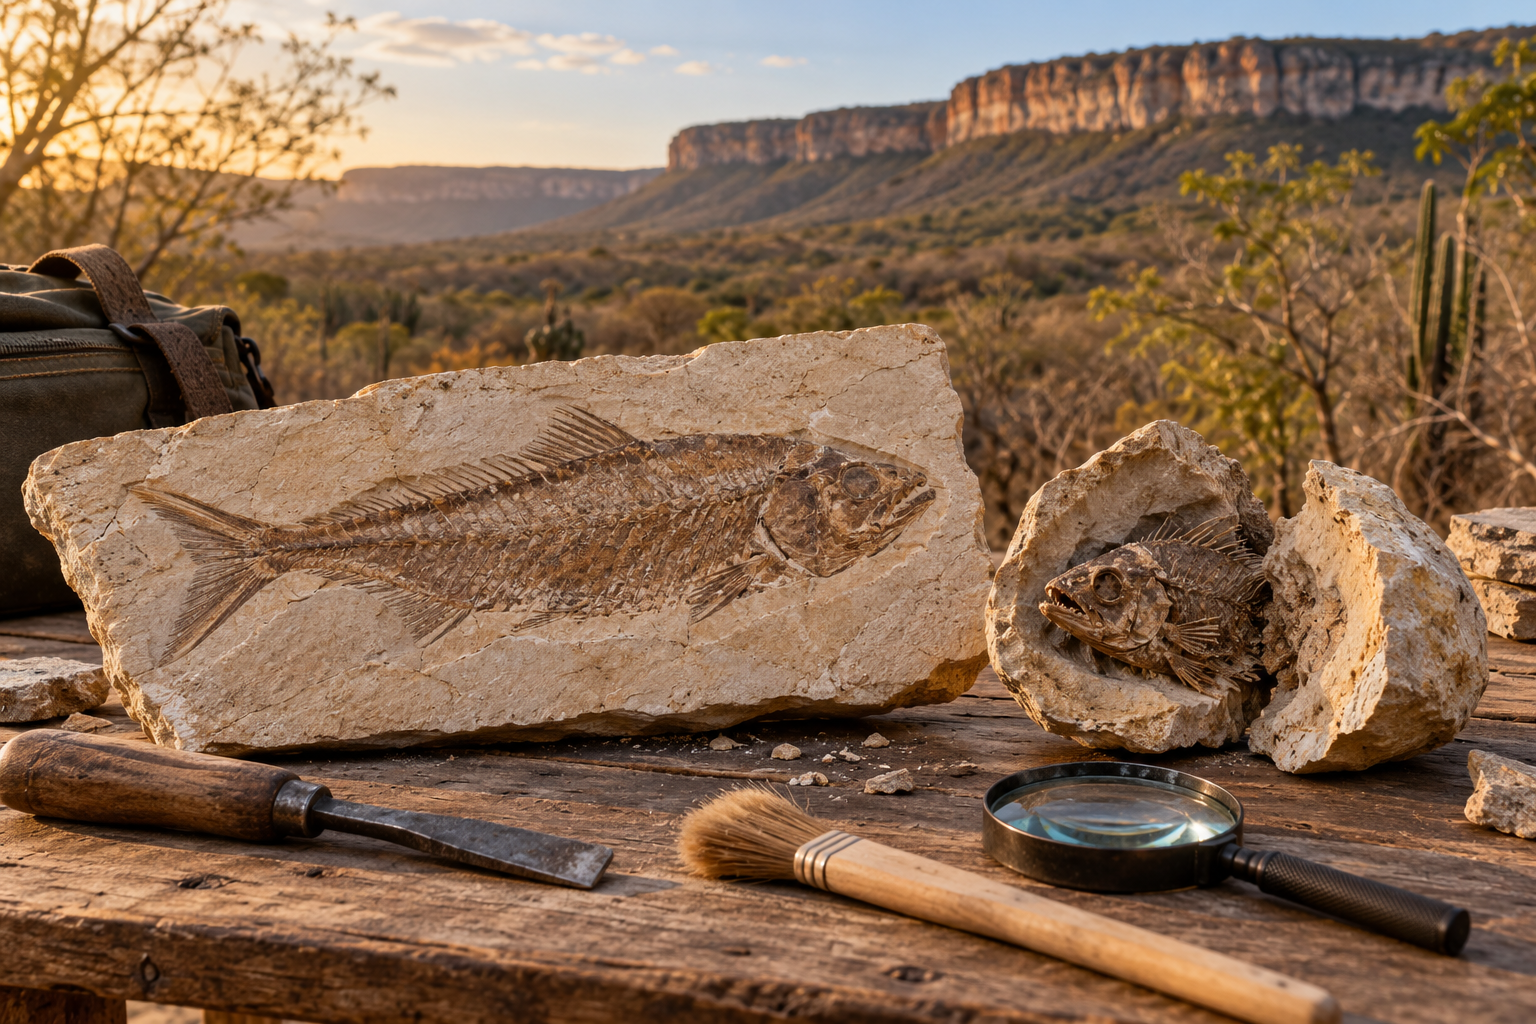
Fóssil é qualquer vestígio de organismo do passado geológico preservado de modo natural: ossos e dentes mineralizados, conchas, troncos petrificados, mas também moldes e contramoldes, impressões de folhas e penas, pegadas, tocas, fezes fossilizadas, insetos presos em âmbar, corpos congelados no permafrost e corpos mumificados em desertos ou turfeiras. A mineralização é um dos caminhos de preservação, não a definição. Um mamute congelado há dezenas de milhares de anos, com pele e músculo, é um fóssil; um dinossauro reduzido a osso de pedra também.
A distinção decide itens. Em 2013, o PAS 3 afirmou que os restos de um mamute congelado “não podem ser referidos como fóssil, porque, como se infere das informações do texto, o material biológico do mamute ainda não se tornara material mineral” (item 32). Gabarito E: fóssil é vestígio, e o congelamento preserva tanto quanto a petrificação. Em 2018, a opção correta de um item de múltipla escolha (item 84) dizia que dentes e fragmentos ósseos são exemplos de fósseis, assim como moldes do corpo, rastros e pegadas. Gabarito D, pela definição.
Como um organismo vira fóssil
A fossilização é exceção, não regra. O caminho mais comum começa com um enterramento rápido: um corpo coberto depressa por sedimento (lama de rio, areia de delta, cinza vulcânica, lodo de lago) escapa de ser comido, pisoteado e decomposto ao ar. Depois vêm as transformações. Na permineralização, água rica em minerais dissolvidos (sílica, carbonato de cálcio, pirita) infiltra os poros do osso ou da madeira e precipita neles; o material original fica, com os espaços preenchidos. Na substituição, o material original é dissolvido e trocado, molécula a molécula, por mineral. Quando o corpo se dissolve por inteiro e deixa a cavidade com o seu formato na rocha, fica um molde; se a cavidade depois se preenche, forma-se um contramolde. Pegadas, rastros, tocas e fezes são icnofósseis, registros de atividade, e não do corpo. Âmbar (resina endurecida), gelo e turfa preservam tecidos moles porque isolam o corpo do oxigênio e dos decompositores. Em todos os casos, o que se preserva depende de três fatores: partes duras preservam melhor que moles; ambientes aquáticos de sedimentação rápida preservam melhor que florestas; e a rocha precisa chegar até hoje sem ser destruída pela erosão ou pelo metamorfismo.
Esses três fatores explicam por que o registro fóssil é incompleto e enviesado. Há muito mais conchas de moluscos marinhos do que pássaros de floresta tropical, muito mais ossos do que medusas, muito mais espécies das últimas centenas de milhões de anos do que dos primeiros bilhões. A lacuna não é um defeito da teoria; é uma propriedade esperada do processo, e a teoria a prevê. O que o registro mostra, apesar das lacunas, é uma sequência: nas camadas mais antigas, só procariontes; depois células eucarióticas; depois animais de corpo mole, depois com conchas, depois peixes, depois os primeiros tetrápodes, depois répteis, depois mamíferos e aves, e os primatas por último. Nenhum coelho jamais apareceu numa rocha do Cambriano. A ordem é a mesma em qualquer continente, e é a ordem que a árvore da vida reconstruída por outros métodos exige.
"O registro fóssil é incompleto, logo não prova nada"
O argumento inverte o raciocínio. Um registro incompleto que mostrasse formas fora de ordem (um mamífero no Cambriano, uma flor no Devoniano) derrubaria a árvore. Um registro incompleto em que tudo o que aparece está na ordem prevista, e em que cada forma de transição procurada em rochas de idade intermediária aparece exatamente lá, é evidência forte. A incompletude limita o detalhe (não sabemos cada passo), não a conclusão (sabemos a direção). Em prova, a frase correta diz que o registro é incompleto por causa das condições de fossilização e mesmo assim documenta a sequência das formas no tempo; a frase errada diz que a incompletude o torna inútil ou que o registro é completo.
Uma última palavra de vocabulário: extinção é o desaparecimento de uma espécie inteira, quando o último indivíduo morre sem deixar descendentes. Não é a morte de um indivíduo. Em 2008, o PAS 3 afirmou que “extinção é um termo utilizado em evolução para se referir a um indivíduo que morreu em decorrência de seleção natural” (item 101). Gabarito E: a escala está trocada (indivíduo em vez de espécie) e a causa foi inventada (a extinção não tem causa única). O mesmo cuidado vale para a evolução: populações evoluem; indivíduos nascem, vivem e morrem com o genoma que receberam.
Quanto tempo faz: datação relativa e datação absoluta
Dizer que uma forma veio antes de outra exige saber a idade das rochas. Há dois tipos de resposta, e os itens de prova cobram os dois.
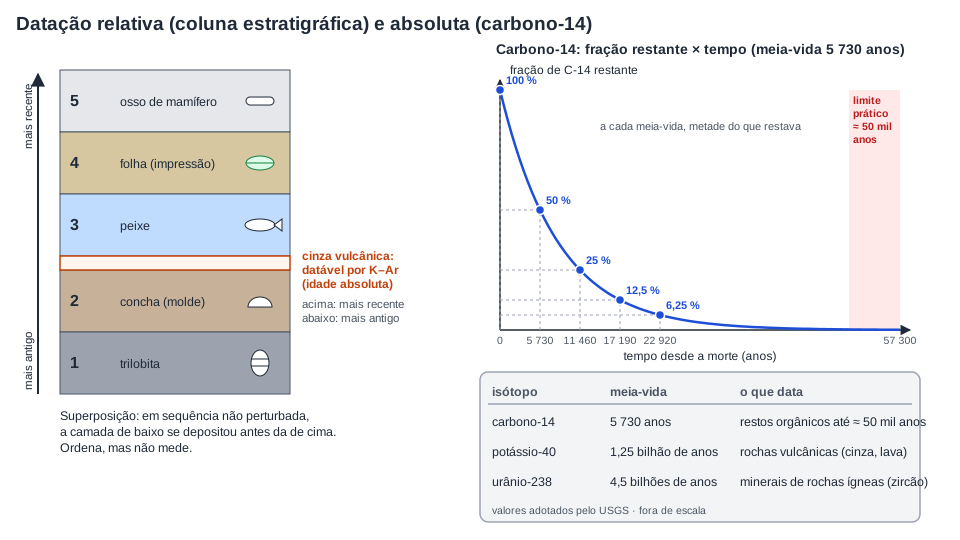
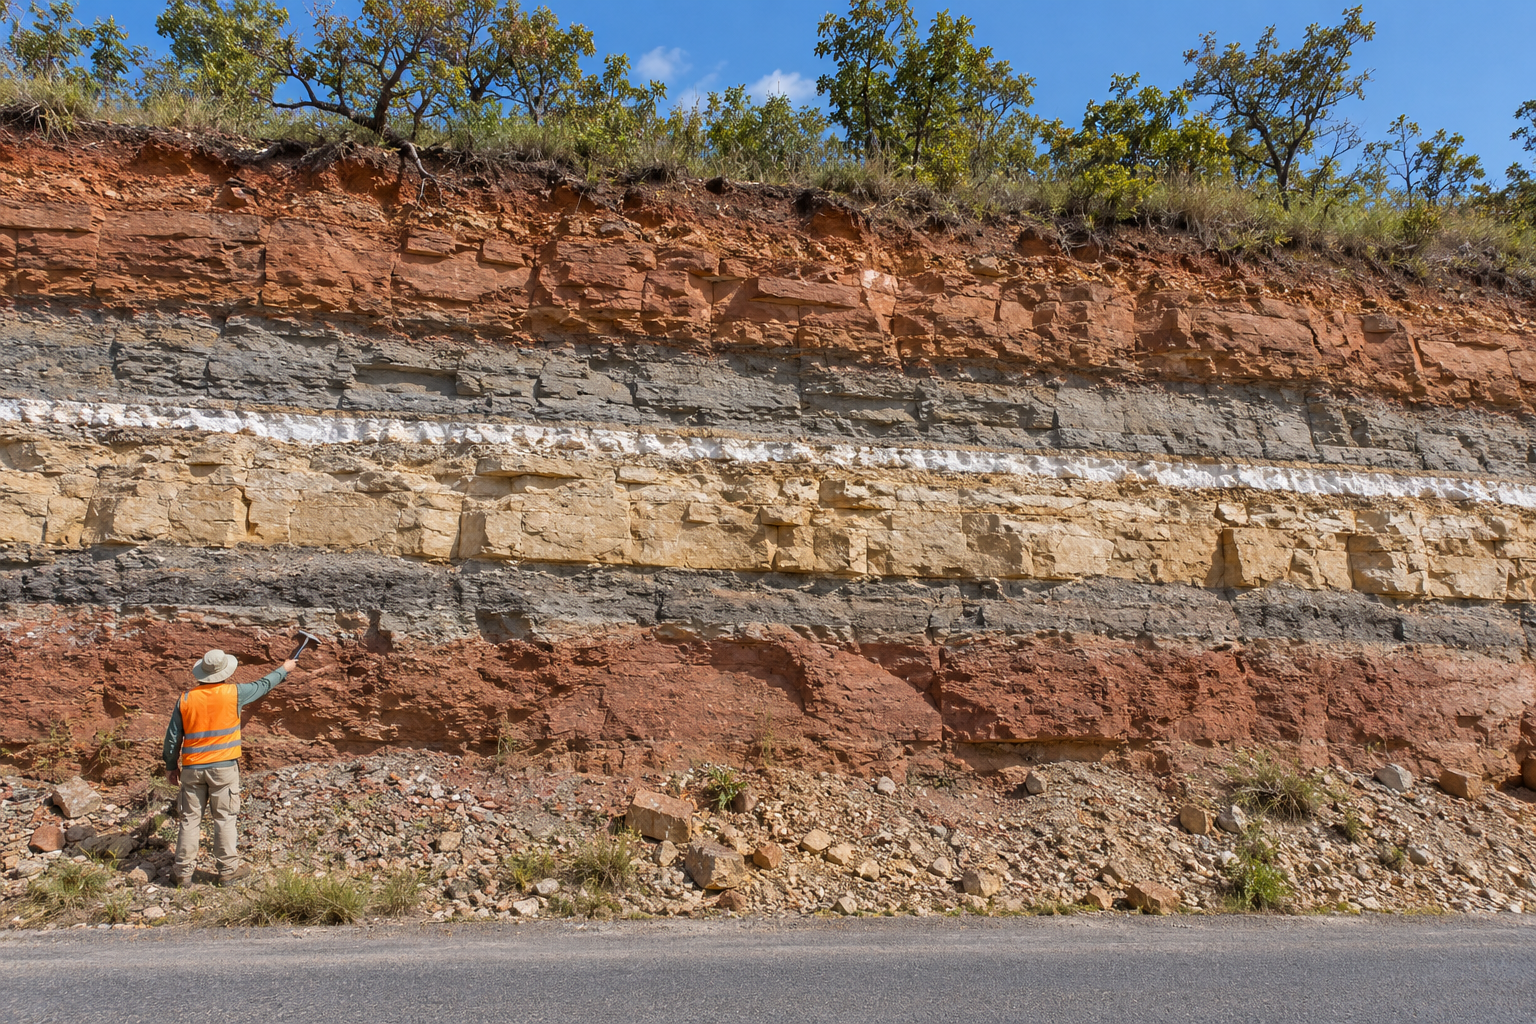
A datação relativa ordena sem medir. O princípio da superposição, formulado por Nicolaus Steno no século XVII, diz que, numa sequência de camadas sedimentares não perturbada, a camada de baixo se depositou antes da de cima: um fóssil na camada inferior é mais antigo que um fóssil na superior. A correlação usa fósseis-guia (espécies abundantes, de distribuição ampla e vida geológica curta, como certas amonites e trilobitas): duas camadas em continentes diferentes que contêm o mesmo fóssil-guia têm aproximadamente a mesma idade. A datação relativa produz a coluna do tempo geológico com seus éons, eras e períodos; o que ela não produz é um número em anos.
À esquerda, datação relativa: a camada de baixo é mais antiga, e uma camada de cinza vulcânica datável enquadra as camadas de sedimento vizinhas. À direita, datação absoluta pelo carbono-14: a cada 5 730 anos, metade do que restava desaparece. Fora de escala. Diagrama autoral.
A datação absoluta (ou radiométrica) mede. Alguns isótopos são instáveis e decaem a uma taxa constante, que não depende de temperatura, pressão ou química. A taxa se expressa pela meia-vida: o tempo em que metade dos átomos de uma amostra decai. Medindo quanto do isótopo original (o “pai”) resta e quanto do produto (o “filho”) se acumulou, calcula-se há quanto tempo o relógio começou a correr. Cada isótopo serve a uma faixa de idades:
isótopo
produto
meia-vida
o que data
faixa útil
carbono-14
nitrogênio-14
5 730 anos
restos orgânicos (osso, madeira, carvão, tecido)
de algumas dezenas de anos até cerca de 50 mil anos
potássio-40
argônio-40
1,25 bilhão de anos
rochas vulcânicas (cinza, lava)
de milhares a bilhões de anos
urânio-238
chumbo-206
4,5 bilhões de anos
minerais de rochas ígneas (zircão)
de milhões a bilhões de anos
Os valores são os adotados pelo Serviço Geológico dos Estados Unidos (USGS). A idade da Terra, 4,54 bilhões de anos, vem do urânio-chumbo em meteoritos e nas rochas mais antigas, com incerteza menor que 1 %.
O carbono-14 merece a conta, porque é a datação que cai em prova com número. Ele se forma na alta atmosfera quando nêutrons de raios cósmicos atingem átomos de nitrogênio; entra nas plantas pela fotossíntese, na forma de CO₂, e delas passa aos animais. Enquanto o organismo vive, a proporção de carbono-14 no corpo acompanha a da atmosfera, porque o carbono é renovado. Quando morre, a renovação para, e o carbono-14 decai sem reposição: a cada 5 730 anos, resta metade. Depois de n meias-vidas, a fração que resta é
N0N=(21)n,t=n×5730 anos.
Exemplo resolvido: a idade pelo carbono-14. Um fragmento de osso conserva 1/8 do carbono-14 que teria num osso de animal recém-morto. Qual é a sua idade aproximada? E se conservasse cerca de 6 % ?
Resolução.1/8=(1/2)3: três meias-vidas. t=3×5730=17190 anos. Para 6 %: (1/2)4=1/16=6,25%, quatro meias-vidas, t=4×5730=22920 anos. Em prova, a fração vem como 1/2, 1/4, 1/8, 1/16 ou como porcentagem próxima (50, 25, 12,5, 6,25 %): conte quantas vezes é preciso dividir por 2 e multiplique pela meia-vida.
Conferência. Caso-limite: 50 % é uma meia-vida, 5 730 anos; 1/8 é mais que uma, menos que quatro; 17 190 está entre 5 730 e 22 920. E uma amostra com 1/8 do carbono-14 não tem oito vezes a idade de uma com metade; o decaimento é exponencial, não proporcional.
Por que o carbono-14 não data um dinossauro? Porque, depois de dez meias-vidas (57 300 anos), resta menos de 0,1 % do original, e a quantidade fica abaixo do que se mede com segurança. O limite prático do método fica em torno de 50 mil anos, como registra o Programa de Origens Humanas do Smithsonian. Um osso de 66 milhões de anos não tem carbono-14 mensurável, e a idade dele vem por outro caminho: datam-se as camadas de rocha vulcânica acima e abaixo do fóssil (por potássio-argônio ou urânio-chumbo) e a idade do fóssil fica enquadrada entre as duas. Willard Libby, que desenvolveu o método do carbono-14 no fim dos anos 1940, recebeu por ele o Nobel de Química de 1960.
O tempo geológico se conta para trás
“Há 42 milhões de anos” é depois de “há 66 milhões de anos”, porque os dois números medem a distância até hoje. Em 2018, o PAS 3 apresentou um texto segundo o qual, após a extinção dos dinossauros, há 66 milhões de anos, surgiram na América do Sul isolada formas únicas de mamíferos, e que essa fauna viveu entre 42 e 39 milhões de anos atrás. O item 83 afirmou que havia uma incoerência: se a extinção ocorrera há 66 milhões de anos, as espécies não poderiam ter vivido há 42 milhões de anos, “mas, sim, há mais tempo”. Gabarito E: 42 milhões de anos atrás é 24 milhões de anos depois da extinção, e 24 milhões de anos é tempo de sobra para novas espécies surgirem. O item também inventou um nexo que o texto não trazia: o texto dizia que as espécies surgiram depois da extinção, não que a extinção foi responsável por elas. Um segundo erro de escala apareceu em 2011, no item 84: “estima-se que a espécie humana tenha surgido no período Cretáceo, era geológica imediatamente posterior ao período Jurássico”. Gabarito E, por dois motivos: o Cretáceo terminou há 66 milhões de anos e os fósseis mais antigos atribuídos a Homo sapiens, de Jebel Irhoud, no Marrocos, têm cerca de 300 mil anos; e o Cretáceo é um período, não uma era (a era é o Mesozoico).
Formas de transição: o que são e por que “elo perdido” é a expressão errada
Uma forma de transição é um fóssil que combina características de um grupo ancestral e de um grupo descendente, documentando a passagem entre eles. Não é um “elo perdido” por dois motivos: a imagem de corrente supõe uma linha única de ancestrais e descendentes, e a evolução produz um arbusto de linhagens, a maioria extinta sem deixar descendentes diretos; e os fósseis de transição mais famosos não estão perdidos, estão em museus. Quatro casos sustentam a maior parte dos itens e dos livros.
Das aves e dos répteis: Archaeopteryx. Descoberto nas pedreiras de calcário de Solnhofen, na Alemanha, em rochas do Jurássico superior (cerca de 150 milhões de anos), o primeiro esqueleto veio à luz em 1861, dois anos depois de A origem das espécies. Tem penas e um osso da fúrcula, como as aves; tem dentes, cauda longa com vértebras e três dedos com garras em cada asa, como os dinossauros terópodes. Hoje se conhecem outros dinossauros com penas, e Archaeopteryx deixou de ser “a ave mais antiga” para ser um dos vários parentes próximos da origem das aves; isso não o torna menos transicional, torna-o menos solitário.
Da água para a terra: Tiktaalik. Peixe de cerca de 375 milhões de anos (Devoniano) encontrado na ilha de Ellesmere, no Ártico canadense, em 2004, e descrito na Nature em 2006 por Edward Daeschler, Neil Shubin e Farish Jenkins. Tinha escamas, nadadeiras com raios e brânquias, como um peixe; e tinha pescoço móvel, costelas robustas e, dentro da nadadeira, ossos que correspondem a ombro, cotovelo e punho, como um tetrápode. A equipe foi procurar o fóssil em rochas daquela idade e daquele tipo de ambiente (rios de água doce) porque a teoria dizia onde procurar.
De volta para a água: as baleias. A sequência dos cetáceos é a mais completa entre os mamíferos. Pakicetus, do Paquistão, com cerca de 48 milhões de anos, era um animal terrestre do tamanho de um lobo, com patas, mas com o osso do ouvido típico das baleias. Ambulocetus natans, descrito em 1994 por Hans Thewissen e colaboradores na Science, tinha patas grandes e nadava como uma lontra, “a baleia que anda”. Basilosaurus, mais recente, já era marinho e alongado, e ainda tinha membros posteriores minúsculos. As baleias atuais guardam, perto da cauda, os ossos pélvicos sem ligação com a coluna, e os embriões de golfinho chegam a formar brotos de membros posteriores que depois regridem. O parente vivo mais próximo das baleias, pelas moléculas e pelos ossos do tornozelo de Pakicetus e de seus parentes, é o hipopótamo.
Os cavalos: arbusto, não escada. A série dos cavalos foi desenhada nos livros do século XIX como uma linha reta, do pequeno Hyracotherium (ou Eohippus), do tamanho de uma raposa e com vários dedos, até o cavalo moderno, grande e com um só dedo terminado em casco. A linha reta é uma simplificação: havia dezenas de gêneros contemporâneos, alguns pequenos, outros grandes, alguns com três dedos, e a maioria se extinguiu. O que a série mostra de verdade é uma tendência que se repetiu em vários ramos à medida que as florestas deram lugar a pastagens: dentes mais altos para mastigar capim, pernas mais longas, redução dos dedos laterais. Os dedos laterais reduzidos sobrevivem no cavalo atual como ossos finos colados à canela, estruturas vestigiais.
O que um "fóssil vivo" não é
Celacantos, tuataras, ginkgos e nautilos são chamados de “fósseis vivos” porque se parecem com fósseis de dezenas ou centenas de milhões de anos. A expressão engana: nenhuma dessas linhagens parou de evoluir. O celacanto atual, Latimeria, pertence a um gênero diferente dos celacantos fósseis, e as sequências de DNA dessas espécies acumularam mudanças como as de qualquer outra. O que se manteve foi a forma geral do corpo, em ambientes que mudaram pouco. “Fóssil vivo” descreve semelhança de aparência, não ausência de evolução.
Fósseis do Brasil: Araripe, Lagoa Santa, Rio Grande do Sul e o Mesossauro
O Brasil tem alguns dos sítios fossilíferos mais ricos do mundo, e eles aparecem em textos-base de prova.
Bacia do Araripe (CE, PE, PI). As formações Crato e Romualdo (esta última chamada tradicionalmente de Santana) são rochas do Cretáceo inferior, com cerca de 110 a 115 milhões de anos. Na Formação Crato, um calcário laminado de antigo ambiente lacustre, preservaram-se insetos com asas inteiras, plantas com flores entre as mais antigas conhecidas e pterossauros com cristas. Na Romualdo, peixes ficaram preservados em três dimensões dentro de nódulos de calcário, às vezes com músculos e brânquias. A região abriga o Geopark Araripe, o primeiro geoparque do Brasil reconhecido pela UNESCO (2006), e o Museu de Paleontologia de Santana do Cariri.
Lagoa Santa (MG). Nas grutas calcárias do vale do rio das Velhas, o naturalista dinamarquês Peter Lund escavou, nos anos 1830 e 1840, ossos de mamíferos extintos da chamada megafauna (preguiças-gigantes, tigres-dentes-de-sabre, mastodontes) misturados a ossos humanos, o que já no século XIX levantou a pergunta sobre a convivência entre humanos e a megafauna nas Américas. Da mesma região vem o crânio de Luzia, encontrado na década de 1970 em Lapa Vermelha e guardado no Museu Nacional, no Rio de Janeiro: um dos esqueletos humanos mais antigos das Américas, com idade estimada entre 11 mil e 13 mil anos, conforme a datação adotada. O crânio foi atingido pelo incêndio que destruiu grande parte do museu em 2018.
Rio Grande do Sul. Os arenitos e siltitos da região de Santa Maria, do Triássico (cerca de 230 milhões de anos), guardam alguns dos dinossauros mais antigos conhecidos, como Staurikosaurus pricei, descrito por Edwin Colbert em 1970, além de parentes próximos dos mamíferos (cinodontes). Foi esse dado que o texto-base do PAS 3 de 2018 citou ao mencionar fósseis de dinossauros do Rio Grande do Sul com 230 milhões de anos, considerados entre os mais antigos do mundo. O mesmo texto chamou o Triássico de “era”; na escala geológica, o Triássico é um período da era Mesozoica. Em Minas Gerais, a região de Uberaba (Peirópolis) concentra dinossauros do Cretáceo superior, entre eles grandes saurópodes.
O Mesossauro e a deriva dos continentes.Mesosaurus foi um pequeno réptil aquático de água doce ou salobra do Permiano inferior, há cerca de 280 milhões de anos. Seus fósseis ocorrem em apenas dois lugares: na Formação Irati, no sul e no centro do Brasil (e em rochas correlatas do Uruguai), e na Formação Whitehill, no sul da África. Um réptil de um metro, de águas rasas, não atravessa o Atlântico. A explicação, proposta por Alfred Wegener na década de 1910 e aceita décadas depois com a tectônica de placas, é que a América do Sul e a África estavam unidas no Permiano no supercontinente Gondwana, e o lago em que Mesosaurus vivia ficava onde hoje é o oceano. A biogeografia volta ao tema adiante; aqui fica a lição: o registro fóssil também é um mapa.
Anatomia comparada: homologia, analogia e estruturas vestigiais
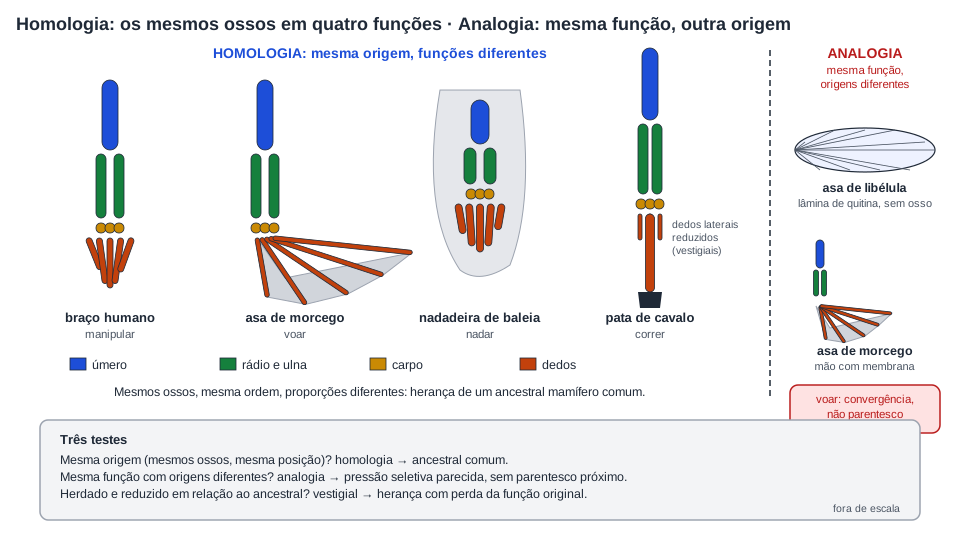
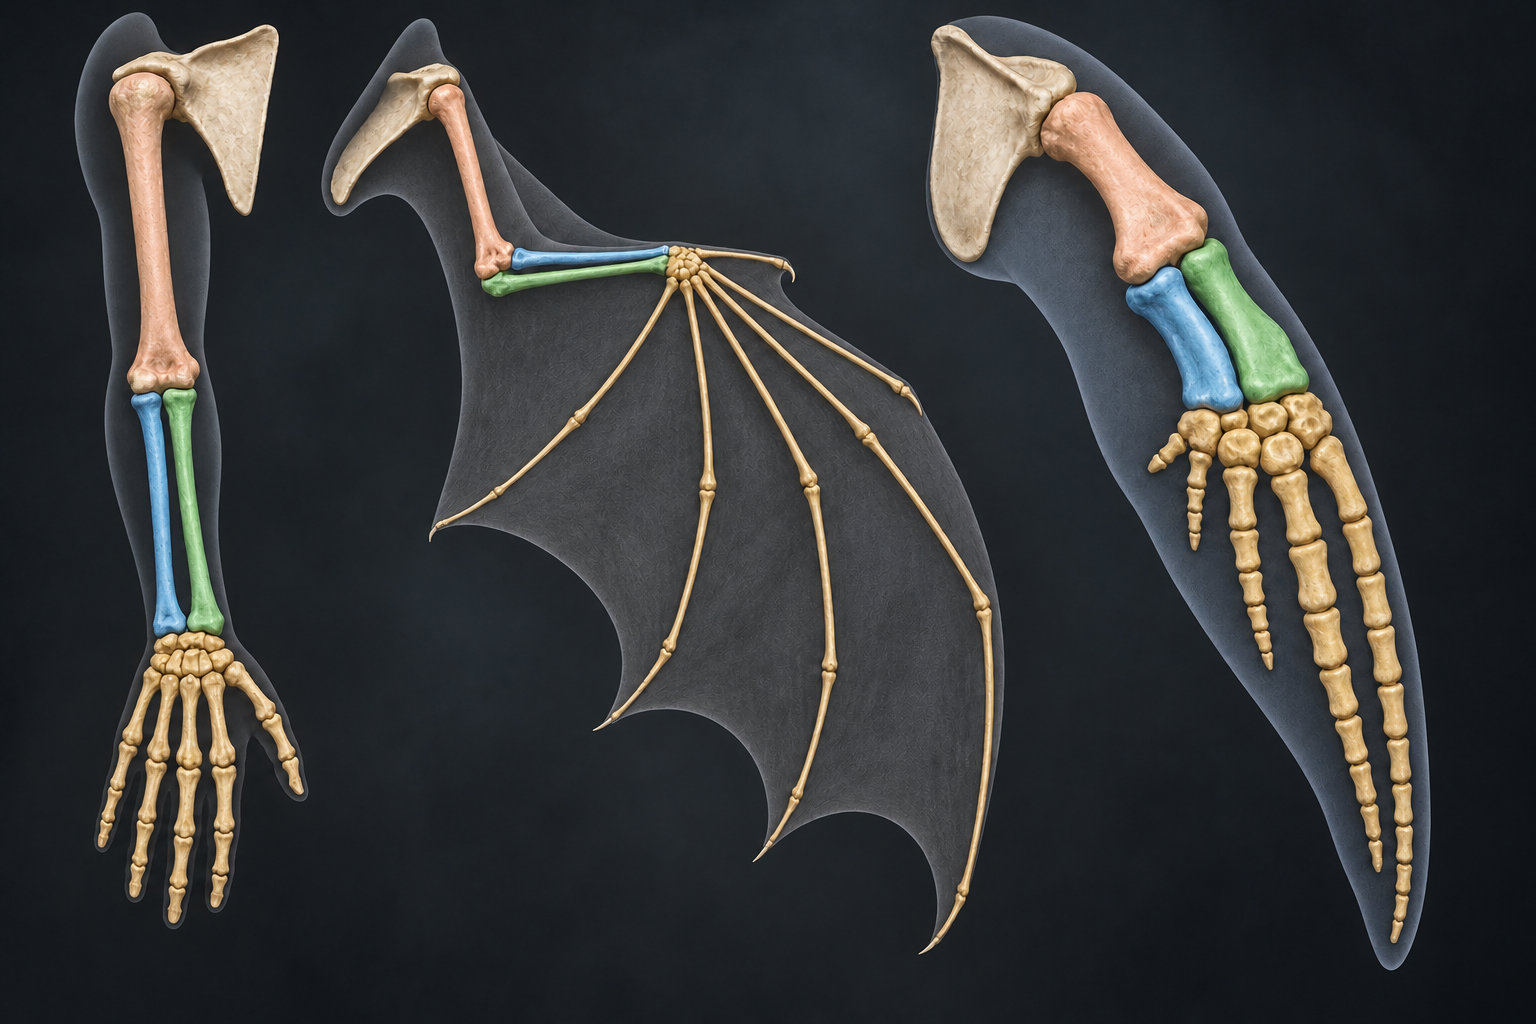
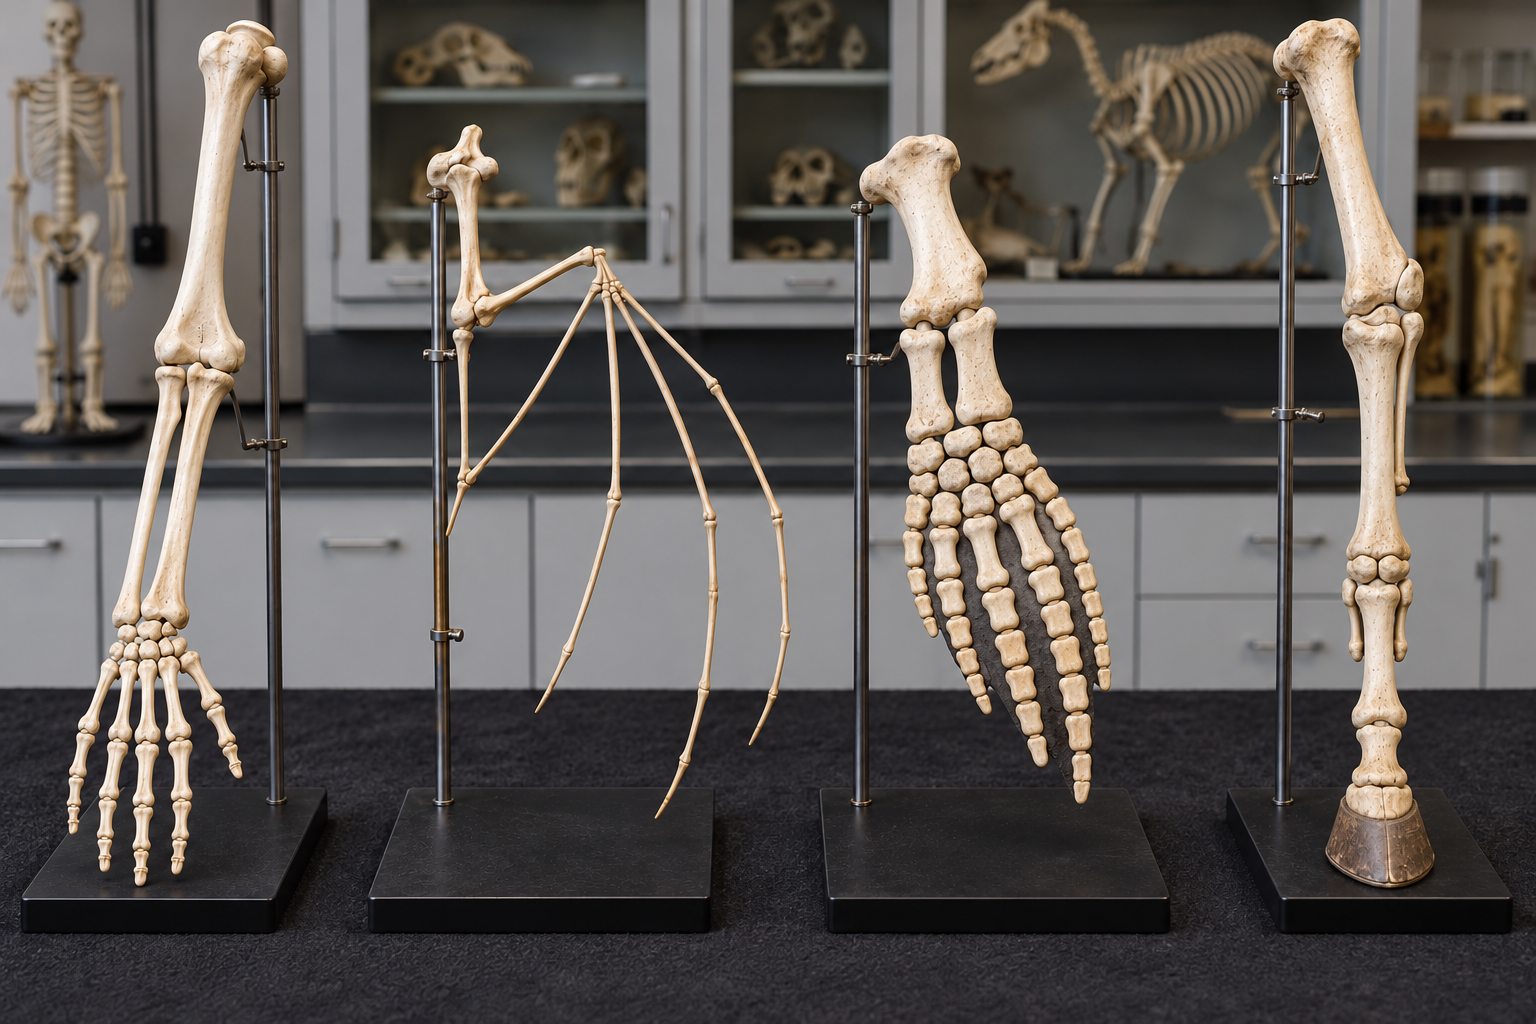
Ponha lado a lado o braço humano, a asa do morcego, a nadadeira da baleia e a pata dianteira do cavalo. Em todos há um osso longo ligado ao ombro (úmero), dois ossos abaixo dele (rádio e ulna), um conjunto de ossinhos do punho (carpo) e, na ponta, dedos. No morcego, os dedos são finíssimos e compridos, e uma membrana de pele os liga. Na baleia, os mesmos ossos estão curtos e achatados dentro de uma nadadeira. No cavalo, sobrou um dedo desenvolvido, o do meio, terminado em casco, e os vizinhos encolheram. Funções diferentes, mesmo plano. Ninguém que desenhasse uma asa, um remo e uma perna de corrida do zero usaria o mesmo esqueleto para os três; quem herda um esqueleto e o modifica, sim.
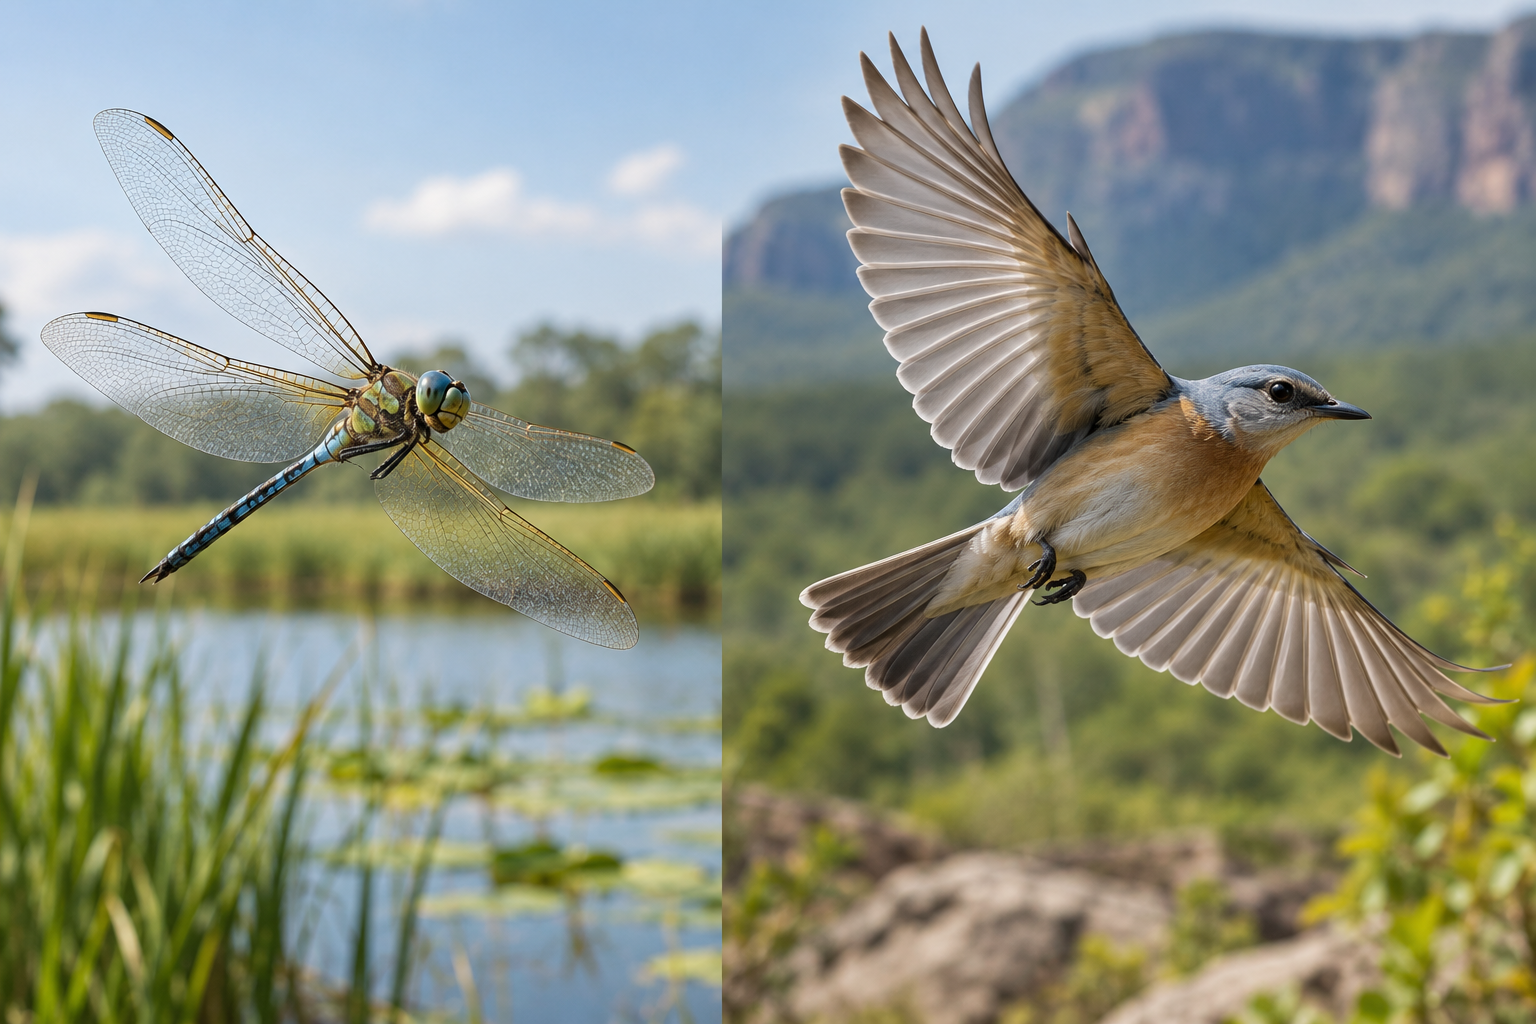
Homologia: os mesmos ossos, nas mesmas cores, em quatro membros com funções diferentes, herdados de um ancestral mamífero comum. Analogia: a asa da libélula e a do morcego voam, mas uma é lâmina de quitina e a outra é uma mão com membrana. Fora de escala. Diagrama autoral.
Três palavras, três testes
Órgãos homólogos têm a mesma origem evolutiva (e, em geral, a mesma origem embrionária e o mesmo plano estrutural), ainda que a função tenha mudado: braço humano, asa de morcego, nadadeira de baleia, pata de cavalo. Homologia indica ancestral comum e divergência: linhagens que se separaram e adaptaram a mesma peça a usos distintos. Órgãos análogos têm a mesma função com origens independentes: asa de inseto e asa de ave, nadadeira de tubarão e nadadeira de golfinho, olho de polvo e olho de vertebrado. Analogia resulta de convergência: ambientes e modos de vida parecidos selecionando soluções parecidas em linhagens que não são próximas. Analogia não indica parentesco. Órgãos vestigiais são estruturas reduzidas, com função perdida ou muito diminuída em relação à que tinham nos ancestrais: a pelve das baleias, os olhos cobertos de pele de peixes de caverna, as asas de aves que não voam, os dedos laterais do cavalo. O teste: mesma origem? homologia. Mesma função com origens diferentes? analogia. Herdado e reduzido? vestigial.
O par que a prova usa com mais frequência é morcego e humano. Em 2021, o PAS 3 apresentou o poema O morcego, de Augusto dos Anjos, e afirmou no item 66 que a estrutura óssea da asa do morcego é semelhante às do braço e da mão humanos, o que constitui evidência de que morcegos e seres humanos descendem de uma espécie ancestral comum. Gabarito C: é a definição de homologia aplicada ao par certo. O erro que a prova espera é a etiqueta trocada, chamar de analogia uma semelhança de plano com funções diferentes, ou chamar de homologia uma semelhança de função com planos diferentes.
A classificação se aplica a características, não a animais. Aves e morcegos têm membros anteriores homólogos (os mesmos ossos, herdados do ancestral tetrápode) e asas análogas (o voo evoluiu separadamente nos dois grupos: na ave a superfície da asa é feita de penas sobre um braço com dedos reduzidos; no morcego, de pele entre dedos alongados). Um item que pergunta se “a asa da ave e a asa do morcego são homólogas” não tem resposta sem dizer o nível: como membros anteriores, sim; como asas, não. Um item bem escrito especifica; se não especificar, procure no texto-base a pista de qual nível ele quer.
"Vestigial" não quer dizer "inútil", e "tem função" não quer dizer "não é vestigial"
O apêndice humano é o exemplo clássico, e é um mau exemplo se for apresentado como órgão sem nenhuma função: ele contém tecido linfoide e, segundo uma hipótese bem discutida, abriga bactérias intestinais que recolonizam o intestino depois de diarreias. Isso não o tira da lista. Vestigial é a estrutura reduzida em relação à condição ancestral, que perdeu a função original (nos herbívoros, o ceco grande digere celulose) e pode ou não ter adquirido outra. Os ossos pélvicos das baleias servem de ancoragem aos músculos do pênis, e um estudo de 2014 mostrou que eles variam com a intensidade da seleção sexual na espécie: vestigiais quanto à locomoção, funcionais para outra coisa. O cóccix ancora músculos do assoalho pélvico. Os músculos que movem as orelhas existem em quase todas as pessoas e movem pouco. Em prova, a frase correta diz que o órgão vestigial é reduzido e indica parentesco com ancestrais em que a estrutura era funcional; a frase errada exige que ele não tenha função nenhuma, ou conclui que a existência de uma função atual nega a herança.
A versão molecular do vestigial é o pseudogene: um gene herdado do ancestral que acumulou mutações e deixou de produzir proteína funcional, mas continua no genoma, no mesmo lugar, reconhecível. Em 2015, o PAS 3 pediu, em item de múltipla escolha (item 83), uma situação que exemplificasse traço vestigial; as opções eram asas de insetos e de aves (analogia), o coração funcional em primatas e carnívoros (homologia funcional), a cauda em cães e lobos extintos (homologia funcional) e genes de olfato que não são transcritos em humanos e são transcritos em cães. Gabarito D: só a última descreve algo herdado e desligado. O caso mais citado é o gene GULO, da enzima que faz a última etapa da síntese da vitamina C: funciona na maioria dos mamíferos e está quebrado em humanos e nos outros primatas antropoides, com as mesmas mutações nas mesmas posições, o que é exatamente o que se espera se o gene se quebrou uma vez, num ancestral comum, e foi herdado quebrado por todos os descendentes. É por isso que humanos têm escorbuto e cães não.
A lógica inteira da anatomia comparada cabe em uma frase: homologia indica parentesco; analogia indica pressão seletiva parecida. Para transformar homologias em uma árvore, com grupos definidos por caracteres derivados compartilhados, a ferramenta é a cladística, tratada em taxonomia e sistemática.
Embriologia comparada: o que os embriões mostram e o que Haeckel exagerou
Embriões de peixe, salamandra, tartaruga, galinha e humano, em certa fase, parecem-se mais entre si do que os adultos. Todos têm uma notocorda (o bastão dorsal que nos vertebrados é substituído pela coluna), um tubo neural, uma cauda pós-anal e, na região da garganta, uma série de arcos faríngeos separados por fendas. No peixe, os arcos viram as brânquias e seus suportes. Nos tetrápodes, os mesmos arcos viram outra coisa: o primeiro forma a mandíbula e dois ossinhos do ouvido médio (martelo e bigorna), o segundo forma o estribo e parte do osso hioide, os seguintes formam cartilagens da laringe e glândulas como as paratireoides e o timo. A estrutura é homóloga; o destino, não. É por isso que a embriologia é evidência: ela mostra a mesma peça inicial sendo remodelada para fins diferentes em cada linhagem, o que faz sentido se as linhagens herdaram o programa de desenvolvimento de um ancestral comum e o modificaram em etapas tardias.
O embrião humano não tem brânquias
A frase “o embrião humano passa por uma fase de peixe, com brânquias” está errada em dois pontos. Os arcos faríngeos do embrião humano nunca formam brânquias funcionais; não há lamelas respiratórias nem troca gasosa. E o embrião humano não repete os estágios adultos dos ancestrais: ele se parece com embriões de outros vertebrados, porque todos herdaram as mesmas etapas iniciais de desenvolvimento. A diferença entre as duas afirmações é a diferença entre a embriologia comparada atual e a lei biogenética de Ernst Haeckel.
Haeckel, em 1866 e com mais força na Anthropogenie de 1874, propôs que “a ontogenia recapitula a filogenia”: o desenvolvimento do indivíduo repetiria, em versão acelerada, a sequência das formas adultas de seus ancestrais. A ideia é falsa como lei: embriões não passam por estágios de peixe adulto, anfíbio adulto e réptil adulto. O que existe é semelhança entre embriões de grupos aparentados, maior nas fases iniciais e menor depois, e mesmo isso com exceções. As gravuras de Haeckel comparando embriões de várias espécies foram acusadas de exagero já no século XIX e reexaminadas em 1997 por Michael Richardson e colaboradores, que fotografaram embriões reais no mesmo estágio e mostraram que as diferenças de tamanho, proporção e número de segmentos são bem maiores do que as gravuras sugeriam. A conclusão de Richardson é a que vale: há semelhanças reais e informativas entre embriões de vertebrados, e não há um estágio idêntico pelo qual todos passem.
Uma frase sobre o nível molecular, porque fecha o raciocínio: os genes Hox, que dizem a cada segmento do embrião que parte do corpo ele deve formar (cabeça, tórax, abdome, membros), existem em moscas, peixes e humanos, na mesma ordem ao longo do cromossomo e com sequências reconhecivelmente parecidas. O mesmo conjunto de interruptores, herdado de um ancestral animal comum, controla o plano do corpo em linhagens separadas há mais de 500 milhões de anos.
Biogeografia: Wallace, Gondwana e as ilhas
Onde cada espécie vive é um dado histórico. Se as espécies tivessem sido distribuídas pelo mundo de acordo com o clima que lhes convém, ambientes parecidos teriam espécies parecidas. Não é o que se vê: os desertos da Austrália têm marsupiais que ocupam os papéis que, nos desertos da África e da América do Norte, são de mamíferos placentários. A distribuição acompanha a história, não só o clima: cada região tem as espécies que descendem das que já estavam lá ou das que conseguiram chegar.
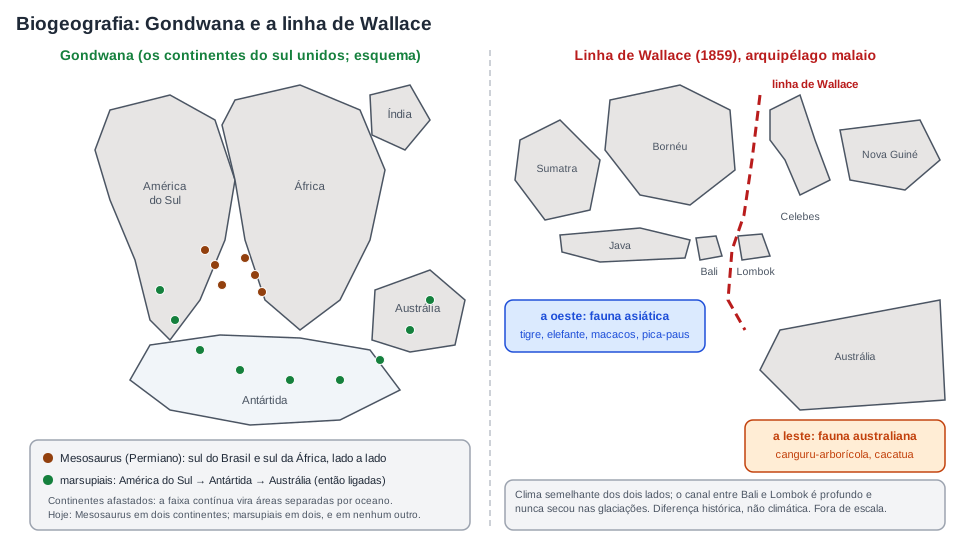
À esquerda, uma distribuição descontínua hoje (Mesosaurus no Brasil e na África; marsupiais na América do Sul e na Austrália) era contínua em Gondwana. À direita, a linha de Wallace: dois lados de clima parecido e faunas diferentes, separados por um canal que nunca secou. Fora de escala. Diagrama autoral.
A linha de Wallace. Alfred Russel Wallace passou oito anos coletando no arquipélago malaio e notou, em 1859, que entre as ilhas de Bali e Lombok, separadas por um estreito de poucas dezenas de quilômetros, a fauna mudava de modo abrupto: a oeste, animais de tipo asiático (tigres, elefantes, macacos, pica-paus); a leste, animais de tipo australiano (marsupiais, cacatuas, aves-do-paraíso). O clima dos dois lados é o mesmo. A diferença é histórica: o canal entre Bali e Lombok é profundo e permaneceu como mar mesmo quando o nível dos oceanos baixou nas glaciações, enquanto as ilhas a oeste ficaram ligadas à Ásia e as a leste, à Austrália. A linha que separa as duas faunas recebeu o nome de Wallace, dado por Thomas Huxley. Wallace é, por esse trabalho, considerado um fundador da biogeografia; a sua formulação independente da seleção natural está em teorias evolutivas.
Gondwana e os marsupiais. Marsupiais vivem hoje na Austrália e nas ilhas vizinhas e nas Américas, e em nenhum outro lugar. A América do Sul tem gambás, cuícas e catitas; a Austrália tem cangurus, coalas e diabos-da-tasmânia. Dois continentes separados por um oceano, dois conjuntos de marsupiais, e nada na África nem na Ásia. O mapa de Gondwana explica: América do Sul, Antártida e Austrália estavam unidas quando os marsupiais se espalharam, e fósseis de marsupiais na Antártida confirmam a rota. O caso de Mesosaurus, visto acima, é o mesmo raciocínio aplicado a um fóssil.
Ilhas oceânicas. Ilhas que nasceram do mar, como Galápagos e Havaí, nunca estiveram ligadas a um continente. A fauna e a flora delas têm duas marcas. Primeira: faltam grupos inteiros que não atravessam oceano (anfíbios, mamíferos terrestres de grande porte, peixes de água doce), e abundam os que chegam voando, flutuando ou carregados (aves, insetos, répteis, plantas de sementes leves). Segunda: as espécies da ilha são endêmicas (só existem ali) e aparentadas às do continente mais próximo, não às de outras ilhas de clima parecido do outro lado do mundo. Os tentilhões de Galápagos descendem de um ancestral vindo da América do Sul; as drosófilas e as lobélias do Havaí, de ancestrais que chegaram por acaso e se diversificaram em dezenas de espécies, uma por tipo de ambiente ou de alimento. Esse padrão, um colonizador e muitas espécies descendentes especializadas, chama-se radiação adaptativa, e volta na seção sobre especiação.
Evidências moleculares: o mesmo código, sequências parecidas e um cromossomo a menos
Quando a biologia molecular aprendeu a ler proteínas e DNA, nos anos 1950 e 1960, ela abriu um arquivo que nenhum naturalista do século XIX tinha. O arquivo confirmou o que os ossos diziam e acrescentou o que os ossos não podiam dizer.
O mesmo código. Todos os seres vivos conhecidos usam ácidos nucleicos para guardar informação, os mesmos vinte aminoácidos para construir proteínas e o mesmo dicionário para traduzir um no outro: o códon AUG significa metionina numa bactéria, num fungo, numa samambaia e em você. Há pequenas variantes do código (em mitocôndrias e em alguns ciliados, um ou dois códons mudaram de sentido), e justamente por isso ele é evidência: um código arbitrário, igual em tudo o que vive, com variantes raras que se distribuem conforme a árvore, é o que se espera de herança a partir de um único ancestral. A conclusão tem nome: todos os seres vivos atuais descendem de um ancestral comum universal, que viveu há bilhões de anos. Em 2011, o PAS 3 afirmou isso quase palavra por palavra (item 86: segundo a teoria da evolução, todos os seres viventes descendem de um ancestral comum que surgiu há bilhões de anos). Gabarito C. Como esse ancestral é reconstruído, e o que ele tem a ver com a origem da vida, está em origem da vida; o funcionamento do código está em DNA, RNA e síntese proteica.
Sequências parecidas. Uma proteína que todos os eucariontes aeróbios usam, o citocromo c da cadeia respiratória, tem cerca de cem aminoácidos. Em 1967, Walter Fitch e Emanuel Margoliash compararam a sequência dessa proteína em vinte espécies e construíram, só a partir das diferenças, uma árvore de parentesco. A árvore coincidia, nos grandes traços, com a dos anatomistas: humano e macaco diferem em poucas posições; humano e cavalo, em mais; humano e peixe, em mais ainda; humano e levedura, em muitas. A regra geral é que quanto mais parecidas as sequências de duas espécies, mais recente o ancestral comum entre elas, porque as diferenças se acumulam com o tempo decorrido desde a separação. A hemoglobina, os genes do RNA ribossômico e hoje genomas inteiros contam a mesma história.
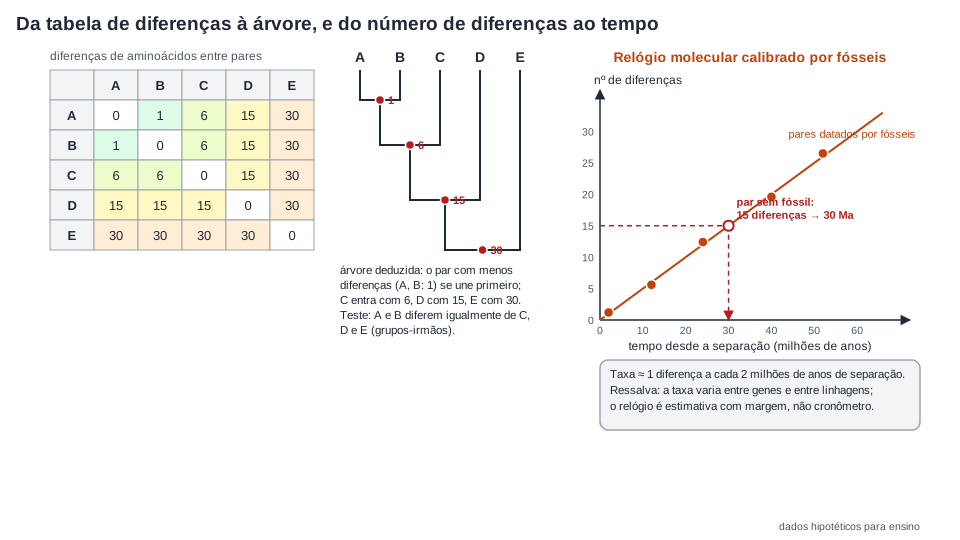
À esquerda, de uma tabela de diferenças a uma árvore: os pares com menos diferenças se unem primeiro. À direita, o relógio molecular: calibrado por fósseis de idade conhecida, converte diferenças em tempo, com a ressalva de que a taxa varia entre genes e linhagens. Dados hipotéticos. Diagrama autoral.
O relógio molecular. Emile Zuckerkandl e Linus Pauling observaram, em 1965, que para uma mesma proteína as diferenças entre espécies se acumulam a uma taxa aproximadamente constante ao longo do tempo. Se a taxa for conhecida (calibrada por um par de espécies cuja separação está datada por fósseis), o número de diferenças entre duas outras espécies estima há quanto tempo elas se separaram. Em nível escolar a conta é uma regra de três, e os itens a cobram assim.
Exemplo resolvido: o relógio molecular. Em certa proteína, as diferenças entre duas linhagens se acumulam à taxa de 1 aminoácido a cada 2 milhões de anos de separação (taxa calibrada por fósseis). Duas espécies diferem em 9 aminoácidos. Há quanto tempo se separaram? Uma terceira espécie difere das duas primeiras em 20 aminoácidos; o que isso diz sobre a árvore?
Resolução. 9 diferenças × 2 milhões de anos por diferença = 18 milhões de anos de separação. A terceira espécie, com 20 diferenças em relação às outras duas, separou-se delas há cerca de 40 milhões de anos, antes de as duas primeiras se separarem entre si: ela é o ramo mais externo, e as duas primeiras são grupos-irmãos.
Conferência. As duas primeiras espécies diferem igualmente da terceira (20 e 20): é o que se espera se ambas descendem do mesmo ancestral que se separou da terceira, porque acumularam mudanças pelo mesmo tempo. Se os números fossem 20 e 12, a tabela seria inconsistente com um relógio constante, e a primeira hipótese a abandonar seria a constância da taxa, que varia entre genes (proteínas essenciais mudam devagar) e entre linhagens (gerações curtas aceleram). O relógio é uma estimativa com margem, não um cronômetro.
Humanos e chimpanzés. O genoma do chimpanzé foi publicado em 2005 e comparado com o humano. O resultado tem dois números, e os dois aparecem na imprensa como se fossem o mesmo: nos trechos que se alinham diretamente, as sequências são cerca de 98,8 % idênticas (1,2 % de diferença por substituição de bases); quando se contam também as inserções e deleções, trechos que existem em um genoma e não no outro, a identidade cai para cerca de 96 %. Os dois números estão certos; medem coisas diferentes. Pelo mesmo critério das substituições, a diferença com o gorila é de cerca de 1,6 % e com o orangotango, de 3,1 %, e a diferença entre duas pessoas é de cerca de 0,1 %. A ordem (chimpanzé e bonobo mais próximos, depois gorila, depois orangotango) é a mesma que a anatomia já indicava.
"98 % iguais" não quer dizer "quase a mesma espécie"
Uma porcentagem de identidade mede distância genética, não pertencimento à mesma espécie. Humanos e chimpanzés são espécies de gêneros diferentes, separadas por milhões de anos, incapazes de gerar descendentes entre si, com números de cromossomos diferentes (46 e 48). O 1,2 % de diferença corresponde a cerca de 35 milhões de posições do genoma, e algumas delas, em genes reguladores do desenvolvimento, têm efeitos grandes. Também não se deve ler a porcentagem ao contrário: ela não diz que “somos 98 % chimpanzés”, diz que compartilhamos um ancestral recente.
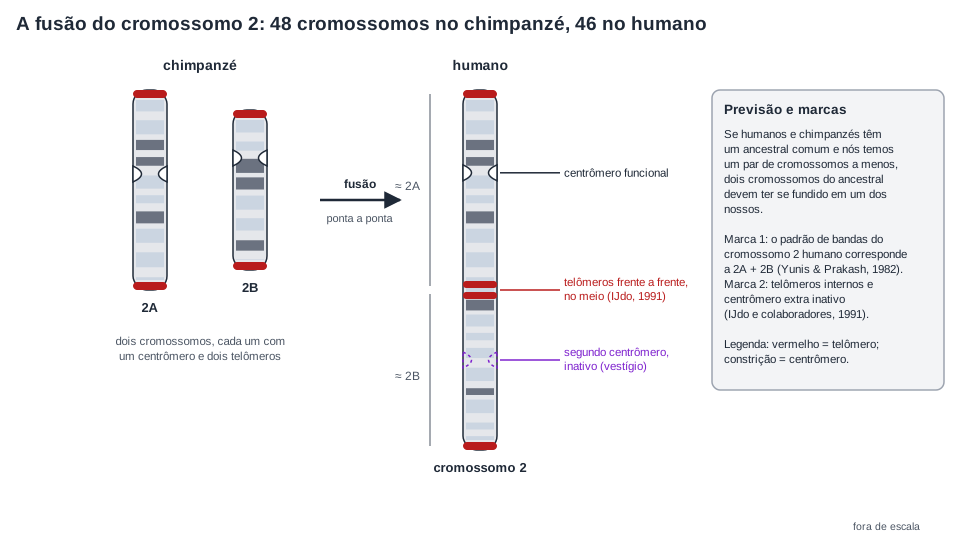
Chimpanzés têm 48 cromossomos; humanos, 46. A previsão: dois cromossomos do ancestral se fundiram em um dos nossos. As marcas: o padrão de bandas do cromossomo 2 humano corresponde aos cromossomos 2A e 2B do chimpanzé, há sequências de telômero no meio do cromossomo 2 e um segundo centrômero inativo. Fora de escala. Diagrama autoral.
O cromossomo 2. Chimpanzés, gorilas e orangotangos têm 48 cromossomos; humanos têm 46. Se compartilhamos um ancestral, um par de cromossomos se perdeu ou dois se fundiram. Em 1982, Jorge Yunis e Om Prakash compararam o padrão de bandas dos cromossomos humanos e dos grandes primatas e mostraram que o cromossomo 2 humano corresponde, banda a banda, a dois cromossomos do chimpanzé unidos ponta a ponta (hoje chamados 2A e 2B). Em 1991, a equipe de Jacob IJdo encontrou, no meio do cromossomo 2 humano, as sequências repetitivas típicas de telômero (as pontas protetoras dos cromossomos) dispostas frente a frente, exatamente onde duas pontas teriam se encontrado, e, perto dali, os restos de um segundo centrômero inativo. A fusão foi prevista pela ancestralidade comum e confirmada por duas marcas independentes.
Retrovírus endógenos e organelas. Dois dados fecham o quadro. Alguns vírus inserem o próprio genoma no DNA da célula que infectam; quando a inserção acontece numa célula germinativa, ela passa aos descendentes e fica no genoma da espécie. Cerca de 8 % do genoma humano é formado por sequências desse tipo, e muitas delas estão no mesmo lugar do genoma em humanos e chimpanzés, o que só se explica se a inserção ocorreu uma vez, num ancestral comum, antes da separação. E as mitocôndrias e os cloroplastos têm DNA próprio, circular, com genes mais parecidos com os de bactérias do que com os do núcleo da célula que os abriga, evidência de que essas organelas descendem de bactérias incorporadas por células ancestrais; o argumento inteiro está em endossimbiose.
Evolução observada: quando a mudança cabe numa vida humana
A evolução não é só inferida do passado; em organismos de geração curta e em populações pequenas e bem estudadas, ela é medida. Quatro casos bastam aqui, porque a análise do mecanismo é assunto de seleção natural.
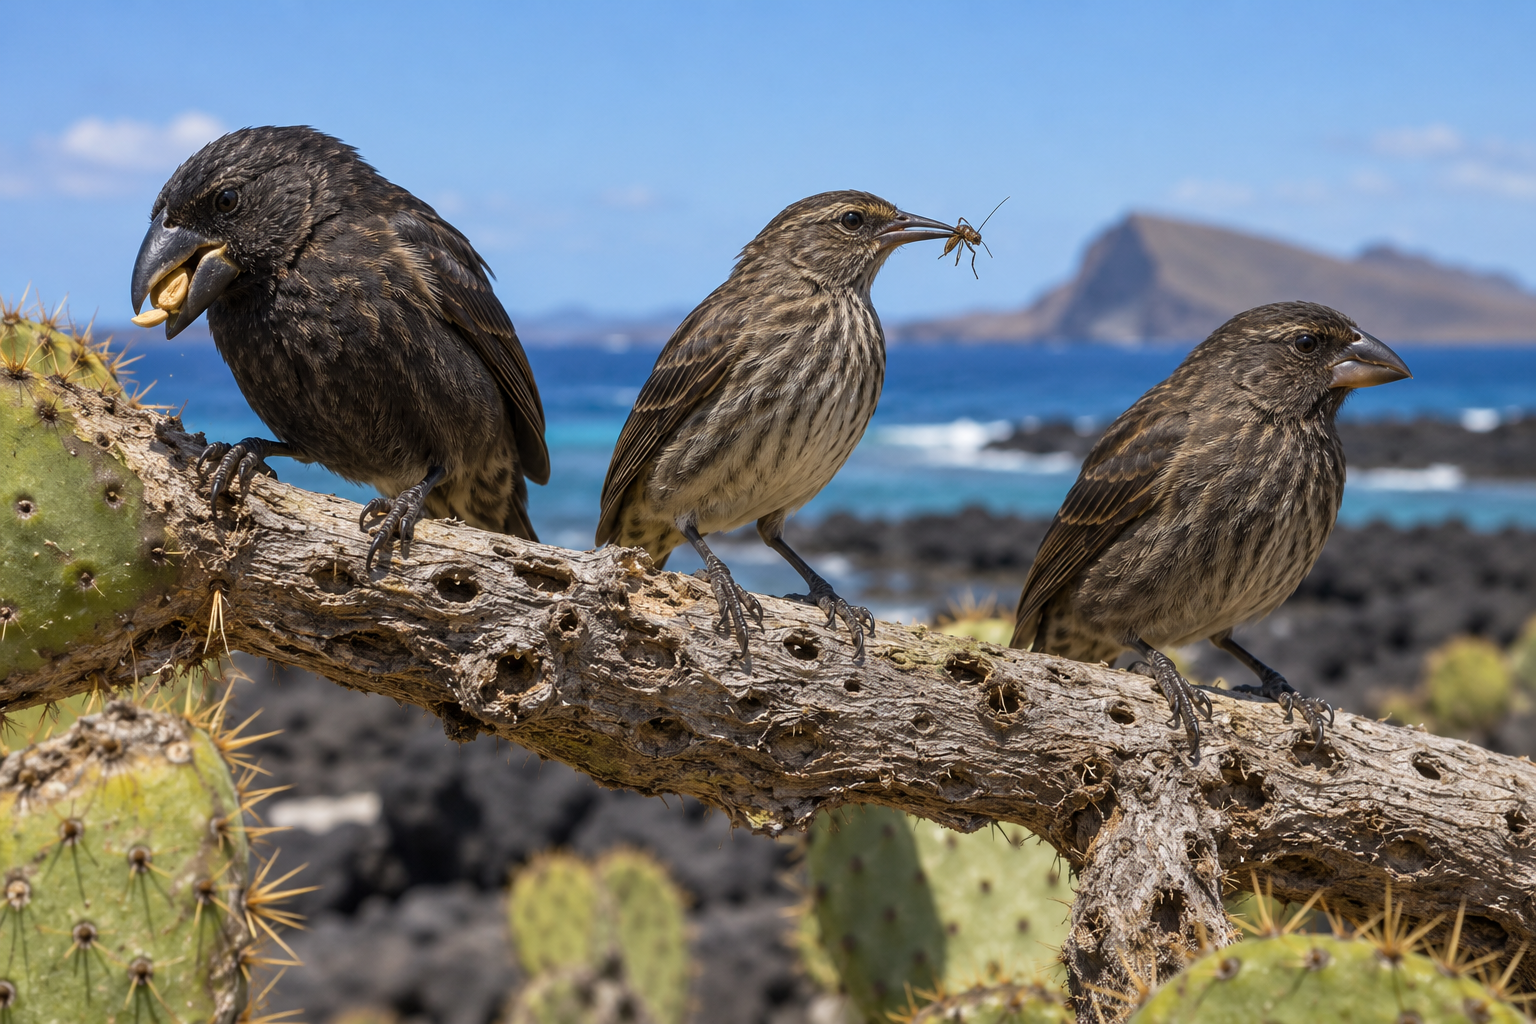
Os tentilhões de Daphne Major. Desde 1973, Peter e Rosemary Grant acompanham, ano a ano, os tentilhões da pequena ilha de Daphne Major, em Galápagos, marcando cada ave e medindo o bico. Em anos de seca, quando sobram apenas sementes grandes e duras, sobrevivem mais as aves de bico maior, e a média do bico da população sobe na geração seguinte; em anos chuvosos, com sementes pequenas abundantes, a média desce. Trinta anos de dados, publicados em 2002, mostraram mudanças repetidas e em direções imprevisíveis de antemão, porque dependem do clima de cada ano.
O experimento de longo prazo com E. coli. Em 1988, Richard Lenski iniciou doze populações de Escherichia coli a partir de um mesmo ancestral e passou a transferi-las diariamente para meio novo, congelando amostras a cada 500 gerações. As populações, que ultrapassaram 80 mil gerações em agosto de 2024, cresceram mais depressa que o ancestral, mudaram de tamanho de célula e, numa delas, surgiu a capacidade de consumir citrato, que a espécie não tinha. O congelamento permite comparar qualquer geração com qualquer outra, um registro fóssil vivo.
A mariposa Biston betularia. Na Inglaterra industrial do século XIX, a forma escura da mariposa, antes rara, tornou-se maioria nas regiões com troncos escurecidos por fuligem; com as leis de ar limpo do século XX, a forma clara voltou a predominar. Experimentos de predação por aves, repetidos com rigor por Michael Majerus e publicados em 2012, depois da morte dele, por Cook, Grant, Saccheri e Mallet, confirmaram que as aves comem mais as mariposas que contrastam com o tronco.
Uma espécie nova em três gerações. No início dos anos 1980, um tentilhão macho de outra ilha, Geospiza conirostris, chegou a Daphne Major e cruzou com uma fêmea local, G. fortis. Os descendentes, de bico e canto diferentes dos das duas espécies, passaram a cruzar só entre si a partir da segunda geração. Em 2018, a análise genômica da linhagem, publicada na Science, documentou o caso do início ao isolamento reprodutivo: uma linhagem reprodutivamente isolada estabelecida em três gerações, por hibridação. A especiação, em geral lenta, não é obrigatoriamente lenta.
Humanos: primos dos chimpanzés, uma só espécie
Dois erros sobre a espécie humana rendem itens de prova com regularidade, e os dois se desfazem com o que esta página já mostrou.
Primo, não ancestral. Humanos e chimpanzés descendem de um ancestral comum extinto, do qual saíram dois ramos. Nenhuma espécie atual é ancestral de outra espécie atual: o chimpanzé que vive hoje é tão descendente do ancestral comum quanto nós. Em 2008, o PAS 3 apresentou um texto sobre a reconstituição de uma mulher neandertal que dizia que Homo neanderthalensis e Homo sapiens eram espécies diferentes com um ancestral comum extinto, e perguntou, no item 97, se estaria de acordo com a teoria darwinista e com o texto afirmar que o chimpanzé deu origem ao Homo neanderthalensis, que por sua vez originou o Homo sapiens. Gabarito E: o item monta uma escada com uma espécie atual na base; a teoria e o texto desenham um garfo. Em 2018, o item 75 propôs que, como o homem é um primata cujo ancestral é outro primata, seria possível o surgimento de uma nova espécie do gênero Homo a partir de espécies como o gorila e o chimpanzé. Gabarito E: a premissa é verdadeira e a conclusão é um salto; uma espécie nova de Homo só poderia surgir de uma população de Homo isolada e divergindo, não de outro gênero, que já é um ramo separado há milhões de anos.
Raças biológicas humanas não existem. A espécie humana é jovem (os fósseis mais antigos atribuídos a Homo sapiens têm cerca de 300 mil anos), saiu da África há pouco tempo em escala evolutiva e tem variação genética pequena: a diferença média entre duas pessoas é de cerca de 0,1 % do genoma, e a maior parte dessa variação existe dentro de qualquer população, não entre populações. Não há subdivisões biológicas na espécie que correspondam às categorias de cor de pele ou de origem geográfica usadas no cotidiano; raça, no humano, é categoria social e histórica. O PAS 3 cobrou isso duas vezes. Em 2008, a partir da tela Operários, de Tarsila do Amaral, o item 35 afirmou que era possível reconhecer na pintura, com base na classificação biológica, as diversas raças que constituem o povo brasileiro: gabarito E. Em 2018, o item 77 afirmou que a migração de Homo sapiens, surgido na África, acarretou o surgimento de raças humanas: gabarito E. Nos dois, a palavra “biológica”, explícita ou implícita, derruba o item: o que a tela mostra e o que a migração produziu é variação dentro de uma só espécie.
O que é uma espécie e o que a separa de outra: as barreiras reprodutivas
Cães de qualquer raça cruzam entre si e têm filhotes férteis; cão e lobo também; cavalo e jumento geram a mula, que nasce viva e saudável e é estéril; cão e gato não geram nada. O critério que separa esses casos é o do conceito biológico de espécie, formulado por Ernst Mayr em 1942: uma espécie é um conjunto de populações naturais cujos indivíduos cruzam, ou poderiam cruzar, entre si e geram descendentes férteis, e que estão reprodutivamente isolados de outros conjuntos. Cão e lobo são, por esse critério, a mesma espécie (o cão é tratado como subespécie, Canis lupus familiaris); cavalo e jumento são espécies diferentes, porque o híbrido não se reproduz.
O conceito é o mais usado e tem limites conhecidos, que a página de taxonomia e sistemática discute: não se aplica a organismos de reprodução assexuada (bactérias não “cruzam”), não se aplica a fósseis (não há como testar o cruzamento), e tropeça em híbridos férteis entre espécies que todo mundo reconhece como distintas (muitas plantas, alguns peixes e aves). Por isso há outros conceitos (morfológico, ecológico, filogenético), e a espécie é tratada como hipótese revisável. Em prova, a frase correta diz que o conceito biológico define espécie pelo cruzamento com descendência fértil e pelo isolamento reprodutivo, e que ele não vale para assexuados e fósseis; a frase errada o aplica a bactérias ou a dinossauros sem ressalva.
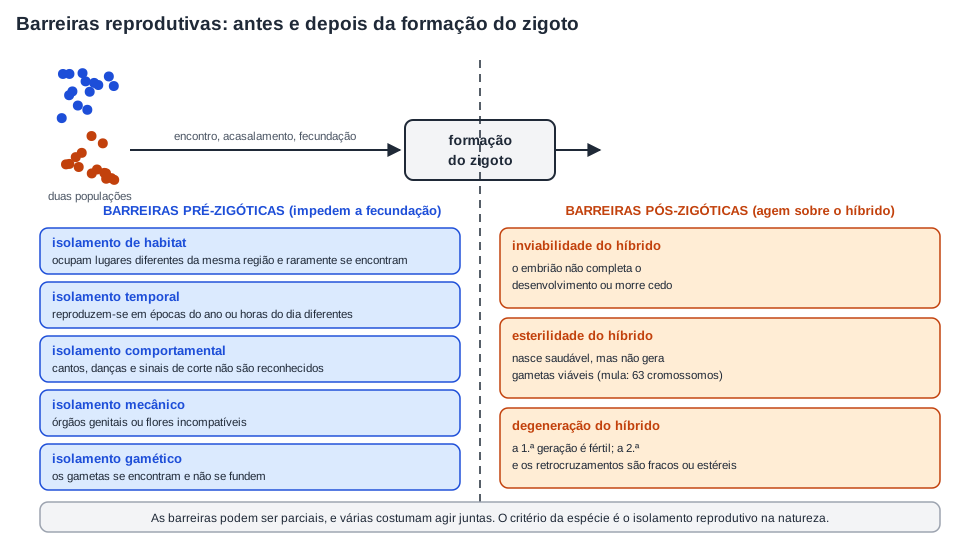
O que impede duas espécies de se fundirem numa só é um conjunto de barreiras reprodutivas, ou mecanismos de isolamento. Elas se dividem conforme o momento em que agem: antes ou depois da formação do zigoto.
As barreiras reprodutivas classificadas pelo momento em que agem. As pré-zigóticas impedem o encontro, o acasalamento ou a fecundação; as pós-zigóticas agem sobre o híbrido já formado. A mula, viva e estéril, é o caso clássico de esterilidade do híbrido. Diagrama autoral.
Barreiras pré-zigóticas e pós-zigóticas
Pré-zigóticas (impedem a fecundação): de habitat, as duas espécies vivem na mesma região mas em lugares diferentes e raramente se encontram (uma cobra que vive na água e outra em terra firme); temporal, reproduzem-se em épocas do ano ou horas do dia diferentes (plantas que florescem em meses distintos; anfíbios de espécies vizinhas com épocas de acasalamento separadas); comportamental, os sinais de corte de uma não são reconhecidos pela outra (canto de aves e de anuros, dança de vaga-lumes, padrão de luz); mecânica, as peças reprodutivas não se encaixam (genitália de insetos, flores que só determinado polinizador alcança); gamética, os gametas se encontram e não se fundem (proteínas de reconhecimento do óvulo e do espermatozoide em animais de fecundação externa, como ouriços-do-mar). Pós-zigóticas (agem depois da fecundação): inviabilidade do híbrido, o zigoto se forma e o embrião não completa o desenvolvimento (cruzamentos entre espécies de sapos do gênero Rana); esterilidade do híbrido, o híbrido nasce e vive, mas não produz gametas viáveis (a mula, o tigreão); degeneração do híbrido, a primeira geração é fértil, mas a segunda ou os retrocruzamentos são fracos ou estéreis (algumas espécies de algodão e de arroz). Várias barreiras costumam agir juntas, e cada uma pode ser parcial.
A mula explica por que a esterilidade acontece. O cavalo tem 64 cromossomos e o jumento, 62. A mula recebe 32 de um e 31 do outro: 63, um número ímpar, com cromossomos que não formam pares perfeitos. Na meiose, o emparelhamento falha e os gametas saem desbalanceados; a mula é um animal inteiro e fértil para nada. Esse é o critério que fecha o caso: cavalo e jumento são espécies diferentes porque o híbrido deles não se reproduz, apesar de ser viável.
A mula não prova que cavalo e jumento são a mesma espécie
O raciocínio errado diz: “se cruzaram e geraram um filhote, são a mesma espécie”. O conceito biológico exige descendentes férteis. Cruzamento com híbrido estéril é justamente a barreira pós-zigótica que separa duas espécies. O erro inverso também aparece: “espécies diferentes nunca cruzam”. Cruzam, às vezes, e geram híbridos viáveis e até férteis em alguns grupos; o que define a separação é o isolamento reprodutivo na natureza, que pode ser parcial. Ausência de cruzamento observado tampouco prova incompatibilidade: pode ser só que as duas populações nunca se encontram.
Especiação alopátrica: barreira, divergência e isolamento
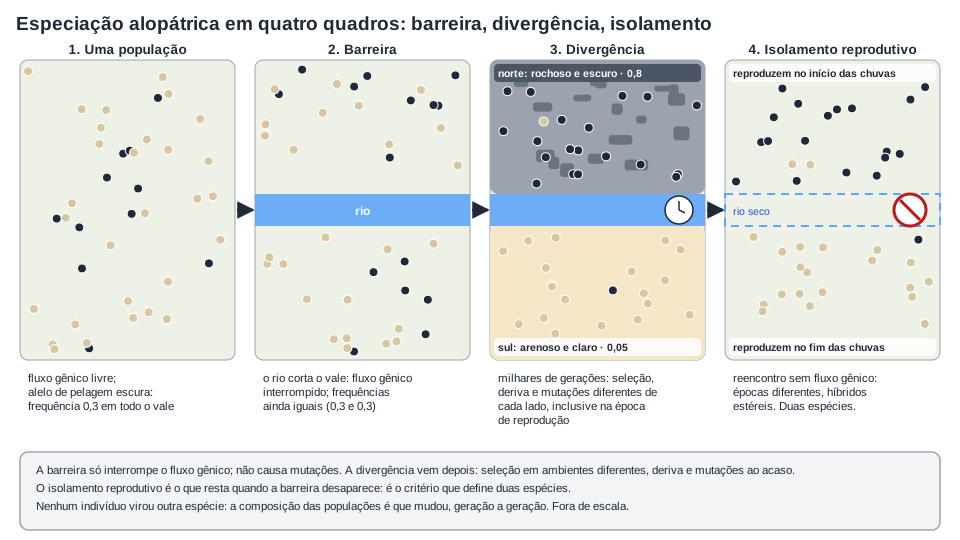
Especiação é o processo pelo qual uma espécie origina duas ou mais. O roteiro mais comum, chamado alopátrico (do grego, “outra pátria”), tem três atos, e a ordem deles é o que os itens cobram.
Ato 1, isolamento geográfico. Uma barreira divide a população e interrompe o fluxo gênico, a troca de alelos que acontece quando indivíduos migram e cruzam. A barreira pode ser um rio que muda de curso, uma cadeia de montanhas que se eleva, um braço de mar que invade, uma geleira, a fragmentação de uma floresta pela agricultura, ou a chegada de alguns indivíduos a uma ilha (nesse caso, a barreira já estava lá e a população é que a atravessou). Nada mudou ainda nas frequências dos alelos: só a comunicação foi cortada.
Ato 2, divergência. De cada lado, mutação, deriva genética e seleção natural empurram as frequências alélicas para rumos próprios. Ambientes diferentes selecionam coisas diferentes; populações pequenas derivam depressa por puro sorteio; mutações diferentes aparecem de cada lado, porque a mutação é rara e ao acaso. A divergência pode atingir qualquer característica, inclusive as que afetam a reprodução: época de acasalamento, canto, forma da genitália, compatibilidade dos cromossomos. A medida dessa divergência em frequências de alelos é o assunto de genética de populações; a fonte da variação, o de mutações.
Ato 3, isolamento reprodutivo. Depois de gerações suficientes, a divergência acumulada impede o cruzamento fértil mesmo que a barreira desapareça. Quando o rio seca e os dois grupos se reencontram, eles já não se reconhecem como parceiros, ou cruzam e geram híbridos estéreis. O que era uma espécie virou duas. Esse é o teste: se, no reencontro, as populações voltam a trocar genes livremente, não houve especiação, houve só divergência de populações da mesma espécie.
A especiação alopátrica em quatro quadros. A barreira só interrompe o fluxo gênico; a divergência vem depois, por seleção, deriva e mutação em cada lado; o isolamento reprodutivo é o que resta quando a barreira desaparece. Fora de escala. Diagrama autoral.
A sequência raça geográfica → subespécie → espécie descreve graus de divergência ao longo do processo, e os limites entre eles são convenções: só o último, o isolamento reprodutivo, tem um critério natural.
Dois casos reais ilustram o roteiro. O istmo do Panamá. Há cerca de 3 milhões de anos, o fechamento do istmo separou o Atlântico do Pacífico; pares de espécies-irmãs de peixes, camarões e ouriços, uma de cada lado, aparentadas e já incapazes de cruzar, são a consequência. A América do Sul isolada. O texto-base do PAS 3 de 2018 descrevia a fauna que surgiu na América do Sul depois da extinção dos dinossauros, quando o continente já se separara da África e ainda não se ligara à América do Norte: mamíferos com placenta hoje quase todos extintos, parentes de tatus, preguiças e tamanduás, e as “aves do terror”, carnívoros gigantes que não voavam. É o segundo quadro do exemplo em escala continental, com 24 milhões de anos de divergência entre a extinção e a fauna descrita.
Vicariância, dispersão e radiação adaptativa
A barreira pode surgir no meio de uma população que já estava lá (vicariância: o rio, a montanha, o istmo) ou a população pode atravessar uma barreira preexistente (dispersão: os poucos tentilhões que chegaram a Galápagos, as drosófilas que chegaram ao Havaí). Nos dois casos o resultado é alopatria. Quando o colonizador encontra muitos ambientes vazios, uma linhagem pode originar muitas espécies em pouco tempo, cada uma especializada num recurso: é a radiação adaptativa. Os tentilhões de Galápagos (mais de uma dezena de espécies, com bicos de quebrar sementes, de pegar insetos, de furar cactos), os pássaros drepanídeos do Havaí e os ciclídeos dos grandes lagos africanos são os exemplos clássicos. A radiação é a especiação repetida a partir de um ancestral comum; ela produz a diversidade, e a extinção a reduz.
Especiação simpátrica e parapátrica: sem barreira geográfica
Nem toda especiação precisa de um rio. Na especiação simpátrica (“mesma pátria”), o isolamento reprodutivo surge dentro de uma população que continua no mesmo lugar. É mais rara e mais difícil de demonstrar, porque o fluxo gênico tende a desfazer a divergência enquanto ela se forma; por isso os casos aceitos têm um mecanismo que corta o fluxo gênico de outro modo.
Poliploidia em plantas. Um erro na meiose ou na mitose pode duplicar o conjunto de cromossomos: uma planta diploide (2n) gera uma tetraploide (4n). A tetraploide cruza mal com a população original, porque o cruzamento 4n×2n gera triploides (3n), com cromossomos que não emparelham e gametas inviáveis; mas cruza bem com outras tetraploides, ou se autofecunda. Em uma geração, uma linhagem reprodutivamente isolada aparece no meio da população-mãe. A poliploidia é frequente em plantas (muitas espécies cultivadas, como o trigo de pão, a batata e o algodão, são poliploides) e rara em animais, porque nas plantas a autofecundação e a reprodução vegetativa dão ao novo indivíduo com quem se reproduzir. O mecanismo cromossômico está em mutações e nos ciclos de vida de grupos vegetais.
Mudança de hospedeiro: a mosca da maçã. A mosca Rhagoletis pomonella põe ovos nos frutos de uma planta nativa da América do Norte, o espinheiro-alvar. A macieira, trazida da Europa, frutifica semanas antes. No século XIX, parte das moscas passou a usar a maçã, e a diferença de época de frutificação separou as duas populações no tempo: as moscas da maçã amadurecem e acasalam antes, sobre a planta em que nasceram. Guy Bush descreveu o caso em 1969 como formação de raças de hospedeiro em simpatria; o grupo de Jeffrey Feder mostrou, depois, que as raças já diferem geneticamente e cruzam pouco entre si. É uma especiação em curso, por isolamento temporal e de habitat dentro da mesma área.
Seleção sexual nos ciclídeos. Os lagos africanos Vitória, Malawi e Tanganica abrigam centenas de espécies de peixes ciclídeos cada um, muitas diferenciadas sobretudo pela cor dos machos e pela preferência das fêmeas. O lago Vitória secou por completo no fim do Pleistoceno (as estimativas vão de cerca de 12 mil a 15 mil anos atrás) e hoje tem mais de 500 espécies endêmicas. A velocidade dessa radiação é discutida: parte da diversificação pode ser anterior à última seca, em lagos vizinhos, e um estudo de 2017 atribuiu a rapidez à hibridação entre linhagens colonizadoras, que forneceu variação de sobra para a seleção trabalhar. O que não se discute é que são muitas espécies em muito pouco tempo geológico, com isolamento comportamental (escolha de parceiro pela cor) fazendo o papel que, em terra, faz o rio.
Especiação parapátrica, em uma frase: as populações ocupam áreas vizinhas, com contato só numa faixa de fronteira, e divergem ao longo de um gradiente ambiental (solo contaminado por metais e solo normal, por exemplo) até que o cruzamento na fronteira se torne desvantajoso e cesse.
Zonas híbridas, reforço e espécies em anel
Quando duas populações que divergiram em alopatria voltam a se encontrar antes de o isolamento estar completo, forma-se uma zona híbrida: uma faixa em que cruzam e produzem híbridos. Três destinos são possíveis. Se os híbridos são tão aptos quanto os pais, as populações se fundem. Se os híbridos são menos aptos, a seleção favorece indivíduos que evitam cruzar com a outra população, e as barreiras pré-zigóticas se fortalecem: é o reforço, que completa a especiação. Se os híbridos são menos aptos mas continuam sendo produzidos a cada geração por imigrantes, a zona híbrida se mantém estreita e estável. Uma espécie em anel é o caso em que uma série de populações vizinhas se estende em torno de uma barreira (uma cadeia de montanhas, um vale) e cada população cruza com a vizinha, mas as duas pontas do anel, quando se encontram do outro lado da barreira, já não cruzam: a especiação vista no espaço em vez de no tempo. As salamandras Ensatina da Califórnia, estudadas por Robert Stebbins a partir de 1949 e por David Wake, rodeiam o Vale Central: as formas que se encontram no sul do vale comportam-se como espécies distintas, embora estejam ligadas por uma cadeia contínua de populações que cruzam entre si.
Quanto tempo leva. A especiação costuma levar milhares a milhões de anos, mas não tem relógio fixo: a poliploidia faz uma linhagem isolada em uma geração, a linhagem híbrida de Daphne Major ficou isolada em três gerações, os ciclídeos do Vitória se multiplicaram em dezenas de milhares de anos, e os pares de espécies dos dois lados do Panamá levaram da ordem de 3 milhões. A velocidade depende do mecanismo, do tamanho da população e da força da seleção. Se a mudança é gradual e contínua ou se concentra em episódios rápidos separados por longos períodos de estabilidade (o equilíbrio pontuado, proposto por Niles Eldredge e Stephen Jay Gould em 1972 a partir do registro fóssil) é uma discussão sobre o ritmo, não sobre o fato, e está em teorias evolutivas.
Ler os dados: coluna, tabela, árvore com tempo e mapa
Os itens de evidência e especiação quase sempre vêm com um dado para ler. Quatro formatos cobrem a maioria.
Coluna estratigráfica. A camada de baixo é a mais antiga, salvo aviso de que a sequência foi dobrada ou invertida. Um fóssil que aparece em várias camadas viveu durante todo aquele intervalo; um que aparece só numa camada é candidato a fóssil-guia. Uma camada de cinza vulcânica datada por potássio-argônio dá idade absoluta às camadas vizinhas: o que está abaixo é mais antigo que a cinza, o que está acima é mais recente. Se um item afirma que o fóssil da camada superior é ancestral do fóssil da camada inferior, está invertendo o tempo.
Tabela de diferenças moleculares. Leia a tabela como distâncias: pares com menos diferenças têm ancestral comum mais recente. Para montar a árvore, una primeiro o par com menos diferenças, depois junte a ele a espécie que difere menos desse par, e assim por diante. Confira a consistência: duas espécies que são grupos-irmãos devem diferir igualmente de qualquer terceira. Para converter em tempo, multiplique pela taxa dada no enunciado e lembre que o resultado é uma estimativa.
Exemplo resolvido: ordenar o parentesco por uma tabela. A tabela dá o número de diferenças de aminoácidos numa proteína entre quatro espécies.
Conferência. A tabela é simétrica e os números batem com a hierarquia das categorias (mesmo gênero não aparece aqui, mas mesma família, Felidae, dá a menor distância; mesma ordem, Carnivora, a intermediária; mesma classe, a maior). Dados ilustrativos, construídos para ter esse encaixe; numa tabela real, pequenas inconsistências aparecem e se resolvem com mais genes.
Árvore com escala de tempo. Quando a árvore tem um eixo de tempo, a posição de cada nó é a data estimada da separação. Dois terminais são tanto mais aparentados quanto mais recente (mais perto das pontas) for o nó que os une; o número de nós entre a raiz e um terminal não mede “quão evoluído” ele é. Para contar eventos de especiação numa árvore totalmente resolvida, conte os nós internos: n espécies atuais descendem de n−1 divisões. A leitura formal (rotação de ramos, grupos mono, para e polifiléticos) está em taxonomia e sistemática.
Mapa biogeográfico. Pergunte duas coisas: as áreas de ocorrência são contínuas ou separadas por barreira? E a barreira é mais antiga ou mais recente que o grupo? Distribuição descontínua de um grupo antigo (marsupiais, Mesosaurus) aponta para um continente que se partiu; distribuição em ilhas com espécies endêmicas aparentadas às do continente vizinho aponta para dispersão e radiação; faunas diferentes em lados de um estreito com clima igual apontam para uma barreira que nunca secou (linha de Wallace).
Erros clássicos e como a prova os explora
O PAS 3 cobrou evidências da evolução em onze itens válidos de 2008 a 2021 (concentrados em 2008, 2011, 2013 e 2018) e especiação em dois itens, ambos em 2018. A lista abaixo reúne os erros que esses itens exploraram e os que aparecem em outros exames.
“Não é fóssil porque não mineralizou.” Fóssil é qualquer vestígio preservado; congelados, moldes, pegadas e âmbar contam (PAS 3 2013, item 32, E; 2018, item 84, D).
“Infere-se do texto que a extinção se deveu à seleção natural.” Só se o texto disser; extinção não tem causa única, e um texto que narra uma descoberta não explica uma extinção (PAS 3 2013, item 31, E).
“Extinção é a morte de um indivíduo.” É o desaparecimento de uma espécie (PAS 3 2008, item 101, E).
“O registro fóssil é completo” ou “falta o elo perdido”. O registro é incompleto por razões previsíveis e mesmo assim ordenado; formas de transição existem e são arbustos, não elos.
“Fóssil vivo não evoluiu.” Manteve a forma geral; as sequências e as espécies mudaram.
“Mesmos ossos, funções diferentes: analogia.” É homologia, e indica ancestral comum (PAS 3 2021, item 66, C). Analogia é mesma função com origens independentes, e não indica parentesco.
“Órgão vestigial é inútil, logo a evolução erra.” Vestigial é reduzido em relação ao ancestral; pode ter função secundária. Genes desligados também são vestigiais (PAS 3 2015, item 83, D).
“O embrião humano tem brânquias.” Tem arcos faríngeos homólogos aos que formam brânquias no peixe; neles se formam mandíbula, ouvido e glândulas. O embrião se parece com outros embriões, não com adultos ancestrais.
“A espécie humana surgiu no Cretáceo.” O Cretáceo acabou há 66 milhões de anos; Homo sapiens tem cerca de 300 mil. E Cretáceo é período, não era (PAS 3 2011, item 84, E).
“Há 42 milhões de anos é antes de há 66 milhões.” O tempo geológico se conta para trás (PAS 3 2018, item 83, E).
“O chimpanzé deu origem ao ser humano” ou “uma nova espécie de Homo pode surgir do gorila”. Espécie atual não origina espécie atual; somos primos com ancestral comum extinto (PAS 3 2008, item 97, E; 2018, item 75, E).
“98 % iguais, quase a mesma espécie.” Porcentagem mede distância, não pertencimento; a diferença inclui 46 contra 48 cromossomos e milhões de posições.
“Raças biológicas humanas.” Não existem; a variação é maior dentro das populações que entre elas (PAS 3 2008, item 35, E; 2018, item 77, E).
“Cruzaram e geraram a mula, logo são a mesma espécie.” O conceito exige descendentes férteis; o híbrido estéril é a barreira (pós-zigótica) que os separa.
“Espécies diferentes nunca cruzam.” Cruzam às vezes; o que conta é o isolamento reprodutivo na natureza, que pode ser parcial.
“A barreira geográfica causa as mutações.” A barreira só corta o fluxo gênico; mutação, deriva e seleção fazem a divergência depois, e a variação costuma já existir.
“Isolamento reprodutivo vem antes do geográfico” (na alopátrica). A ordem é barreira → divergência → isolamento reprodutivo; o reprodutivo é o resultado, e é o que resta quando a barreira cai.
“Especiação sempre exige milhões de anos.” Poliploidia isola em uma geração; a linhagem híbrida de Daphne Major, em três; os ciclídeos, em dezenas de milhares de anos.
“O conceito biológico de espécie vale para bactérias e fósseis.” Não vale: sem cruzamento testável, usam-se outros critérios.
“Um indivíduo virou outra espécie.” Especiação acontece com populações, ao longo de gerações.
Onde isso aparece fora da prova
A datação por carbono-14 decide se um sítio arqueológico tem 2 mil ou 10 mil anos e aparece em notícias sobre achados no Brasil; a identidade do código genético é o que permite que uma bactéria produza insulina humana a partir de um gene humano; a comparação de sequências é a ferramenta de rotina para identificar a espécie de um pedaço de carne vendida como outra, rastrear a origem de um surto ou decidir se duas populações de peixe-boi devem ser manejadas como uma só espécie ou duas; e o reconhecimento de que raças biológicas humanas não existem é a base científica de que a medicina e as políticas públicas precisam quando tratam da variação entre pessoas.
O essencial em meia página
Evidência é um conjunto de linhas independentes (fósseis, anatomia, embriologia, biogeografia, moléculas, evolução observada) que convergem para a ancestralidade comum; a teoria faz previsões testáveis (Archaeopteryx, Tiktaalik, fusão do cromossomo 2) e a conclusão vale só até onde o dado autoriza (“infere-se do texto” é contrato).
Fóssil é qualquer vestígio preservado: mineralizado, molde, pegada, âmbar, congelado. Registro incompleto e enviesado (partes duras, ambientes aquáticos), mas em ordem. Extinção é de espécie, não de indivíduo.
Datação relativa: superposição (camada de baixo é mais antiga), fósseis-guia. Absoluta: meia-vida. Carbono-14, 5 730 anos, restos orgânicos até cerca de 50 mil anos; fração restante (1/2)n (1/8 → 3 meias-vidas → 17 190 anos). Potássio-argônio (1,25 bilhão de anos) e urânio-chumbo (4,5 bilhões) para rochas; Terra com 4,54 bilhões de anos. O tempo geológico se conta para trás.
Formas de transição: Archaeopteryx (1861, penas e dentes), Tiktaalik (2006, nadadeira com punho), Pakicetus, Ambulocetus e Basilosaurus (baleias), cavalos em arbusto. “Elo perdido” e “fóssil vivo” são expressões a evitar.
Brasil: Araripe (Crato e Romualdo, Cretáceo), Lagoa Santa (Lund, Luzia), Santa Maria (dinossauros do Triássico), Mesosaurus (Brasil e África, Gondwana).
Homologia = mesma origem, funções podem diferir → ancestral comum (braço, asa de morcego, nadadeira). Analogia = mesma função, origens diferentes → convergência, não parentesco (asa de inseto e de ave). Vestigial = reduzido em relação ao ancestral, com ou sem função secundária (pelve da baleia, GULO).
Embriologia: arcos faríngeos, notocorda e cauda comuns; o embrião se parece com embriões, não com adultos ancestrais; Haeckel exagerou (Richardson, 1997); genes Hox compartilhados.
Biogeografia: linha de Wallace (1859), marsupiais e Mesosaurus em Gondwana, ilhas com endemismo e radiação adaptativa.
Molecular: código genético quase universal → ancestral comum universal; sequências mais parecidas → ancestral mais recente (citocromo c, 1967); relógio molecular (diferenças × taxa = tempo); humano × chimpanzé 98,8 % nas sequências alinhadas e cerca de 96 % com inserções e deleções; 46 × 48 cromossomos e a fusão do 2 (1982, 1991); pseudogenes e retrovírus endógenos nas mesmas posições.
Observada: tentilhões de Daphne Major (desde 1973), E. coli de Lenski (desde 1988), Biston, linhagem híbrida isolada em três gerações.
Humanos: primos dos chimpanzés, não descendentes; nenhuma espécie atual origina outra atual; raças biológicas humanas não existem.
Espécie (Mayr, 1942): cruzamento com descendentes férteis e isolamento reprodutivo; não vale para assexuados e fósseis. Barreiras pré-zigóticas: habitat, temporal, comportamental, mecânica, gamética. Pós-zigóticas: inviabilidade, esterilidade (mula, 63 cromossomos), degeneração.
Alopátrica: barreira → divergência (seleção, deriva, mutação) → isolamento reprodutivo; a barreira não causa a mutação; vicariância e dispersão; radiação adaptativa. Simpátrica: poliploidia, mudança de hospedeiro (Rhagoletis), seleção sexual (ciclídeos). Parapátrica: gradiente. Zonas híbridas, reforço, espécies em anel (Ensatina). Velocidade variável; especiação é de populações, nunca de um indivíduo.
Exercícios temporariamente indisponíveis
Não foi possível consultar o banco de questões. O conteúdo da aula continua disponível.
Flashcards temporariamente indisponíveis
Não foi possível consultar os cartões de revisão.
Evidências evolutivas - Biologia - Ensino Médio
Canal Futura · 10:37
Introdução. Em dez minutos, a aula apresenta as linhas de evidência da evolução (fósseis, anatomia e embriologia comparadas, biogeografia, moléculas) como um conjunto que se reforça. Corresponde às seções “O que conta como evidência” e “Fósseis: o que são, como se formam e o que o registro deixa de fora”. Assista antes de ler e anote, para cada linha citada, um exemplo brasileiro desta página (Araripe, Mesosaurus, Luzia) para testar a ideia.
Evidências da Evolução Biológica - Aula 04 - Módulo 3: Evolução e Classificação dos Seres
Prof. Guilherme Goulart - Biologia · 18:25
Aprofundamento. A aula percorre fósseis, embriologia comparada, anatomia comparada, órgãos homólogos e análogos, convergência e divergência adaptativas, os termos que os itens de prova trocam de lugar. Corresponde às seções “Anatomia comparada” e “Embriologia comparada”. Pause em cada par de estruturas citado e aplique o teste de três perguntas desta página (de onde vem? para que serve? está reduzido?) antes de ouvir a classificação do professor.
Isolamento reprodutivo
Khan Academy Brasil · 6:26
Aplicação. O vídeo discute as etapas do isolamento reprodutivo e os tipos de barreira que impedem a troca de genes entre populações, com legendas em português do Brasil. Corresponde à seção “O que é uma espécie e o que a separa de outra: as barreiras reprodutivas”. Enquanto assiste, classifique cada barreira citada como pré-zigótica ou pós-zigótica e confira com o fluxograma desta página.
Especiação na prova ENEM 2020 - QUESTÃO 03
BIOLOGIA NA VEIA COM PROF. GIAN BRITO · 11:40
Resolução de questão. O professor resolve a questão do ENEM 2020 em que uma população é dividida por um fator de isolamento, diverge e, quando o fator desaparece, pode ou não voltar a se misturar: é exatamente o roteiro barreira → divergência → isolamento reprodutivo da seção “Especiação alopátrica”. Leia o enunciado (reproduzido na descrição do vídeo), decida a resposta pelo exemplo resolvido dos roedores desta página e só então assista à resolução.
Fósseis registram organismos e atividades do passado; sua interpretação combina contexto geológico e outras evidências.Seis linhas de evidência, uma conclusão. Cada caixa é um tipo de dado colhido de modo independente dos outros; o argumento não está em nenhuma delas isoladamente, e sim na convergência. Diagrama autoral.À esquerda, datação relativa: a camada de baixo é mais antiga, e uma camada de cinza vulcânica datável enquadra as camadas de sedimento vizinhas. À direita, datação absoluta pelo carbono-14: a cada 5 730 anos, metade do que restava desaparece. Fora de escala. Diagrama autoral.Homologia: os mesmos ossos, nas mesmas cores, em quatro membros com funções diferentes, herdados de um ancestral mamífero comum. Analogia: a asa da libélula e a do morcego voam, mas uma é lâmina de quitina e a outra é uma mão com membrana. Fora de escala. Diagrama autoral.À esquerda, uma distribuição descontínua hoje (Mesosaurus no Brasil e na África; marsupiais na América do Sul e na Austrália) era contínua em Gondwana. À direita, a linha de Wallace: dois lados de clima parecido e faunas diferentes, separados por um canal que nunca secou. Fora de escala. Diagrama autoral.À esquerda, de uma tabela de diferenças a uma árvore: os pares com menos diferenças se unem primeiro. À direita, o relógio molecular: calibrado por fósseis de idade conhecida, converte diferenças em tempo, com a ressalva de que a taxa varia entre genes e linhagens. Dados hipotéticos. Diagrama autoral.Chimpanzés têm 48 cromossomos; humanos, 46. A previsão: dois cromossomos do ancestral se fundiram em um dos nossos. As marcas: o padrão de bandas do cromossomo 2 humano corresponde aos cromossomos 2A e 2B do chimpanzé, há sequências de telômero no meio do cromossomo 2 e um segundo centrômero inativo. Fora de escala. Diagrama autoral.As barreiras reprodutivas classificadas pelo momento em que agem. As pré-zigóticas impedem o encontro, o acasalamento ou a fecundação; as pós-zigóticas agem sobre o híbrido já formado. A mula, viva e estéril, é o caso clássico de esterilidade do híbrido. Diagrama autoral.A especiação alopátrica em quatro quadros. A barreira só interrompe o fluxo gênico; a divergência vem depois, por seleção, deriva e mutação em cada lado; o isolamento reprodutivo é o que resta quando a barreira desaparece. Fora de escala. Diagrama autoral.Uma barreira geográfica pode reduzir o fluxo gênico. A separação, isoladamente, não demonstra que já ocorreu especiação.Um plano ósseo herdado pode ser modificado para funções diferentes. A homologia se refere à origem evolutiva da estrutura.Vestígios de atividade também são fósseis. A definição não se limita a ossos ou tecidos mineralizados.Asas de insetos e aves exercem função semelhante, mas não derivam de um mesmo membro alado ancestral.Diferenças ecológicas e de época de atividade podem reduzir encontros reprodutivos. A imagem ilustra mecanismos, sem provar isolamento completo.Os mesmos ossos, úmero, rádio, ulna, carpo e dedos, em quatro funções: homologia, evidência de um ancestral mamífero comum.Bacia do Araripe (CE): peixes do Cretáceo inferior preservados em nódulos de calcário, às vezes com músculos e brânquias. Fóssil é qualquer vestígio preservado, e aqui o vestígio é o corpo quase inteiro.Cavalo (64 cromossomos) e jumento (62) geram a mula (63), viável e estéril: a esterilidade do híbrido é a barreira pós-zigótica que mantém as duas espécies separadas.Uma barreira geográfica interrompe o fluxo gênico; a divergência entre as margens vem depois, por seleção, deriva e mutação. É o primeiro ato da especiação alopátrica.Radiação adaptativa: de um ancestral colonizador vindo da América do Sul, mais de uma dezena de espécies de tentilhões, cada uma com o bico ajustado a um alimento.A camada de baixo é mais antiga que a de cima: datação relativa pelo princípio da superposição. Uma camada de cinza vulcânica, datável por potássio-argônio, dá idade absoluta às camadas vizinhas.Marsupiais na América do Sul e na Austrália, e em nenhum outro continente: a distribuição acompanha a história de Gondwana, não só o clima.
Rota PAS 3
Origens da vida e evolução: quem seleciona o que vive · PAS 3
Fontes desta página
Os materiais abaixo contribuíram para a explicação e os exemplos deste assunto.
Rota PAS 3 — Origens da vida e evolução: quem seleciona o que vive · Antes de começar (tabela: fóssil, ancestral comum; ideia 5, tempo profundo); Evidências da evolução: como se reconhece um parentesco antigo (itens 2021/66, 2013/32, 2018/84, 2015/83, 2011/86, 2011/84, 2008/97, 2008/101, 2008/35, 2018/77 e texto-base do poema O morcego); Especiação: como uma espécie vira duas (itens 2018/75 e 2018/83, texto-base da fauna sul-americana); Como a banca cobra (item 2013/31 e texto-base do mamute); Exercícios 5 e 15; Banco de treino T11–T14
Recorte por assunto: evidências e especiação. Lamarck, Darwin e a síntese, seleção em ação, genética de populações, origem da vida e o bloco do cupuaçu, do mesmo capítulo, ficam nas páginas próprias.
Rota PAS 3 — Gabarito dos exercícios do capítulo 3 de Biologia · Itens 5 (par de órgãos homólogos, A) e 15 (isolamento geográfico e especiação, C)
Conferência dos gabaritos dos exercícios usados como referência para as questões autorais.
Rota PAS 3 — Resoluções do Banco de treino do capítulo 3 de Biologia · T11 (2013/31), T12 (variante de 2013/32), T13 (2021/66), T14 (asas de aves e insetos como homólogas, E)
Conferência dos gabaritos dos itens reais e do padrão de erro da etiqueta trocada.
Rota PAS 2 — Sistemática, taxonomia, vírus e bactérias · Árvores filogenéticas: o parentesco desenhado
Lido para manter coerência da leitura de árvores com a página de taxonomia e sistemática, que é a dona dos itens 2009/90–92.
Biologia EM1 — Capítulo 2: a origem da vida · Idade da Terra (4,54 bilhões de anos) e estromatólitos de 3,48 bilhões de anos como fósseis mais antigos aceitos
Coerência das datas com a página de origem da vida.