O inseticida que a prefeitura usava contra o mosquito da dengue deixou de funcionar em poucos anos. A frase "o mosquito se adaptou ao veneno" erra o sujeito e a ordem dos fatos: quem mudou foi a população, e a variante resistente existia antes da primeira aplicação. O que exatamente a seleção natural faz, o que ela não faz, e como se mede isso?
O que você vai aprender
Enunciar as três condições da seleção natural (variação, hereditariedade, reprodução diferencial) e usar a ordem mutação antes, seleção depois para julgar frases em que o agente seletivo produz a característica.
Definir aptidão como sucesso reprodutivo relativo, calcular aptidão absoluta, aptidão relativa (w) e coeficiente de seleção (s) a partir de uma tabela antes/depois, e explicar por que a frequência de um tipo pode subir enquanto o seu número absoluto cai.
Distinguir o fenótipo sobre o qual a seleção age dos alelos cujas frequências mudam, explicando por que a seleção contra um fenótipo recessivo raro é lenta e por que plasticidade fenotípica não é evolução.
Listar o que a seleção natural não faz (não cria variação, não tem objetivo, não produz perfeição, não age pelo bem da espécie, não para) e reconhecer cada erro em itens de prova.
Classificar seleção direcional, estabilizadora e disruptiva pela comparação de distribuições antes e depois (posição do pico, largura, número de picos) e associar cada modo a um exemplo medido.
Explicar como a seleção dependente de frequência e a vantagem do heterozigoto mantêm variação, usando o alelo da hemoglobina S e a malária com os dados de risco relativo e distribuição geográfica.
Descrever as duas vias da seleção sexual (intrassexual e intersexual), o dimorfismo sexual que resulta delas e por que um ornamento que custa sobrevivência pode se espalhar.
Comparar seleção natural, seleção artificial e transgenia (quem escolhe, critério, fonte da variação, entrada de DNA exógeno) com os casos do cão, do milho, das brássicas, dos pombos de Darwin e do cupuaçu, e apontar os limites do melhoramento (perda de variabilidade, defeitos arrastados).
Explicar a resistência a antibióticos, inseticidas e herbicidas como rodadas de seleção sobre mutação preexistente, calcular a frequência de resistentes após n aplicações e justificar as estratégias de manejo (rotação de mecanismos, área de refúgio).
Definir adaptação como resultado populacional da seleção, separá-la de aclimatação e aprendizado, e explicar a origem gradual de estruturas complexas como o olho.
Descrever oito casos de evolução observada (Daphne Major, Biston betularia, Lenski, guppies, Anolis, peixes-espinho, mariposas urbanas, bacalhau) nomeando o agente seletivo, o que foi medido e o modo de seleção.
Ler textos-base e itens no formato do PAS (bloco do cupuaçu de 2025, experimento das placas de 2024, herbicida de 2016, pássaros do cerrado de 2017, anemia falciforme de 2022) aplicando a ficha de Darwin, o teste da ordem e o contrato do "infere-se do texto".
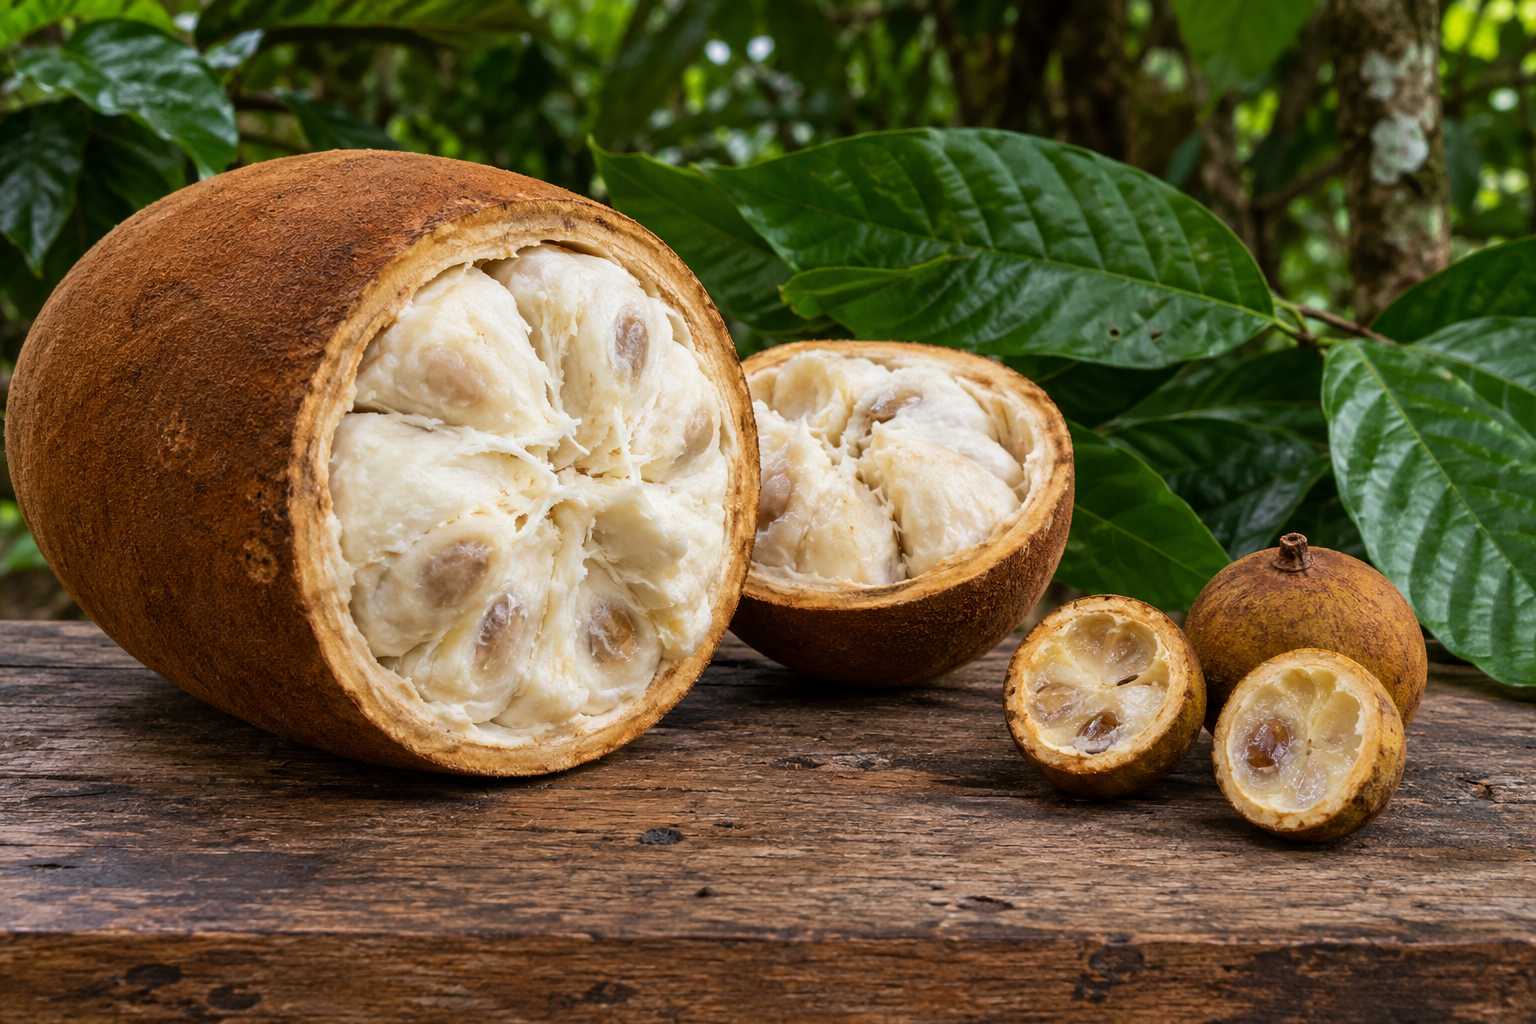
O xampu contra piolho que resolvia o problema em uma aplicação, quando seus pais eram crianças, hoje quase não funciona. O inseticida que a prefeitura borrifava contra o mosquito da dengue precisou ser trocado. Um antibiótico barato de 1950 não cura mais boa parte das infecções de hospital. E uma fruta amazônica de polpa generosa, o cupuaçu, não existe selvagem em lugar nenhum: povos indígenas do Rio Negro a produziram, ao longo de milênios, replantando os frutos maiores de uma parente modesta, o cupuí. As quatro cenas têm o mesmo mecanismo. Em cada geração, alguns indivíduos deixam mais descendentes que outros, e a diferença não é sorteio: ela acompanha uma característica herdável. Depois de muitas gerações, a população é outra. Esse mecanismo chama-se seleção natural, e esta página o desmonta peça por peça: as condições que o fazem funcionar, o que ele faz e o que ele não faz, os modos pelos quais ele muda (ou mantém) uma distribuição, a seleção sexual e a artificial, a resistência a venenos como seleção em tempo real, a adaptação como resultado e os casos em que biólogos mediram a seleção acontecendo, com data e número.
A história de quem descobriu o mecanismo, o argumento de Darwin em observações e inferências, Lamarck e a síntese moderna estão em teorias evolutivas; aqui a história entra em uma frase quando precisa. A conta que transforma seleção em frequências de alelos, com o teorema de Hardy-Weinberg, a deriva genética e o fluxo gênico, está em genética de populações. As evidências de que a evolução aconteceu e o roteiro pelo qual uma espécie vira duas estão em evidências da evolução e especiação. De onde vem a variação sobre a qual a seleção age está em mutações.
Três condições bastam, e nenhuma delas é força
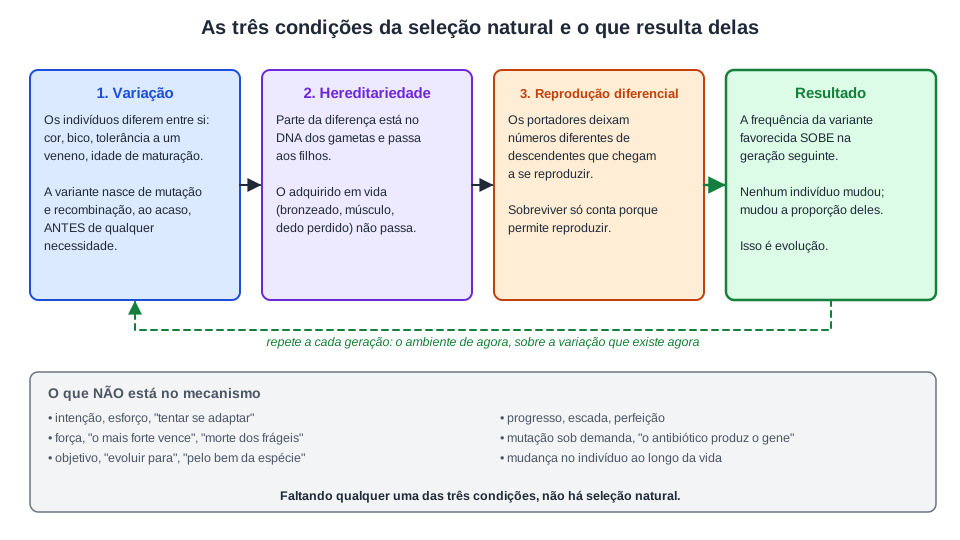
A seleção natural acontece sempre que três coisas são verdadeiras ao mesmo tempo numa população.
Variação. Os indivíduos diferem entre si em alguma característica: cor, tamanho do bico, tolerância a um veneno, idade em que começam a se reproduzir. Sem diferença não há o que selecionar.
Hereditariedade. Pelo menos parte dessa diferença passa de pais para filhos, porque está no DNA dos gametas. Um bronzeado, um músculo treinado ou um dedo perdido não contam: são adquiridos, morrem com o indivíduo.
Reprodução diferencial. Os portadores das variantes não deixam o mesmo número de descendentes. Alguns sobrevivem mais, outros se reproduzem mais, outros fazem as duas coisas; o que importa é a contagem de filhos que chegam a se reproduzir.
Quando as três valem, a geração seguinte nasce com uma proporção diferente das variantes. É só isso. Não há intenção, não há esforço, não há “mais forte”. Há uma população em que quem tem a variante A deixa, em média, mais filhos que quem tem a variante B, e por isso A fica mais comum.
As três condições da seleção natural e o resultado. Faltando qualquer uma, não há seleção: sem variação não há o que escolher, sem hereditariedade a vantagem não passa adiante, sem reprodução diferencial a proporção não muda. A faixa inferior lista o que o mecanismo não contém. Diagrama autoral.
Repare na ordem. A variante já existe quando o ambiente a favorece. A cor escura da mariposa, o alelo que inativa o antibiótico, o bico um pouco maior: tudo isso nasceu de mutação ou de recombinação, ao acaso, antes e independentemente de ser útil. O ambiente não cria a variante; ele muda quem deixa descendentes. Essa ordem, mutação antes e seleção depois, é o teste que decide a maioria dos itens de prova sobre o assunto, e esta página vai voltar a ele várias vezes.
O que evolui é a população, e o que muda é uma frequência
Um indivíduo nasce e morre com o mesmo genótipo. Ele não evolui, não “se adapta” no sentido evolutivo, não transmite o que aprendeu. O que evolui é a população: o conjunto de indivíduos da mesma espécie que vive no mesmo lugar e se reproduz entre si. E o que muda é a frequência de uma variante, isto é, a fração dos indivíduos (ou dos alelos) que a carregam. Se numa população de 1 000 mosquitos 10 toleram o inseticida, a frequência dos tolerantes é 10/1000=0,01, ou 1 %. Se, três aplicações depois, são 400 em 1 000, a frequência é 0,40. Essa mudança, de 0,01 para 0,40, é evolução, por definição: mudança das características hereditárias de uma população ao longo das gerações. Nenhum mosquito mudou; mudou a proporção deles.
Aptidão é uma conta, não um elogio
A palavra que os biólogos usam para “deixa mais descendentes” é aptidão (em inglês, fitness). Aptidão é o sucesso reprodutivo de um tipo, medido em relação aos outros tipos da mesma população e no mesmo ambiente. Não é força, não é tamanho, não é inteligência, não é saúde. Um parasita microscópico que se reproduz aos milhões tem aptidão maior que um predador musculoso que deixa dois filhotes. Uma planta pequena que produz muitas sementes em solo pobre é mais apta ali do que a planta grande que produz poucas.
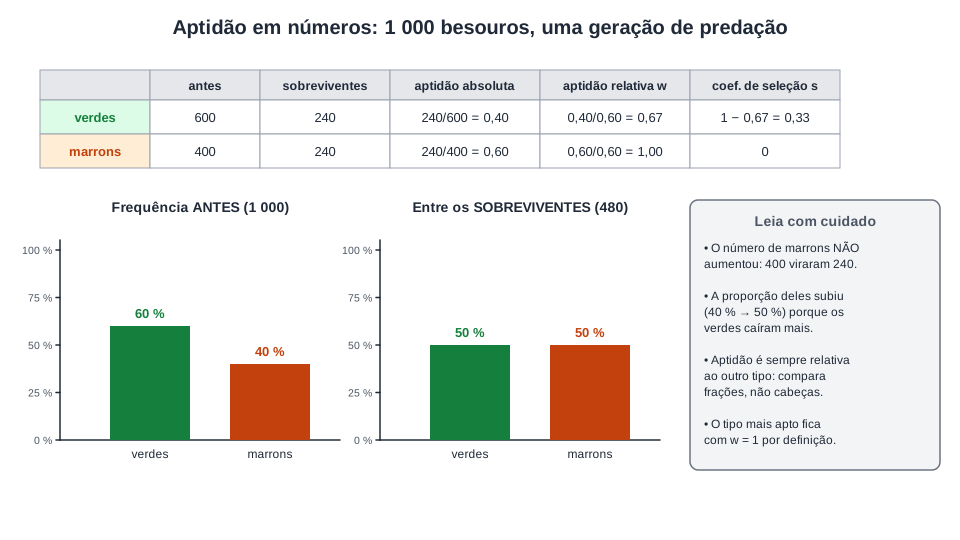
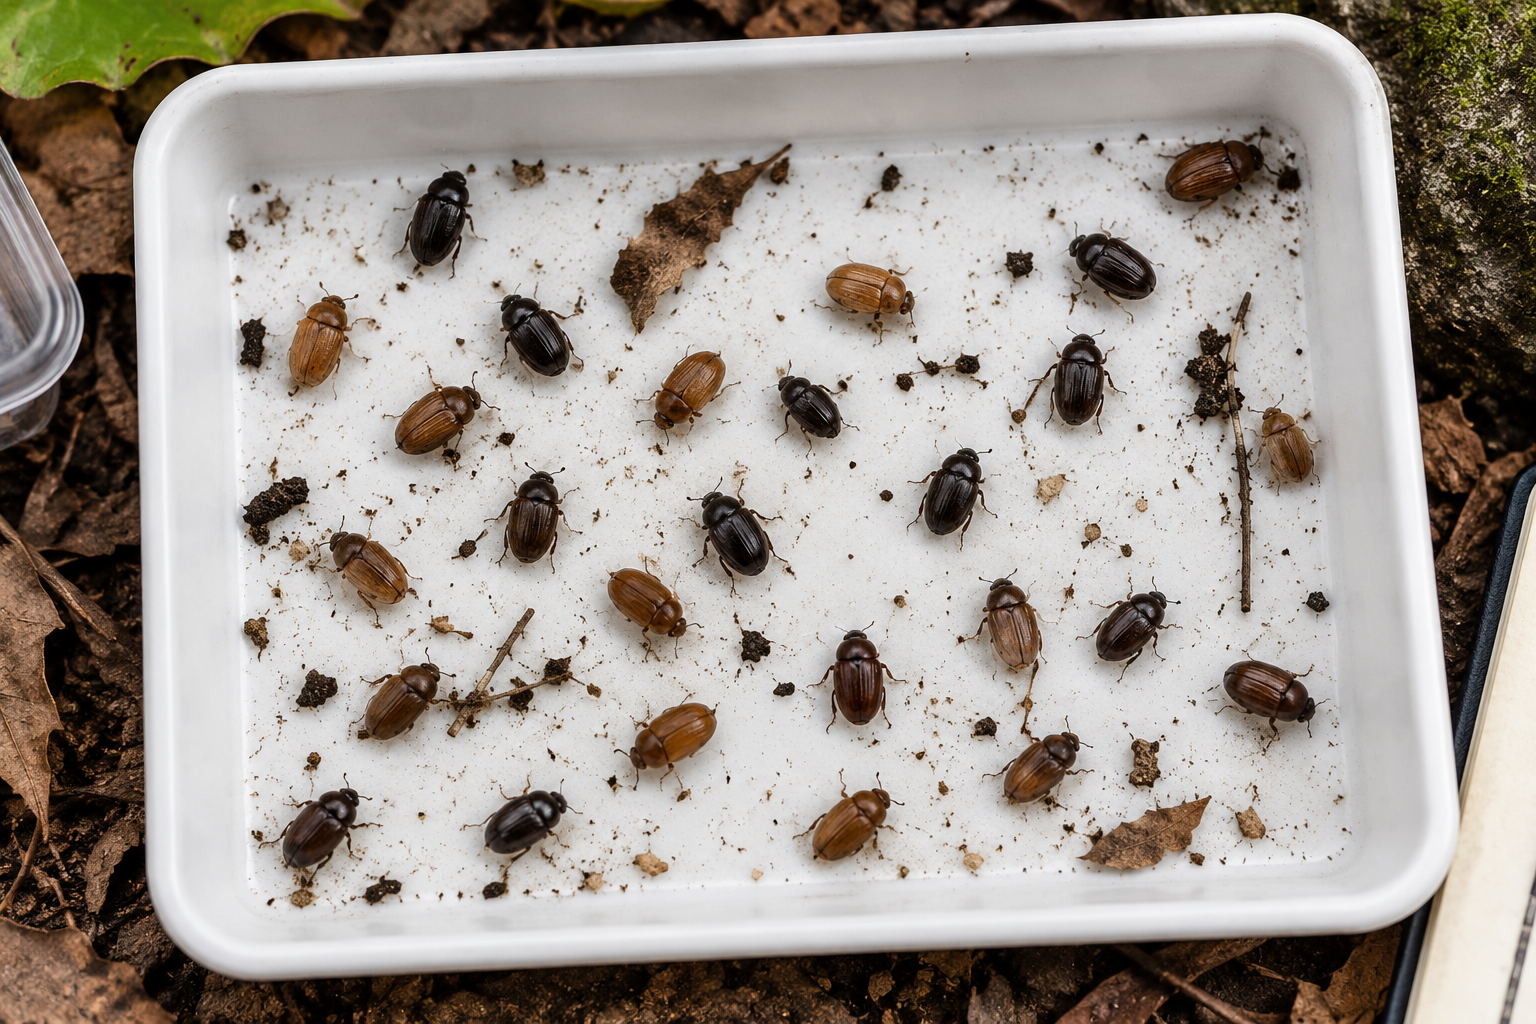
A conta é simples e vale a pena fazer uma vez com números. Numa população de 1 000 besouros, 600 são verdes e 400 são marrons, e a cor é herdada. Pássaros caçam sobre folhas secas: até a idade reprodutiva sobrevivem 240 verdes (40 % deles) e 240 marrons (60 % deles). A aptidão absoluta de cada tipo é a fração que sobreviveu: 0,40 para os verdes e 0,60 para os marrons. A aptidão relativa (w) divide tudo pelo maior valor, de modo que o tipo mais apto fica com w=1:
wmarrom=0,600,60=1wverde=0,600,40≈0,67
Os verdes deixam cerca de dois terços dos descendentes que os marrons deixam, por indivíduo. O coeficiente de seleção contra os verdes é s=1−w=0,33. E a frequência dos marrons, que era 400/1000=0,40, passa entre os sobreviventes a 240/480=0,50. Uma geração, dez pontos percentuais.
A conta da aptidão num exemplo de uma geração. A aptidão absoluta é a fração que chegou a se reproduzir; a relativa divide pelo maior valor. Repare que o número de marrons caiu (de 400 para 240) e mesmo assim a frequência deles subiu: aptidão compara tipos, não conta cabeças. Diagrama autoral; valores do exemplo do texto.
Três detalhes dessa conta aparecem em prova. Primeiro, aptidão é relativa: o mesmo tipo pode ser o mais apto num ambiente e o menos apto no vizinho, e o ambiente que muda troca o vencedor. Segundo, frequência não é quantidade: a proporção de um tipo pode subir enquanto o número absoluto dele cai, como no exemplo. Terceiro, sobreviver só importa porque permite reproduzir: um indivíduo que vive cem anos sem filhos tem aptidão zero, e um que morre jovem depois de deixar dez filhos férteis tem aptidão alta. É por isso que características que encurtam a vida, mas aumentam o número de parceiros, podem se espalhar, como a seção sobre seleção sexual mostra.
"Sobrevivência do mais apto" não é "vitória do mais forte"
A expressão “sobrevivência do mais apto” não é de Darwin: é de Herbert Spencer (1864), e Darwin a adotou a partir da quinta edição de A origem das espécies (1869), sempre no sentido de “melhor ajustado ao ambiente local”. Quem a traduz por “o mais forte vence”, “morte dos mais frágeis” ou “superioridade” está descrevendo o darwinismo social do século XIX, uma ideologia, e não a biologia. O item 67 do PAS 3 de 2025 atribuiu a Darwin uma seleção natural “que leva à morte dos mais frágeis e à vantagem evolutiva dos mais fortes”: Errado. A história da expressão está em teorias evolutivas; o que importa aqui é o critério: apto é quem deixa mais descendentes, e ponto.
A seleção age no fenótipo; a evolução acontece nos alelos
O pássaro não vê o genótipo do besouro. Ele vê a cor. A seleção natural age sempre sobre o fenótipo, o conjunto de características expressas: cor, forma, comportamento, fisiologia. A evolução, porém, é mudança nas frequências de alelos, porque só o que está no DNA passa adiante. Entre as duas coisas há um filtro que vale conhecer.
Dominância esconde alelos. Se a cor marrom é dominante (M) e a verde é recessiva (m), um besouro Mm é marrom e sobrevive como marrom, mas carrega e transmite o alelo m. A seleção contra os verdes elimina os mm, não os Mm. Por isso um alelo recessivo desfavorecido demora muito a desaparecer: quando fica raro, quase todas as suas cópias estão em heterozigotos, invisíveis ao predador. A conta exata, com p2+2pq+q2, está em genética de populações; a consequência qualitativa é desta página: seleção contra um fenótipo recessivo raro é lenta, e “a seleção natural elimina os portadores de anomalias genéticas” é falso duas vezes, porque o portador heterozigoto não expressa a anomalia e porque muitas delas são neutras ou vantajosas em certos ambientes.
Fenótipo é genótipo mais ambiente. Duas plantas de mesmo genótipo, uma ao sol e outra à sombra, têm folhas diferentes. Essa capacidade de um genótipo produzir fenótipos diferentes conforme o ambiente chama-se plasticidade fenotípica, e ela não é evolução: nada mudou nos alelos. A seleção pode agir sobre o fenótipo plástico (o pássaro come a folha que vê), mas só muda a população se a diferença de fenótipo tiver componente herdável. Um item que descreve um indivíduo “se adaptando” ao frio engrossando a pelagem ao longo do inverno descreve plasticidade, não seleção.
Características poligênicas variam de forma contínua. Tamanho do bico, peso ao nascer, altura, tempo até a maturidade: dezenas de genes somados, mais ambiente, produzem uma distribuição em forma de sino, e não duas classes. É sobre essas distribuições que se desenham os modos de seleção da próxima seção.
O que a seleção natural não faz
Boa parte dos erros sobre o assunto não está no que a seleção faz, e sim no que se imagina que ela faça. Quatro negativas, cada uma com o item de prova que ela derruba.
Não cria variação. A seleção escolhe entre variantes que já existem; quem cria é a mutação (um erro de cópia do DNA, ao acaso quanto ao efeito) e a recombinação (a meiose e a fecundação embaralhando alelos que já existem). O antibiótico não fabrica o gene de resistência, o herbicida não “produz genes” na soja, a seca não encomenda bicos maiores. Em 2016, o PAS 3 afirmou que “a aplicação continuada de herbicida em um cultivo de soja resultará na produção de genes de resistência”: Errado. Como a mutação surge e por que ela não mira a necessidade está em mutações.
Não tem objetivo. Nenhuma população evolui “para” alguma coisa. A frase “os peixes ficaram menores para escapar da pesca” tem o sujeito e a preposição errados: a pesca removeu os peixes grandes antes que se reproduzissem, e os que amadureciam pequenos deixaram mais descendentes. O resultado parece planejado porque só vemos o que sobrou. Isso vale também para a espécie como um todo: a seleção não age “para o bem da espécie” nem “para evitar a extinção”. Ela age sobre diferenças de descendência entre indivíduos, e espécies se extinguem o tempo todo.
Não produz perfeição. A seleção só pode trabalhar com o que existe, no ambiente de agora, com as restrições do desenvolvimento e da história da linhagem. O olho dos vertebrados tem a retina montada ao contrário, com os vasos e nervos na frente das células sensíveis à luz e um ponto cego onde o nervo sai; funciona, e foi o suficiente. Toda característica é um compromisso: um bico maior quebra sementes duras, mas é pior para sementes pequenas; um macho mais colorido atrai mais fêmeas e mais predadores. E muitas estruturas foram selecionadas para uma função e depois recrutadas para outra (penas isolavam antes de servirem ao voo), o que se chama exaptação. “Adaptado” quer dizer “suficientemente bom para deixar descendentes aqui”, não “ótimo”.
Não para. Uma população “bem adaptada” continua sob seleção, porque o ambiente muda (clima, predadores, parasitas, outras espécies) e porque a mutação continua a produzir variantes. Em Daphne Major, nas Galápagos, a direção da seleção sobre o bico dos tentilhões mudou várias vezes em trinta anos, seguindo a chuva de cada ano. Não existe o momento em que a evolução termina porque a espécie “chegou lá”.
Três modos de seleção: direcional, estabilizadora e disruptiva
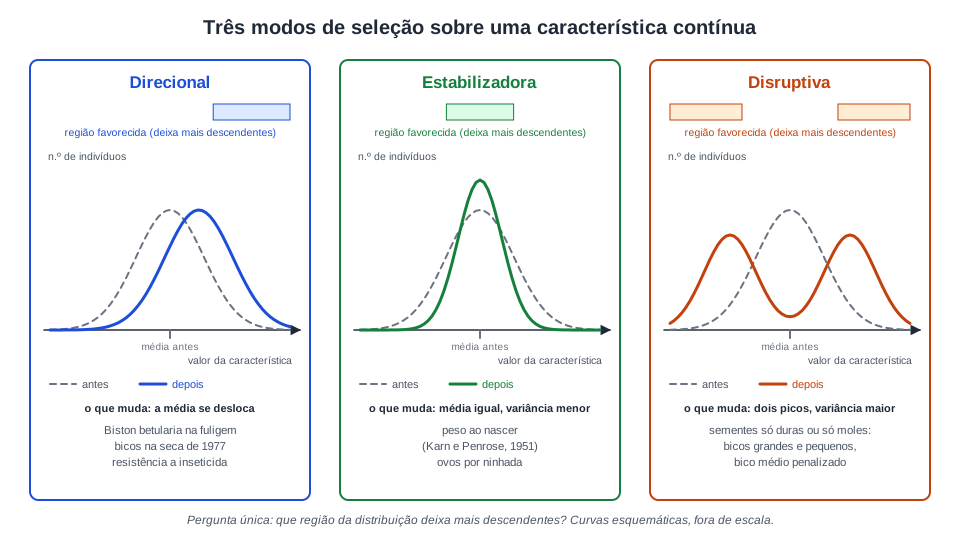
Para uma característica que varia de forma contínua, pergunte: quais valores deixam mais descendentes? A resposta define o modo de seleção e prevê o que acontece com a distribuição na geração seguinte.
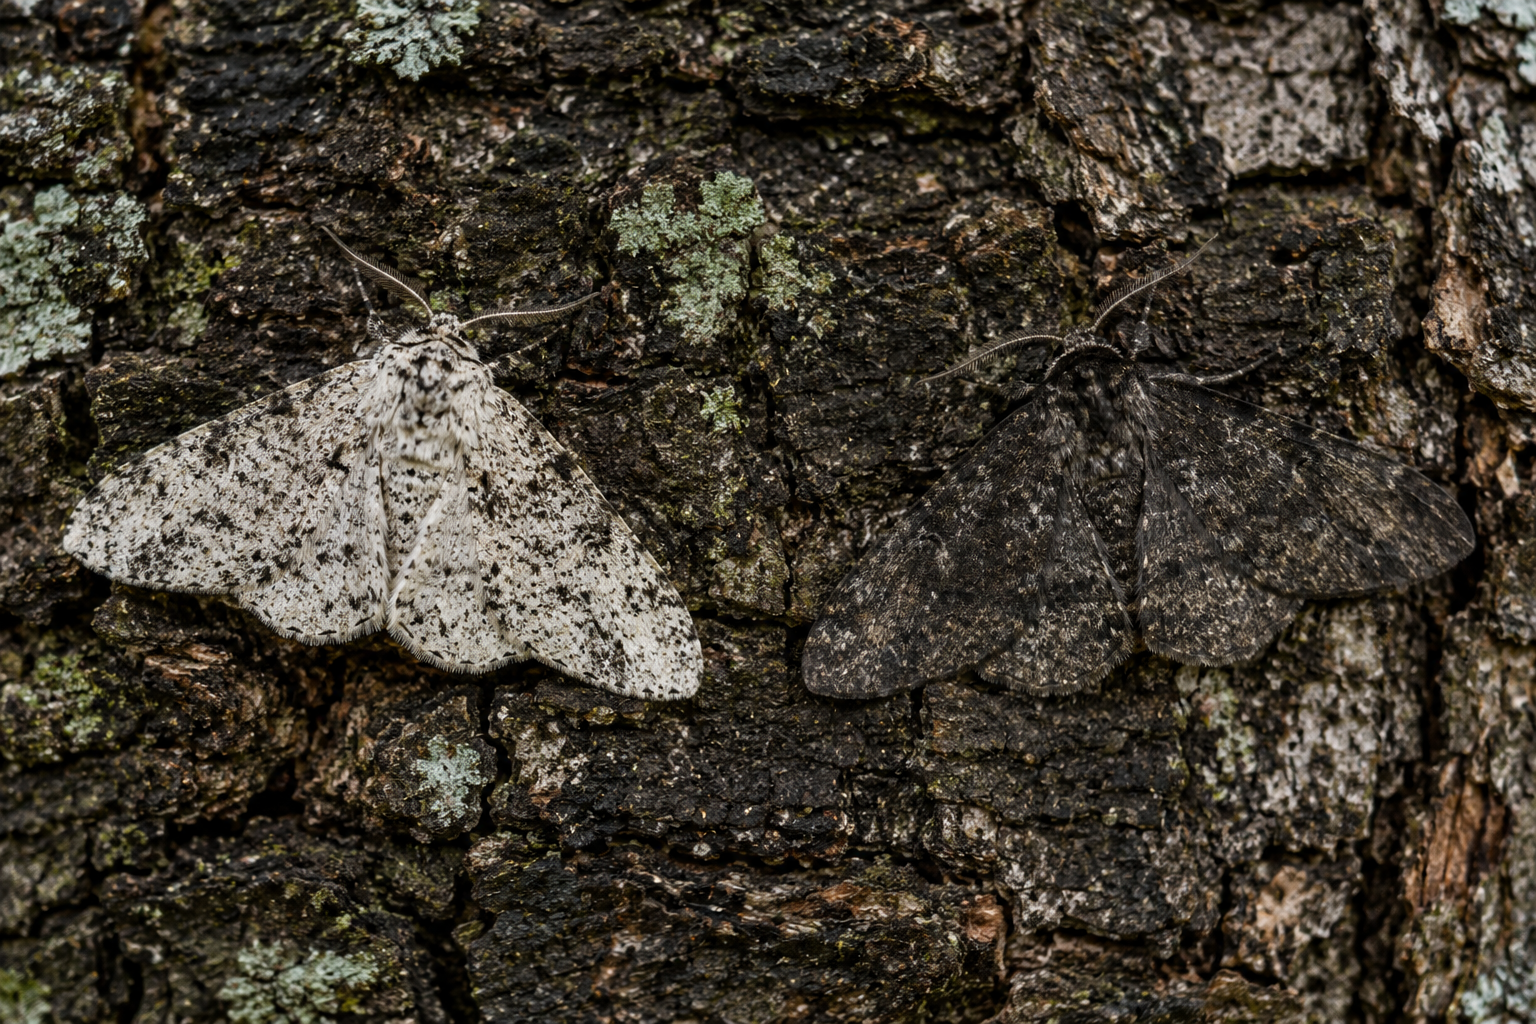
Seleção direcional. Um dos extremos é favorecido. A distribuição inteira se desloca naquele sentido, e a média muda. É o caso da mariposa Biston betularia em cidades cobertas de fuligem (a forma escura favorecida, a média da cor escurecendo), dos tentilhões de Daphne Major na seca de 1977 (bicos maiores favorecidos) e da resistência a um veneno (a tolerância média sobe a cada aplicação). Toda seleção artificial é direcional: o criador escolhe sempre o mesmo extremo.
Seleção estabilizadora. Os valores intermediários são favorecidos e os dois extremos, desfavorecidos. A média não muda; a variância diminui, e a curva fica mais estreita. O exemplo clássico é o peso ao nascer em humanos: num estudo de milhares de nascimentos em Londres (Karn e Penrose, 1951), a mortalidade infantil era maior tanto para bebês muito leves quanto para bebês muito pesados, e mínima perto do peso médio. O número de ovos por ninhada em aves segue a mesma lógica: poucos ovos deixam poucos filhotes, muitos ovos deixam filhotes mal alimentados. A seleção estabilizadora é a mais comum na natureza, e é a razão de muitas características parecerem “constantes”: a seleção está agindo, mas contra as pontas.
Seleção disruptiva (ou diversificadora). Os dois extremos são favorecidos e os intermediários, desfavorecidos. A distribuição se divide em dois picos. Acontece quando há dois recursos distintos e nenhum intermediário: sementes grandes e duras ou pequenas e moles, sem tamanho médio, favorecem bicos grandes e bicos pequenos e penalizam o bico médio, que não quebra as duras e é lento com as pequenas. A seleção disruptiva mantém polimorfismo e, se vier acompanhada de acasalamento preferencial dentro de cada pico, pode ser o primeiro passo de uma especiação; mas dois picos não são duas espécies, e o isolamento reprodutivo precisa ser demonstrado à parte, como explica a página de especiação.
Os três modos de seleção sobre uma característica contínua. A pergunta é sempre a mesma: que região da distribuição deixa mais descendentes? Na direcional a média se desloca; na estabilizadora a média fica e a curva estreita; na disruptiva a curva se parte em dois picos. Diagrama autoral, curvas esquemáticas fora de escala.
Exemplo resolvido: classificar o modo pela distribuição
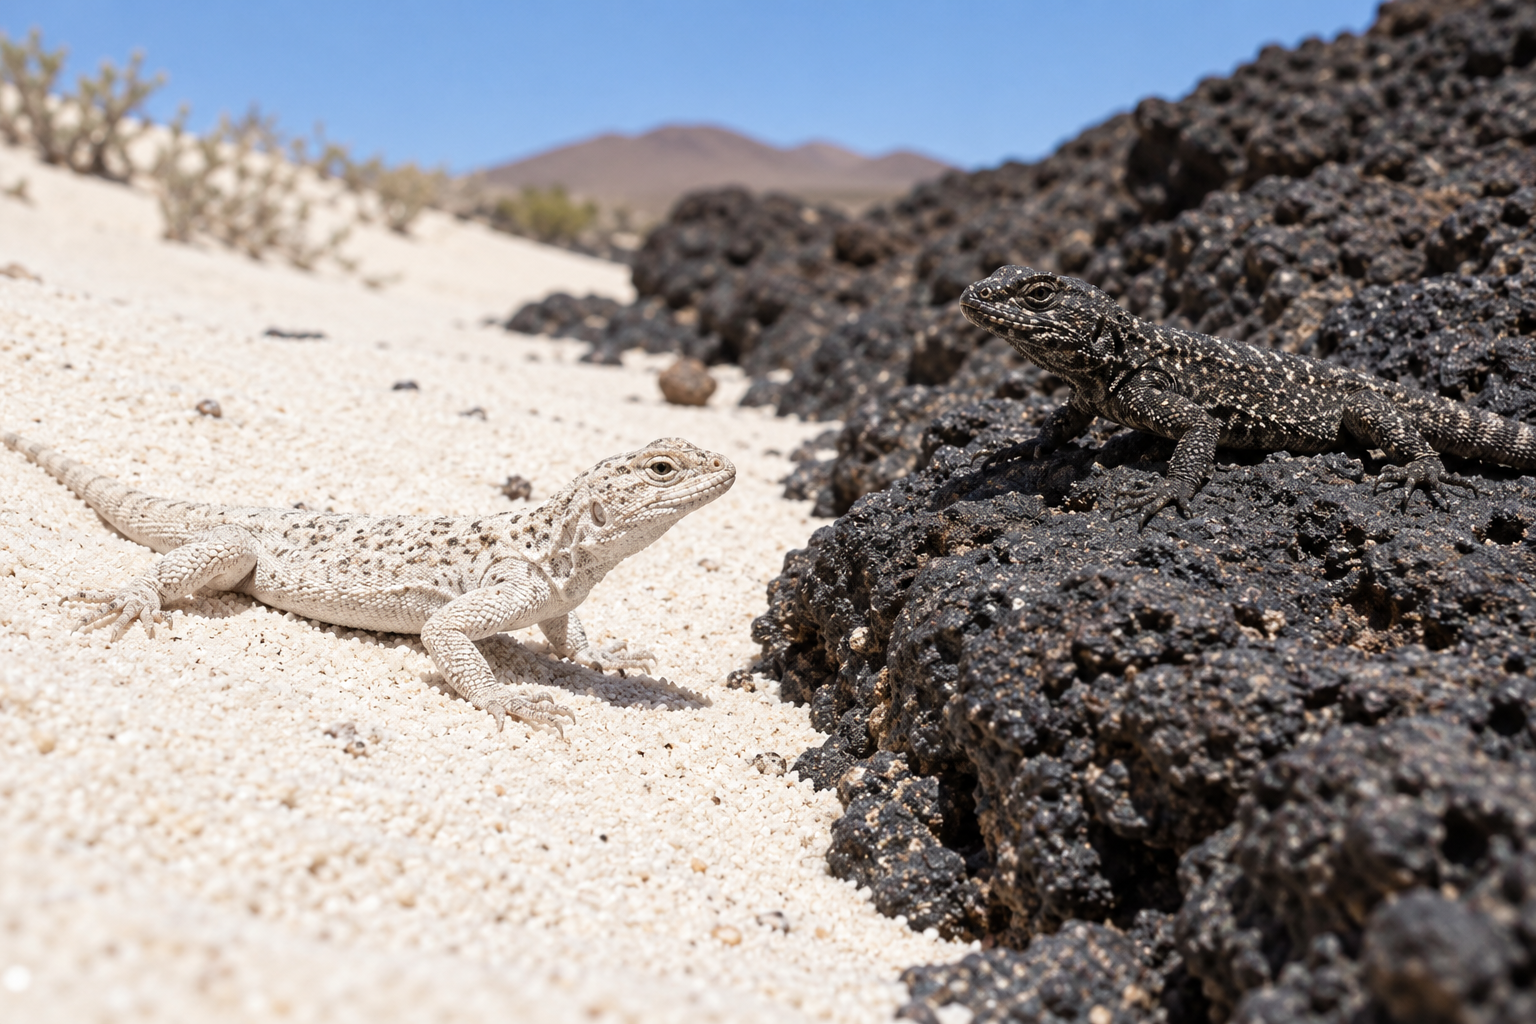
Uma população de lagartos vive em dunas de areia clara com manchas de rocha escura. Em 2010, a cor do dorso, medida numa escala de 0 (muito claro) a 10 (muito escuro), tinha distribuição em sino com média 5. Em 2020, a mesma população mostrava dois grupos: um com média 2 e outro com média 8, e quase nenhum lagarto perto de 5. Qual foi o modo de seleção?
Primeiro, o que mudou: a média geral continua perto de 5 (a média de 2 e 8), mas a forma da curva se partiu em dois picos. Isso elimina a direcional (que deslocaria a média) e a estabilizadora (que estreitaria a curva em torno de 5). Segundo, quem foi favorecido: os extremos, lagartos muito claros (que se escondem na areia) e muito escuros (que se escondem na rocha); os intermediários, visíveis nos dois fundos, deixaram menos descendentes. Seleção disruptiva. Terceiro, a conferência: o ambiente oferece dois fundos e nenhum intermediário, exatamente a condição que favorece dois picos. E a ressalva: dois picos não são duas espécies; para falar em especiação seria preciso mostrar que claros e escuros deixaram de se cruzar.
Se o enunciado dissesse, em vez disso, que em 2020 a média era 8 e a curva tinha a mesma largura, a resposta seria direcional (as rochas escuras tomaram a duna). Se dissesse que a média continuava 5 e a curva estava mais estreita, estabilizadora (um predador que enxerga melhor quem contrasta com a mistura de areia e rocha). O modo se lê na forma da curva depois, comparada com a de antes.
Quando a seleção mantém a variação: dependente de frequência e vantagem do heterozigoto
Se a seleção favorecesse sempre o mesmo tipo, as populações acabariam uniformes. Elas não acabam, e parte da razão é que alguns regimes de seleção mantêm duas ou mais variantes em vez de eliminar uma. O nome genérico é seleção balanceadora, e dois mecanismos importam no nível escolar.
Seleção dependente de frequência. A aptidão de um tipo depende de quão comum ele é. No caso mais frequente, a dependência é negativa: o tipo raro leva vantagem justamente por ser raro. Predadores formam uma “imagem de busca” da presa mais comum e deixam escapar a variante incomum; quando esta se torna comum, a imagem de busca muda e a vantagem troca de lado. O resultado é uma oscilação em torno de um equilíbrio em que nenhuma das formas desaparece. O caso documentado em campo é o de um ciclídeo comedor de escamas do lago Tanganica, Perissodus microlepis: a boca é virada para a esquerda ou para a direita, por herança simples, e cada forma ataca a presa por um flanco; a forma mais comum é a mais vigiada pelas presas e passa a ter menos sucesso, de modo que as frequências das duas oscilam em torno de 50 % sem que nenhuma desapareça (Hori, Science, 1993).
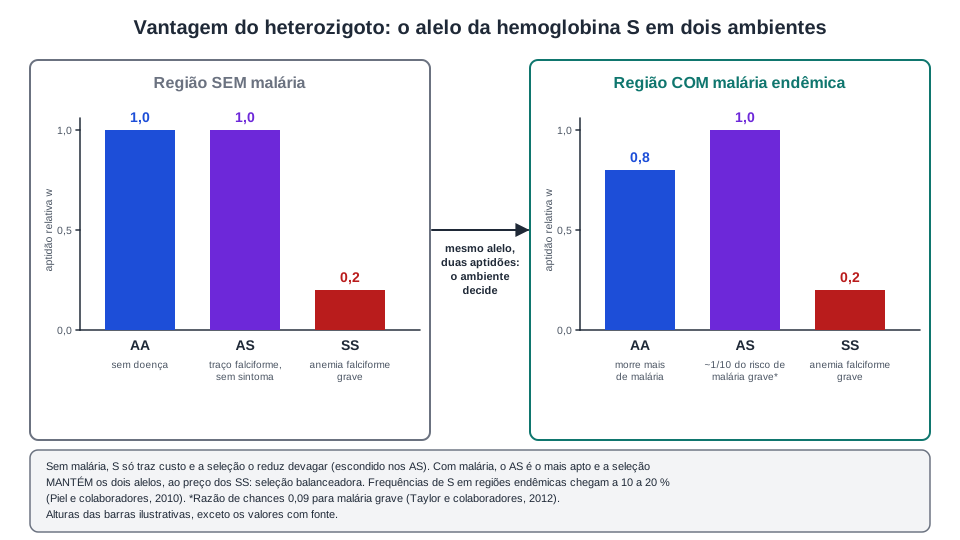
Vantagem do heterozigoto. Quando o genótipo heterozigoto tem aptidão maior que os dois homozigotos, a seleção mantém os dois alelos na população, mesmo que um deles seja letal em dose dupla. O caso-modelo é o alelo βS da anemia falciforme. Em homozigose (SS), o alelo causa a doença, grave e muitas vezes fatal sem tratamento. Em heterozigose (AS), a pessoa tem o traço falciforme, em geral sem sintomas, e resiste melhor às formas graves da malária causada por Plasmodium falciparum. Uma revisão sistemática de 44 estudos (Taylor, Parobek e Fairhurst, 2012) estimou que indivíduos AS têm cerca de um décimo do risco de malária grave em comparação com AA (razão de chances 0,09). Em regiões onde a malária matou crianças durante milhares de anos, o AS deixou mais descendentes que o AA (que morria de malária) e que o SS (que morria da anemia), e o alelo S foi mantido em frequência alta, apesar de matar os homozigotos. A hipótese foi proposta por Anthony Allison em 1954, a partir da coincidência geográfica entre a frequência do traço e a da malária na África Oriental, e confirmada em escala global em 2010, quando um mapa das frequências do alelo S foi comparado com o mapa histórico da malária (Piel e colaboradores, Nature Communications).
A vantagem do heterozigoto no caso da anemia falciforme. Sem malária, o alelo S só traz custo e a seleção o reduz. Com malária, o AS é o genótipo mais apto, e a seleção mantém o alelo S na população mesmo ao preço dos SS. As alturas das barras são ilustrativas; o risco relativo do AS e as frequências regionais têm fonte citada. Diagrama autoral.
A lição evolutiva é a terceira pergunta que mutações deixa em aberto: uma mesma mutação é prejudicial, neutra ou vantajosa dependendo do ambiente e da dose. O alelo S não é “bom” nem “ruim”; é letal em SS, protetor em AS onde há malária e levemente custoso em AS onde não há. No Brasil, onde a malária por P. falciparum é hoje rara fora da Amazônia, a frequência do alelo S (cerca de 2 % na população, segundo o texto-base do PAS 3 de 2025) é herança das populações africanas de origem, não produto da seleção atual. E a população com vantagem do heterozigoto está, por definição, fora do equilíbrio de Hardy-Weinberg, porque há seleção agindo sobre o gene; a conta está em genética de populações.
Em 2022, o PAS 3 cobrou exatamente essa leitura num item de múltipla escolha: dado que baixas na quantidade de oxigênio, incluindo a infecção das hemácias por Plasmodium, levam a crises em indivíduos com anemia falciforme, a opção correta era a de que indivíduos SS, se contraírem malária, entrarão em crise; as outras invertiam a vantagem do heterozigoto (AS correria mais risco que AA, Errado), davam aos SS imunidade à malária (Errado) ou davam ao AA vantagem adaptativa sobre o AS em região endêmica (Errado). O item está reproduzido na lista de exercícios.
Seleção sexual: quando reproduzir vale mais que sobreviver
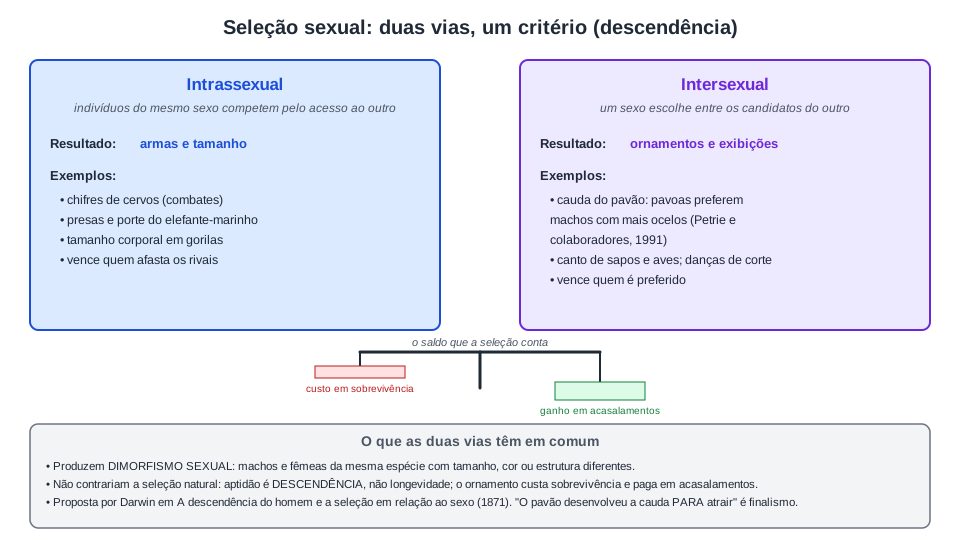
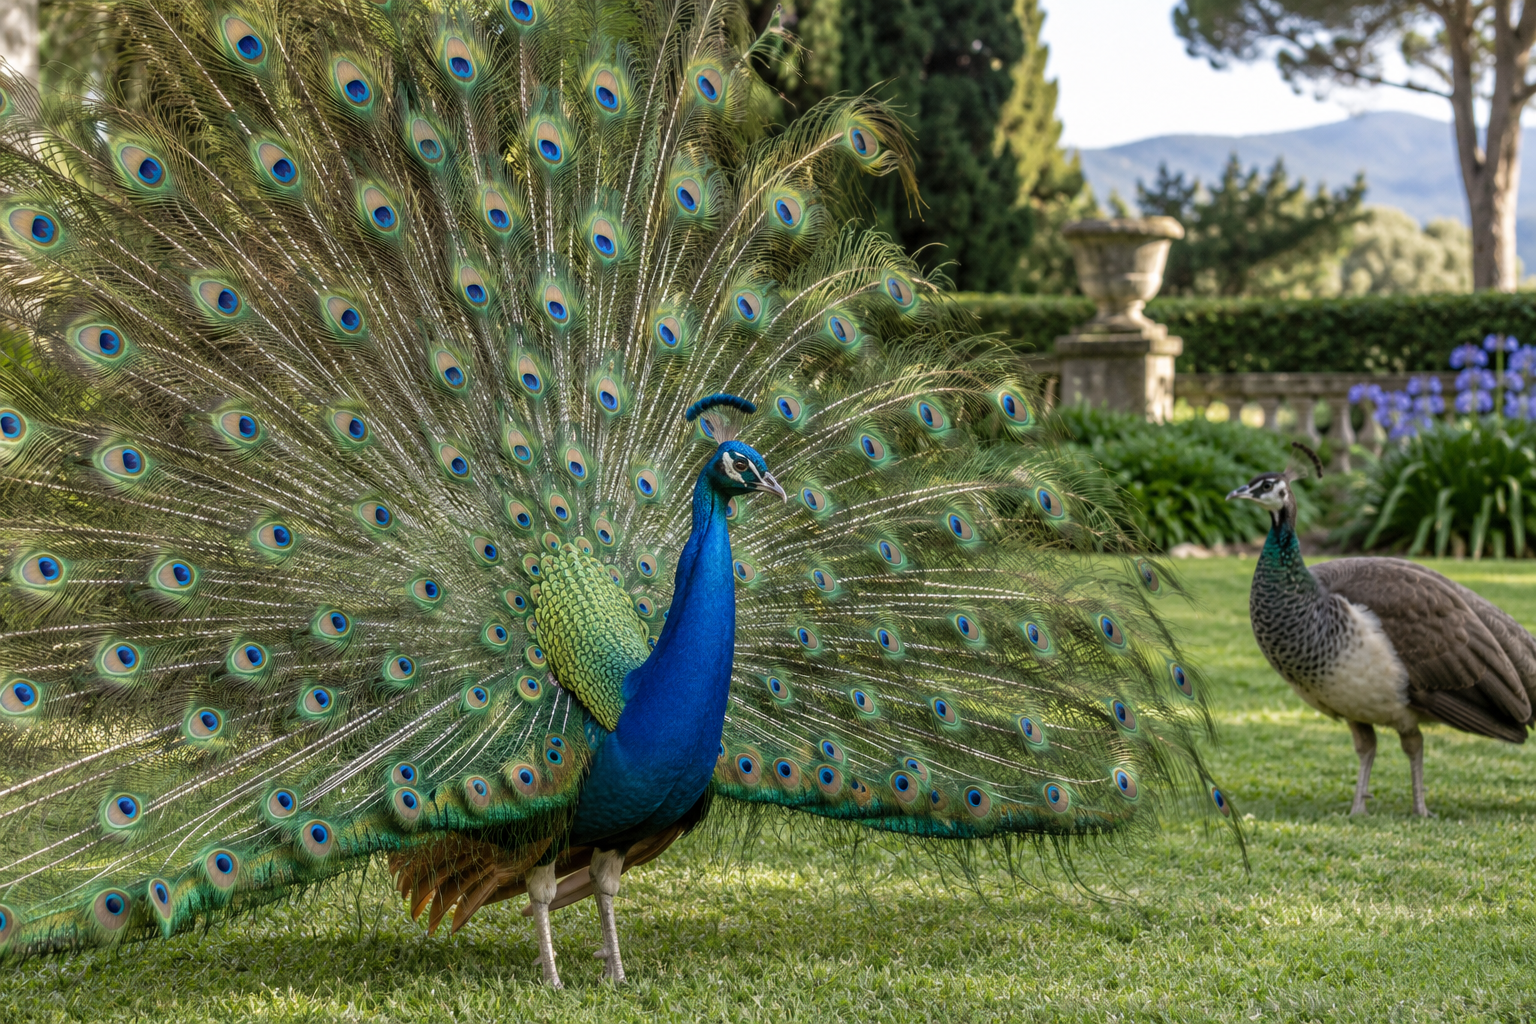
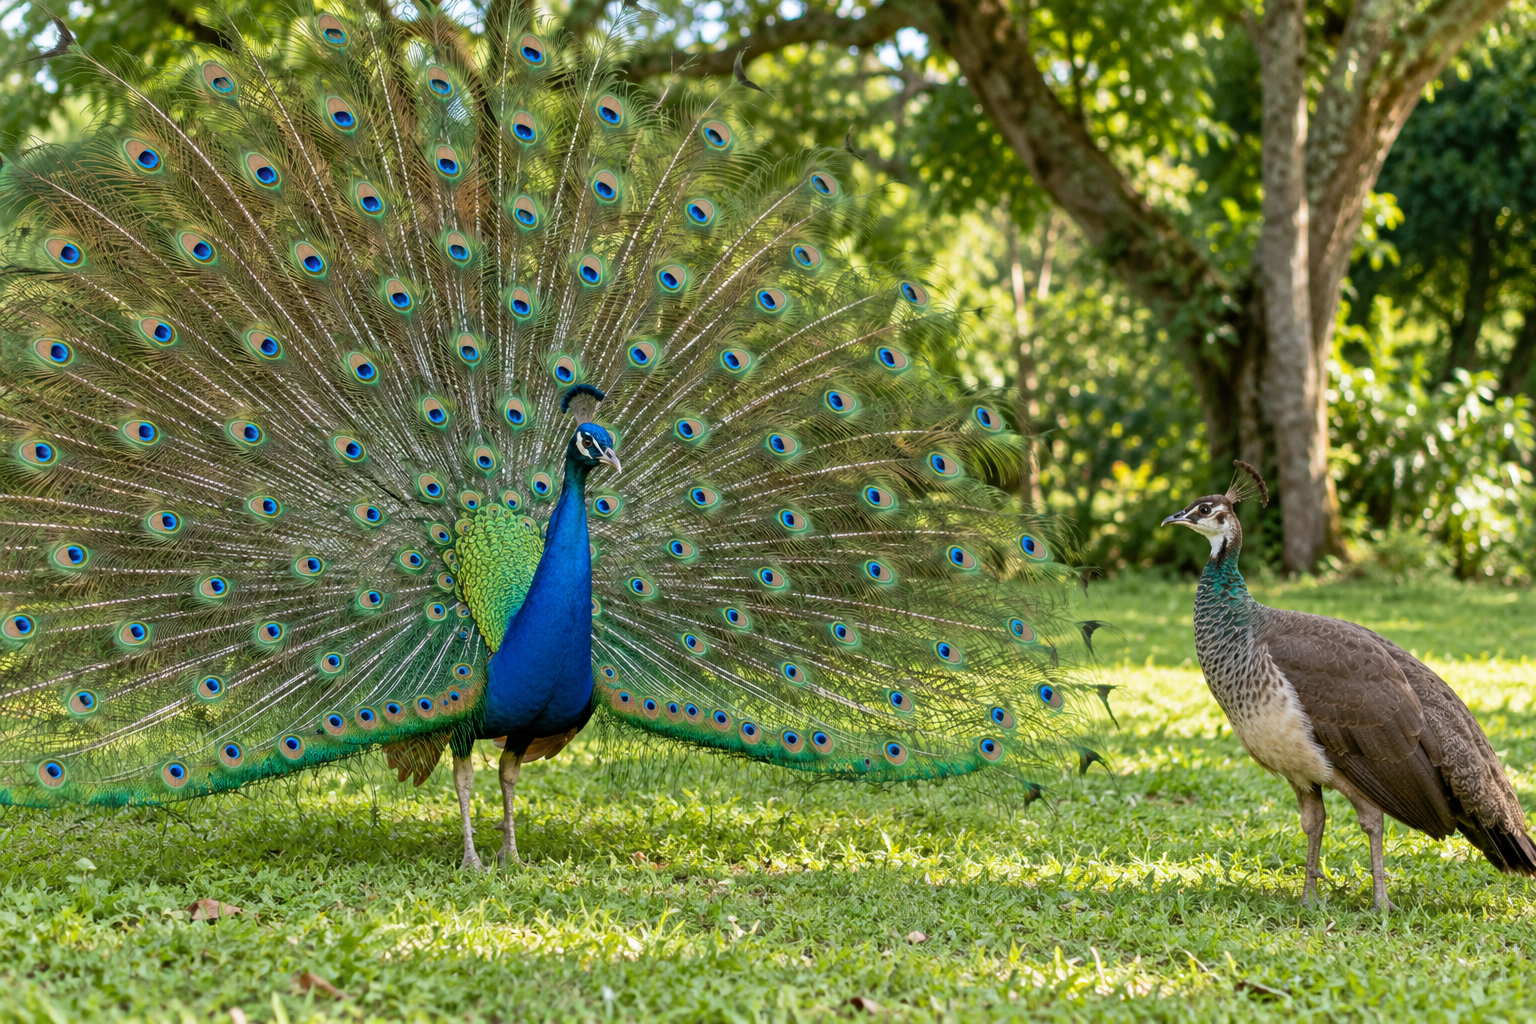
A cauda do pavão é um problema para a sobrevivência: pesa, atrapalha o voo, chama predadores. E mesmo assim está lá, geração após geração. Darwin viu o problema e propôs a solução em A descendência do homem e a seleção em relação ao sexo (1871): algumas características se espalham não porque ajudam a sobreviver, mas porque aumentam o acesso a parceiros. Como aptidão é descendência, e não longevidade, uma característica que encurta a vida mas multiplica os acasalamentos pode ser favorecida. A seleção sexual é um caso da seleção natural, não uma exceção a ela: muda apenas a fonte da diferença de descendência.
Há duas vias. Na seleção intrassexual, indivíduos do mesmo sexo (em geral machos) competem entre si pelo acesso ao outro sexo: chifres de cervos, presas de elefantes-marinhos, tamanho corporal em gorilas. Vence quem afasta os rivais, e as armas crescem. Na seleção intersexual, um sexo (em geral as fêmeas) escolhe entre os candidatos: cauda do pavão, canto dos sapos e das aves, danças de corte, cores da plumagem. Vence quem é preferido, e os ornamentos crescem. Num experimento clássico em um parque na Inglaterra, Marion Petrie e colaboradores (1991) mostraram que as pavoas acasalavam de preferência com os machos cuja cauda tinha mais ocelos (os “olhos” da plumagem): quanto mais ocelos, mais acasalamentos.
O resultado visível das duas vias é o dimorfismo sexual: machos e fêmeas da mesma espécie com tamanho, cor ou estrutura diferentes. Em geral o sexo que investe menos em cada filhote (o macho, na maioria dos animais) é o que compete e o que se enfeita; onde a situação se inverte, como em algumas aves em que o macho cuida dos ovos, a fêmea é a mais colorida. Por que as fêmeas preferem ornamentos custosos ainda é tema de pesquisa: uma linha de explicação diz que o ornamento é um sinal honesto de saúde (só um macho bem nutrido e sem parasitas mantém uma cauda assim), outra diz que a preferência e o ornamento se reforçam mutuamente ao longo das gerações.
As duas vias da seleção sexual. À esquerda, a competição entre indivíduos do mesmo sexo produz armas; à direita, a escolha de parceiros produz ornamentos. Nas duas, a característica pode custar sobrevivência e ainda assim se espalhar, porque o que a seleção conta é descendência. Diagrama autoral.
Dois erros aparecem em prova. “A seleção sexual contraria a seleção natural”: não contraria; é parte dela, e o que parece contradição (um ornamento que reduz a sobrevivência) desaparece quando se lembra que aptidão é descendência. “O pavão desenvolveu a cauda para atrair fêmeas”: o “para” é o finalismo de sempre; os machos de cauda maior deixaram mais descendentes, e a cauda média cresceu.
Seleção artificial: o mesmo mecanismo com critério humano
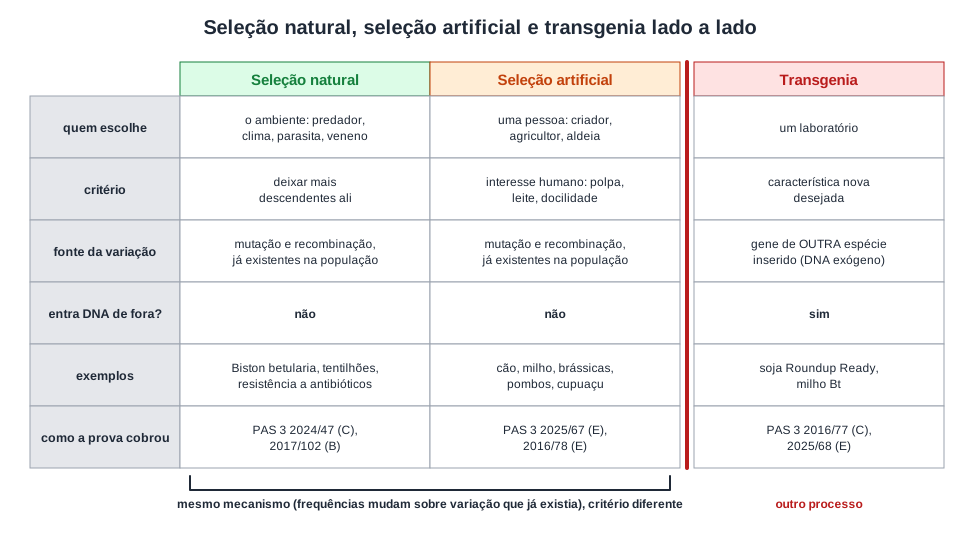
Quando quem decide quais indivíduos se reproduzem é uma pessoa, e o critério é o interesse dela, a seleção chama-se artificial. O mecanismo genético é idêntico ao da seleção natural: mudança das frequências alélicas de uma população a partir de variação que já existia. O que muda é quem filtra e por quê. Darwin usou a seleção artificial dos criadores de pombos como analogia para convencer os leitores de que a seleção natural era possível; mas a prática é milênios mais antiga que qualquer teoria.
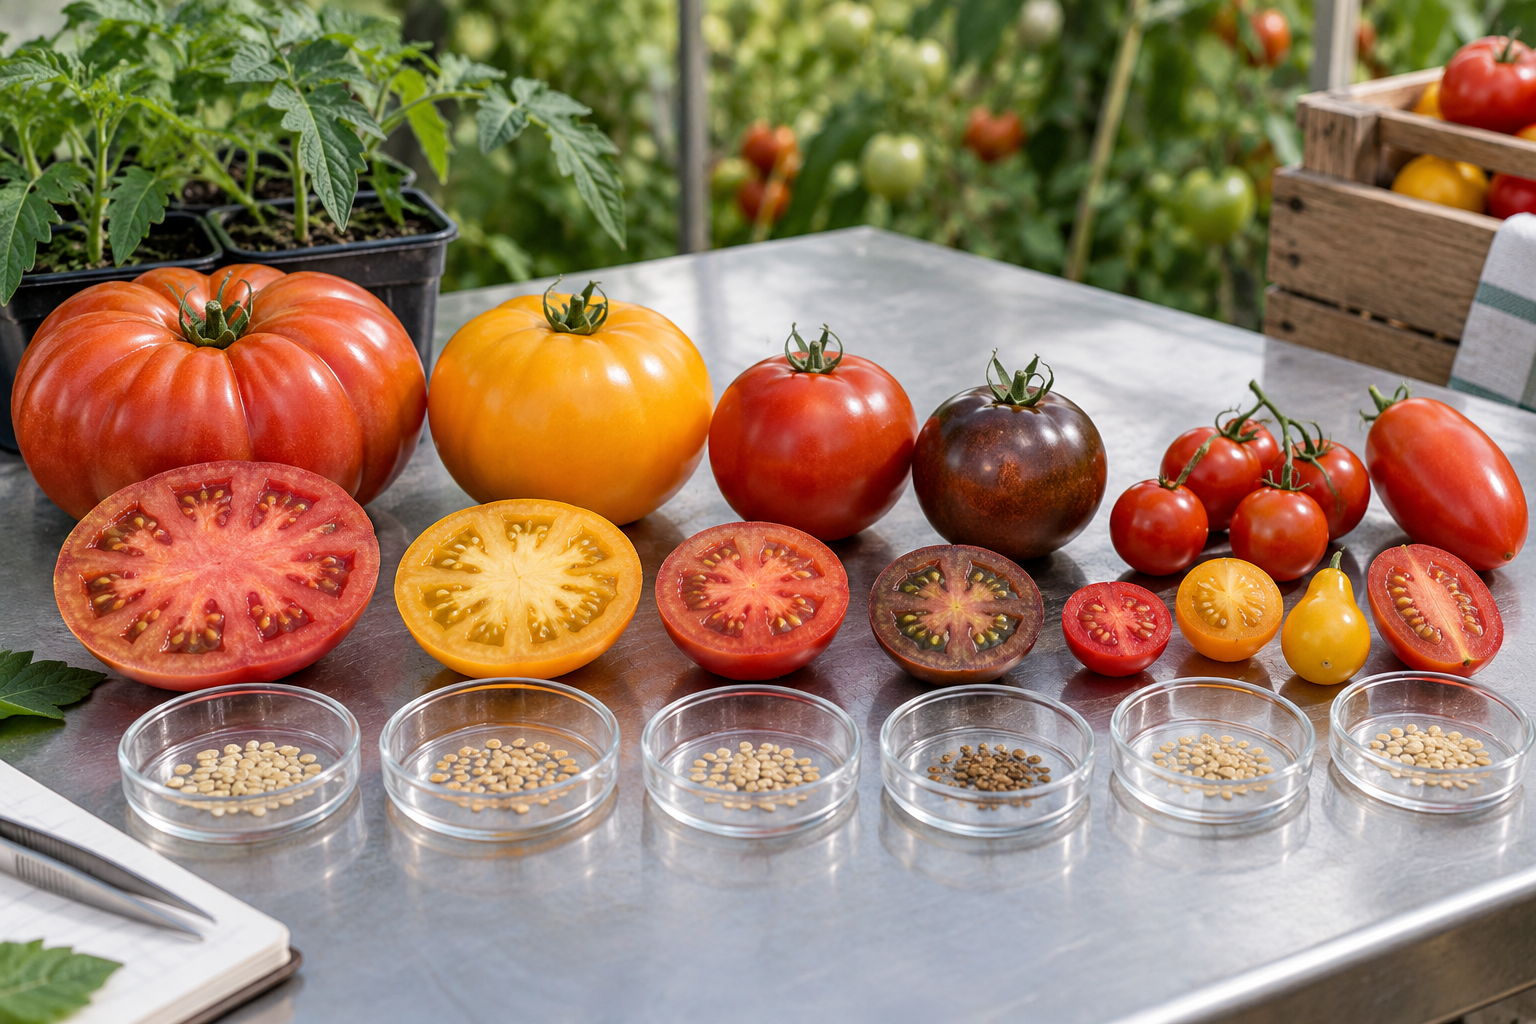
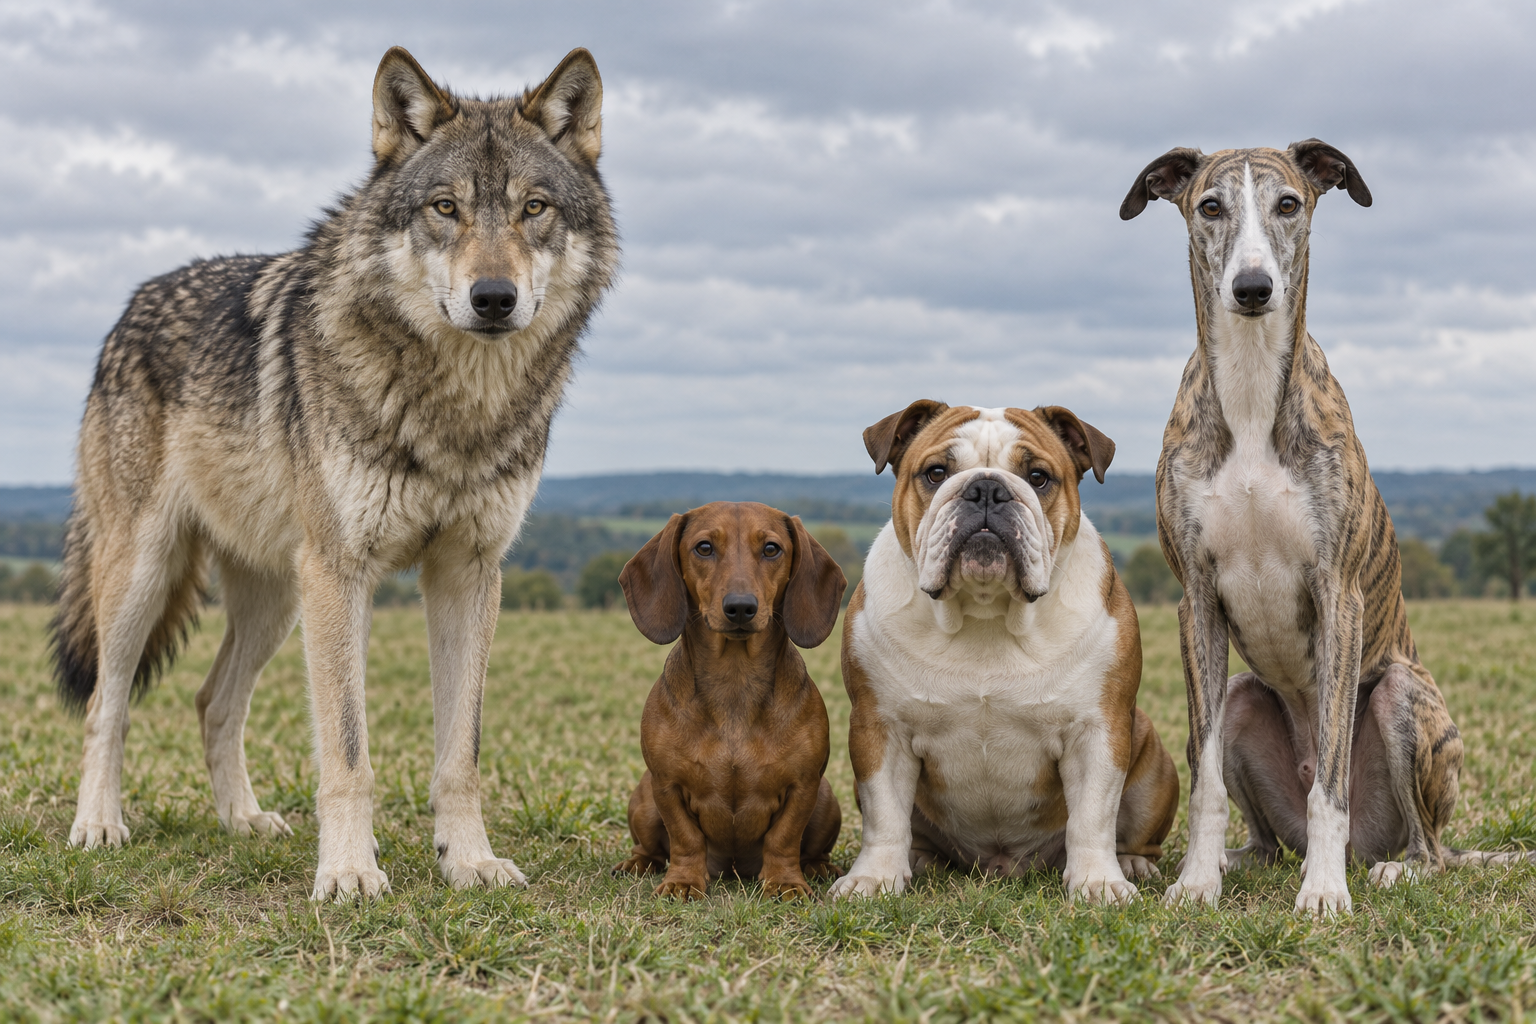
Domesticação é a seleção artificial que transformou espécies selvagens em espécies dependentes do ser humano. O cão foi o primeiro animal domesticado: genomas antigos mostram que, há 11 mil anos, já existiam pelo menos cinco linhagens de cães distintas dos lobos atuais, o que empurra o início da domesticação para antes disso, ainda no Paleolítico (Bergström e colaboradores, Science, 2020). O milho descende do teosinto, uma gramínea mexicana de espiga minúscula com grãos encapsulados; análise de 99 marcadores genéticos em 264 plantas indicou uma única domesticação, no sul do México, há cerca de 9 mil anos (Matsuoka e colaboradores, PNAS, 2002). Repolho, couve, couve-flor, brócolis e couve-de-bruxelas são variedades de uma só espécie, Brassica oleracea, cada uma selecionada por um órgão exagerado (folhas, gema terminal, inflorescência, gemas laterais). E o cupuaçu: pesquisadores da USP mostraram, por genômica e arqueologia, que ele é uma variante domesticada do cupuí, selecionada pelos povos do médio-alto Rio Negro há mais de 5 mil anos, com frutos maiores escolhidos e cruzados entre si, geração após geração (Colli-Silva e colaboradores, 2023).
Seleção natural, seleção artificial e transgenia lado a lado. As duas primeiras compartilham o mecanismo (frequências mudando sobre variação que já existia) e diferem no critério; a terceira é outro processo, porque insere um gene que a espécie não tinha. Diagrama autoral.
Melhoramento genético é a seleção artificial continuada e planejada: escolher os reprodutores, cruzá-los, medir a prole, escolher de novo. É assim que se obtêm vacas que produzem dezenas de litros de leite por dia, galinhas que crescem em seis semanas e variedades de arroz, soja e cana adaptadas a cada região. O retrocruzamento, cruzar um descendente selecionado de volta com um dos genitores ou com a linhagem de origem, concentra na prole os alelos de interesse; foi o método descrito para o cupuaçu. A seleção artificial tem limites e custos que a prova também explora. Ela reduz a variabilidade genética: ao escolher sempre o mesmo extremo, a população perde alelos, e uma raça ou variedade uniforme é vulnerável a uma doença nova ou a uma mudança de clima. Ela arrasta características indesejadas: cães de raças de focinho curto têm dificuldade respiratória, e raças grandes têm problemas de articulação, porque os alelos selecionados para a aparência vêm junto com outros. E ela não serve ao que não foi seu critério: o traço escolhido pelo criador não precisa aumentar a aptidão fora da fazenda, e muitas vezes a reduz (uma galinha de corte não sobrevive solta).
Seleção artificial não é transgenia. Selecionar e cruzar trabalha com os alelos que a espécie já tem; a transgenia insere um gene de outra espécie (DNA exógeno) por engenharia genética. A soja Roundup Ready tolera o glifosato porque recebeu um gene bacteriano; o cupuaçu tem polpa grande porque gerações de indígenas replantaram os frutos maiores. Os dois caminhos produzem mudança herdável, mas só o primeiro é um organismo geneticamente modificado no sentido legal. O PAS 3 cobrou a fronteira em 2016 (“a produção de sojas transgênicas como a Roundup Ready deve ser feita por meio de seleção, melhoramento genético tradicional e cruzamentos entre indivíduos previamente resistentes a herbicidas”, Errado: transgenia não se faz por seleção) e em 2025 (o cupuaçu “é um exemplo de organismo geneticamente modificado”, Errado: domesticado não é transgênico). Também em 2019, afirmou que “o principal objetivo do melhoramento genético é evitar a extinção de determinadas plantas, por meio da modificação de seus genes”: Errado duas vezes, porque o objetivo é agronômico e porque melhoramento tradicional não modifica genes, escolhe portadores.
Quem decidiu que o pássaro frágil ia vencer
Em 2017, o PAS 3 descreveu, num texto sobre o avanço da cana no cerrado, duas espécies de pássaros: a espécie I, de médio porte, forte, que come répteis comuns no cerrado nativo e raros em áreas agrícolas; a espécie II, pequena e frágil, que come insetos raros no cerrado nativo e abundantes nas lavouras. Depois de décadas de expansão agrícola, qual predomina? A resposta darwinista é a II, porque o novo ambiente alimenta a espécie “frágil”, e quem come mais deixa mais descendentes. As alternativas que faziam a espécie I vencer “por ser maior e mais forte” ou produzir mais filhotes “para preservar a espécie” eram a caricatura da força e o finalismo, e estavam erradas. Quem escolhe não é o porte; é o ambiente, e o ambiente mudou. O item está na lista de exercícios.
Resistência: a seleção natural em tempo real
Resistência a antibióticos, a inseticidas e a herbicidas é o caso em que a seleção natural acontece diante de nós, em meses, e é também o laboratório favorito da prova. A lógica é a mesma nos três.
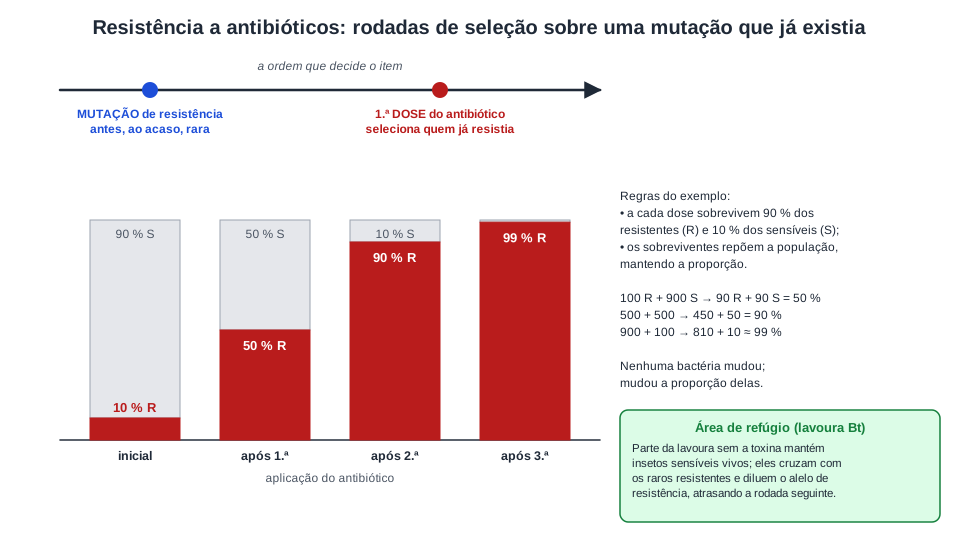
A mutação vem antes. Numa população de bilhões de bactérias, algumas carregam, por erro de cópia do DNA ou por um plasmídeo recebido de outra bactéria, uma versão de gene que inativa o antibiótico, bombeia-o para fora ou altera seu alvo. Elas existem antes de qualquer contato com o remédio, e são raras porque a resistência costuma custar algo quando o remédio não está presente. O antibiótico seleciona. Cada dose mata as sensíveis e deixa o espaço, os nutrientes e o hospedeiro para as resistentes, que se multiplicam. Cada exposição é uma rodada. Depois de dezenas de rodadas, a população é dominada por resistentes, e o remédio deixa de funcionar. É por isso que tomar antibiótico para virose, interromper o tratamento antes do fim e usar antibióticos em massa na criação de animais são problemas de saúde pública: cada rodada a mais enriquece a população em resistentes. Os números da Organização Mundial da Saúde e os mecanismos moleculares estão em bactérias; aqui fica o raciocínio.
Resistência como rodadas de seleção. Em cima, a ordem que decide os itens: a mutação existe antes da primeira dose. Embaixo, um exemplo com taxas fixas: de 10 % para 99 % de resistentes em três aplicações, sem que nenhuma bactéria tenha mudado. À direita, a lógica do refúgio: manter sensíveis vivos para diluir o alelo de resistência. Diagrama autoral; valores do exemplo do texto.
A conta das rodadas vale a pena fazer uma vez. Numa população de 1 000 bactérias, 100 são resistentes e 900, sensíveis. A cada aplicação do antibiótico sobrevivem 90 % das resistentes e 10 % das sensíveis, e os sobreviventes se multiplicam até repor a população, mantendo a proporção. Depois da primeira aplicação: 100×0,9=90 resistentes e 900×0,1=90 sensíveis, logo 50 % de resistentes. Depois da segunda, partindo de 500 e 500: 450 e 50, logo 90 %. Depois da terceira, partindo de 900 e 100: 810 e 10, logo cerca de 99 %. Três doses, de 10 % para 99 %. Nenhuma bactéria “ficou” resistente; a proporção delas mudou.
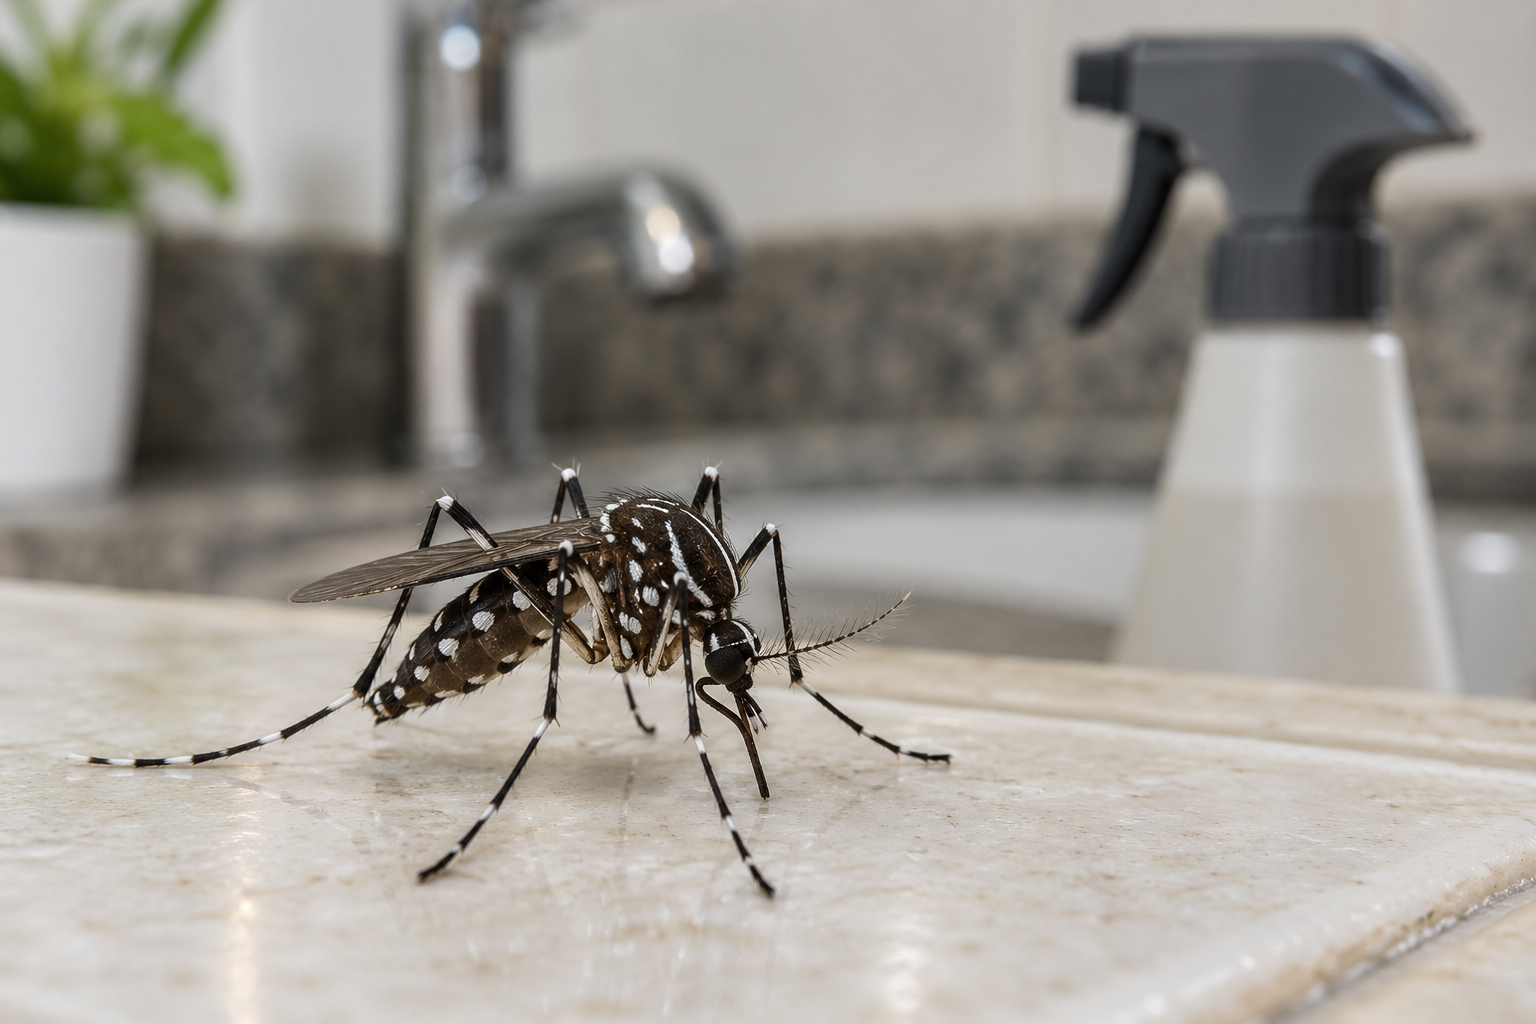
Inseticidas. No estado de São Paulo, piretroides foram usados nas campanhas contra o Aedes aegypti adulto de 1989 a 2000, quando o monitoramento detectou resistência em várias populações e o uso público foi interrompido. Dez anos depois, a resistência continuava alta nas populações monitoradas (Macoris e colaboradores, 2018), em parte porque os mesmos piretroides seguem sendo os inseticidas domésticos mais usados. As mutações responsáveis, chamadas kdr, alteram o canal de sódio que o piretroide ataca; mutações desse mesmo gene aparecem em populações de Aedes de vários continentes, selecionadas em cada lugar pelo mesmo tipo de inseticida. É a resistência específica: um mosquito kdr resiste a piretroides, não a tudo, e a troca para um inseticida de outro mecanismo volta a funcionar, até que a próxima rodada de seleção comece.
Herbicidas. O glifosato, cujo uso no Brasil cresceu muito com a soja tolerante a ele, selecionou plantas daninhas tolerantes. A buva (Conyza spp.), uma das principais plantas daninhas da soja no Sul do país, tem biótipos resistentes ao glifosato documentados pela Embrapa, que publicou em 2009 um manual de manejo específico para o problema (Vargas e Gazziero, Embrapa Trigo). A recomendação técnica segue a lógica da seleção ao contrário: alternar herbicidas de mecanismos diferentes, para que nenhum alelo de resistência enfrente sempre a mesma pressão, e eliminar as plantas suspeitas antes que produzam sementes.
Plantas Bt e o refúgio. Milho e algodão Bt carregam um gene da bactéria Bacillus thuringiensis e produzem uma proteína tóxica para lagartas. Uma lavoura inteira de plantas Bt é uma rodada de seleção contínua: as raras lagartas que toleram a toxina são as únicas que se reproduzem. Para atrasar a resistência, a recomendação é plantar uma área de refúgio com milho não Bt ao lado da lavoura Bt: nela sobrevivem lagartas sensíveis, que cruzam com as resistentes e diluem o alelo de resistência na geração seguinte. A Embrapa monitora há anos a lagarta-do-cartucho (Spodoptera frugiperda) em milho Bt no Brasil e registra populações menos controladas por alguns híbridos, o que é a resistência aparecendo em campo.
O lamarckismo de linguagem: "a bactéria se adaptou"
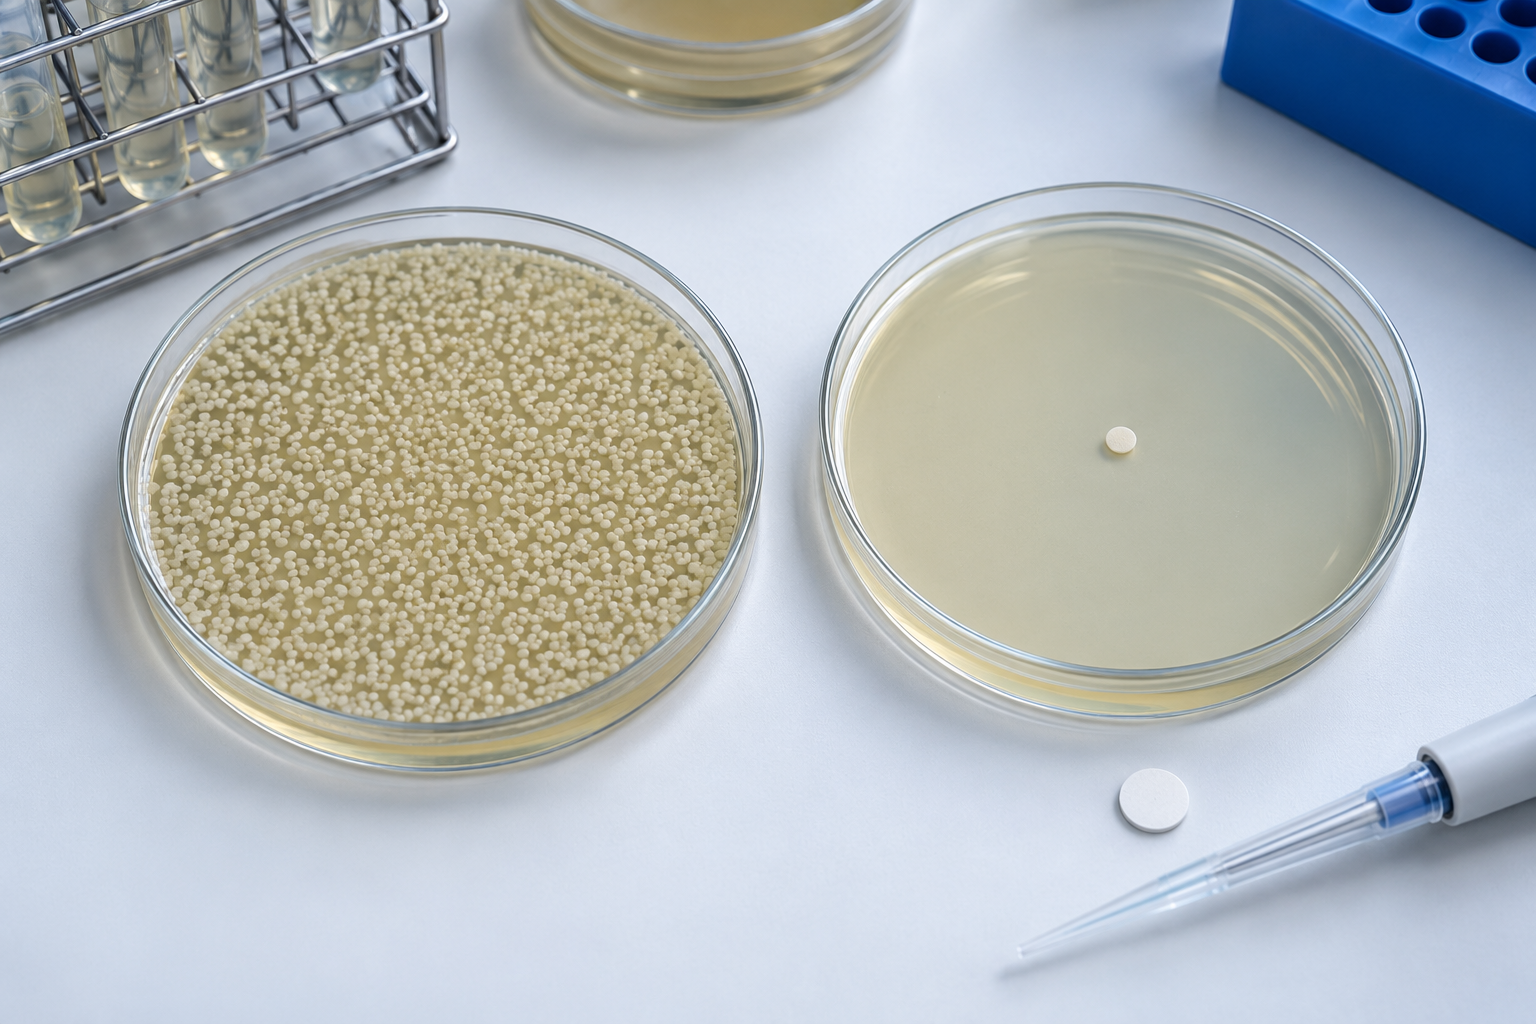
“A bactéria se adaptou ao antibiótico”, “o mosquito desenvolveu resistência”, “o herbicida produziu genes de resistência na soja”: as três frases colocam a mudança no indivíduo e a causa no agente, e as três são leitura lamarckista com vocabulário moderno. A frase correta tem a população como sujeito e a seleção como verbo: “a frequência das bactérias resistentes aumentou porque o antibiótico eliminou as sensíveis”. O PAS 3 cobrou o par em 2024, a partir de um experimento com placas de cultura com e sem penicilina: a mutação de resistência surge durante a replicação do DNA, antes do antibiótico (item 45, Certo); o uso indiscriminado de antibióticos selecionaria bactérias “menos resistentes” (item 46, Errado: seleciona as mais resistentes); o surgimento de bactérias capazes de crescer com penicilina “está de acordo com as propostas de Darwin” (item 47, Certo). E em 2016, o herbicida que “resultará na produção de genes de resistência” tornando as plantas imunes “a qualquer tipo de herbicida” errou duas vezes: o agente não produz gene, e resistência é específica.
Adaptação: o que a palavra quer dizer e o que não quer
Adaptação tem dois sentidos em biologia evolutiva, e a prova usa os dois. Como processo, é a mudança de uma população ao longo das gerações, por seleção natural, no sentido de maior ajuste ao ambiente. Como resultado, é a característica herdável que aumenta a aptidão de quem a tem naquele ambiente: o bico do tentilhão, a cor da mariposa, a hemoglobina S onde há malária, a tolerância ao glifosato. Nos dois sentidos, adaptação é populacional e entre gerações. O que um indivíduo faz ao longo da vida (suar no calor, engrossar a pelagem no inverno, aprender a abrir uma lata) é aclimatação, plasticidade ou aprendizado, e não entra na definição.
Alguns resultados da seleção têm nome próprio. Camuflagem é a semelhança com o fundo (o bicho-pau, o urutau imóvel no galho). Mimetismo é a semelhança com outro organismo: batesiano quando uma espécie inofensiva imita uma perigosa, mülleriano quando duas espécies perigosas convergem para o mesmo aviso. Aposematismo é a cor de advertência. Essas três são relações entre espécies e estão desenvolvidas em relações ecológicas; o que esta página acrescenta é a mecânica: a falsa-coral não “criou” anéis para enganar predadores; entre as serpentes de uma população antiga, as que por acaso se pareciam mais com a coral verdadeira foram menos atacadas e deixaram mais descendentes, e a semelhança média aumentou geração após geração. Convergência é o aparecimento independente de adaptações semelhantes em linhagens não aparentadas sob a mesma pressão (a forma hidrodinâmica de golfinhos, tubarões e ictiossauros); ela é a prova de que a seleção produz soluções parecidas para problemas parecidos, e está em evidências da evolução como contraponto da homologia.
Estruturas complexas como o olho são a objeção mais antiga à seleção natural e a resposta mais instrutiva. Darwin a enfrentou na Origem: um olho não surge de uma vez, mas cada etapa intermediária, de uma mancha de células sensíveis à luz a uma taça pigmentada, a uma câmara com abertura estreita, a uma câmara com lente, confere alguma vantagem sobre a anterior (perceber a sombra de um predador, saber de onde vem a luz, formar imagem), e todas essas etapas existem em animais vivos hoje, de planárias a moluscos. A seleção acumula melhorias pequenas porque cada uma, sozinha, já deixa mais descendentes. Ela não precisa “saber” aonde vai.
E adaptação não é perfeição. O olho dos vertebrados tem ponto cego; a laringe humana, posicionada para a fala, aumenta o risco de engasgo; a coluna ereta cobra em dores lombares. A seleção produz o suficiente para deixar descendentes com o material que a história deixou, e cada adaptação a um ambiente é um custo em outro. Quem lê “adaptado” como “ótimo” está a um passo da escada com o ser humano no topo, a scala naturae, que o PAS 3 de 2010 (item 54) cobrou como visão ultrapassada: a evolução ramifica, não sobe degraus rumo à perfeição.
Evolução observada: oito casos com agente, medida e data
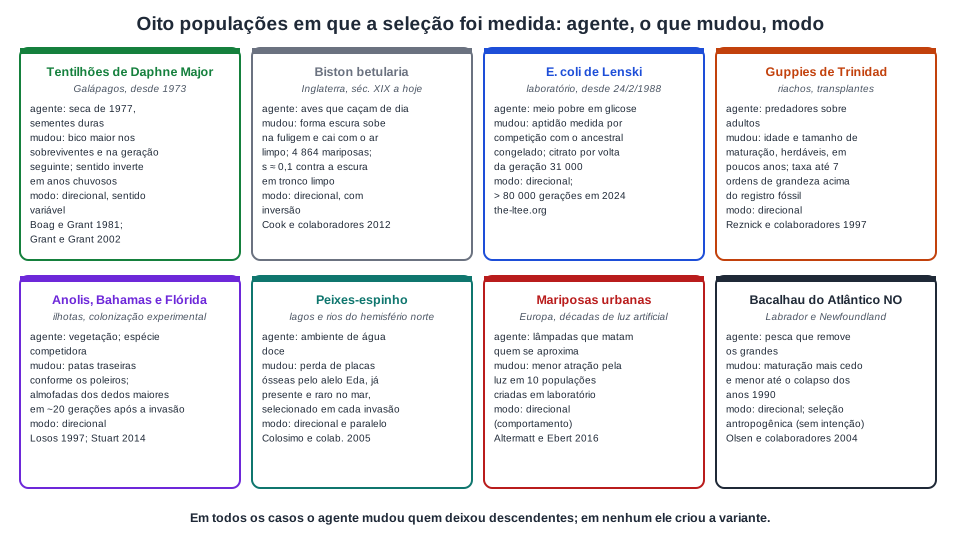
“Ninguém viu a seleção natural acontecer” é falso desde o século XIX, e hoje há dezenas de populações acompanhadas indivíduo a indivíduo. Os casos abaixo foram escolhidos porque cada um ilustra uma peça desta página: um modo de seleção, um agente identificado, uma medida antes e depois. A história de cada um, em versão resumida, também aparece em teorias evolutivas; aqui o foco é o que foi medido.
Tentilhões de Daphne Major, Galápagos (Peter e Rosemary Grant, desde 1973). A ilhota é pequena o bastante para que todos os tentilhões sejam capturados, anilhados e medidos todos os anos. Na seca de 1977, as sementes pequenas e moles acabaram e sobraram as grandes e duras; a população de Geospiza fortis caiu drasticamente, e os sobreviventes não foram uma amostra ao acaso: aves grandes, em especial machos de bico grande, sobreviveram mais, porque conseguiam quebrar as sementes que restavam (Boag e Grant, Science, 1981). Como o tamanho do bico é herdável, a geração seguinte nasceu com bicos em média maiores: seleção direcional medida em campo, com a intensidade mais alta registrada até então para um vertebrado. Nos trinta anos seguintes, a direção mudou várias vezes conforme a chuva de cada ano; o estudo de 1972 a 2001 mostrou que a seleção é frequente, mensurável e imprevisível no longo prazo (Grant e Grant, Science, 2002). Em 2016, a genômica identificou um gene de efeito grande sobre o tamanho do bico (HMGA2) e mostrou que, numa seca posterior, o alelo associado a bico grande ficou em forte desvantagem no G. fortis, quando a competição com uma espécie de bico maior favoreceu os bicos pequenos (Lamichhaney e colaboradores, Science, 2016). Agente: tamanho e dureza das sementes; modo: direcional, com sentido variável.
Mariposa Biston betularia, Inglaterra. A forma escura, rara antes da Revolução Industrial, passou a dominar as cidades cobertas de fuligem e recuou depois das leis de ar limpo. O agente são aves que caçam de dia e enxergam melhor quem contrasta com a casca. A demonstração mais direta é o experimento de seis anos de Michael Majerus, com 4 864 mariposas soltas em posições naturais de repouso e predação observada, publicado após sua morte por Cook, Grant, Saccheri e Mallet (Biology Letters, 2012): a seleção diária contra a forma escura em troncos limpos (coeficiente de seleção em torno de 0,1) bastava para explicar o declínio rápido do melanismo na Inglaterra pós-industrial. Agente: predação visual; modo: direcional, com inversão quando o fundo mudou.
Bactérias de Lenski (desde 1988). Em 24 de fevereiro de 1988, Richard Lenski iniciou doze populações de Escherichia coli a partir de um mesmo ancestral, em meio com pouca glicose, transferindo 1 % de cada cultura para meio novo todos os dias, cerca de 6,6 gerações por dia. O ancestral e amostras de cada época ficam congelados e podem ser revividos para competir com os descendentes, o que permite medir a aptidão relativa diretamente: as doze populações cresceram mais rápido que o ancestral. Numa delas, por volta da geração 31 000, surgiu a capacidade de usar citrato na presença de oxigênio, algo que define a espécie como incapaz de fazer. O experimento passou de 75 000 gerações em 2022 e de 80 000 em 2024. Agente: meio pobre em glicose; modo: direcional, com aptidão medida por competição.
Guppies de Trinidad (Reznick e colaboradores, Science, 1997). Em riachos da ilha, guppies que vivem com predadores grandes amadurecem mais cedo e menores. Pesquisadores transplantaram guppies de trechos com predadores para trechos sem eles e mediram, em poucos anos, mudança herdável na idade e no tamanho de maturação, a uma taxa comparável à da seleção artificial em laboratório e até sete ordens de grandeza maior que as taxas inferidas do registro fóssil. Agente: predação sobre adultos; modo: direcional sobre a idade de maturação.
Lagartos Anolis no Caribe. Em 1977 e 1981, lagartos Anolis sagrei foram introduzidos em ilhotas das Bahamas sem lagartos; cerca de quinze anos depois, as populações diferiam no comprimento das patas traseiras conforme o diâmetro da vegetação de cada ilha, no sentido previsto (patas mais longas onde a vegetação é mais grossa), um experimento de colonização com resultado medido (Losos, Warheit e Schoener, Nature, 1997). Na Flórida, quando o A. sagrei invadiu ilhotas ocupadas pelo nativo A. carolinensis, o nativo passou a usar poleiros mais altos e, em cerca de vinte gerações, evoluiu almofadas adesivas maiores nos dedos, melhores para galhos finos e lisos (Stuart e colaboradores, Science, 2014). Agente: competição com outra espécie e estrutura do hábitat; modo: direcional.
Peixes-espinho de água doce. O esgana-gata marinho tem o corpo coberto de placas ósseas; populações que colonizaram lagos e rios em todo o hemisfério norte perderam as placas, de forma independente, repetidas vezes. A causa genética é a mesma em quase todas: alelos do gene Eda de baixa armadura, que já existiam em frequência baixa nos peixes marinhos e foram selecionados em cada invasão (Colosimo e colaboradores, Science, 2005). É a ilustração mais limpa de que a seleção age sobre variação preexistente: a variante estava lá, rara, esperando o ambiente que a favorecesse. Agente: ambiente de água doce (predadores, salinidade, cálcio); modo: direcional e paralelo.
Mariposas e a luz da cidade (Altermatt e Ebert, Biology Letters, 2016). Mariposas de dez populações da mesma espécie, criadas em laboratório desde larvas, foram testadas quanto à atração por luz: as de áreas urbanas com décadas de iluminação artificial voavam para a luz significativamente menos que as de áreas escuras. Como todas foram criadas nas mesmas condições, a diferença é herdável; o agente é a lâmpada, que mata quem se aproxima. Seleção direcional contra um comportamento, em escala de décadas.
Bacalhau e a pesca (Olsen e colaboradores, Nature, 2004). Até o colapso dos estoques de bacalhau do Atlântico Noroeste, no início dos anos 1990, a idade e o tamanho de maturação das populações diminuíram continuamente, no sentido previsto pela teoria para uma pesca que remove os peixes grandes antes que se reproduzam; descontados os efeitos de mortalidade e de crescimento, o padrão aponta para evolução induzida pela pesca. É a seleção antropogênica: o ser humano como agente seletivo sem querer, o contrário da seleção artificial, em que ele escolhe de propósito.
Oito populações em que a seleção foi medida. Cada cartão nomeia o agente seletivo e o que mudou; a última linha de todos é a mesma: o agente escolheu entre variantes que já existiam. Diagrama autoral.
Leia como na prova: o bloco do cupuaçu
A prova do PAS não enfileira itens de evolução por assunto. Ela apresenta um texto-base e pendura nele itens de várias disciplinas. Em 2025, um parágrafo adaptado de uma reportagem do Jornal da USP sobre a domesticação do cupuaçu sustentou doze itens (66 a 77), de Geografia, Biologia, História, Sociologia e Língua Portuguesa; dos quatro de Biologia, um era de seleção. O texto, como a prova o imprimiu, está reproduzido na lista de exercícios junto com o item. O que ele fornece são três dados: a domesticação ocorreu “no final do Holoceno”; a conclusão veio de “dados genéticos do fruto e informações arqueológicas”; e “espécies domesticadas são aquelas originadas por meio de uma seleção artificial pela ação humana”. O que ele não fornece: nenhuma palavra sobre Darwin, seleção natural, “fortes” ou “frágeis”.
O item 67 dizia que, de acordo com Darwin, os organismos evoluem pela seleção natural, “que leva à morte dos mais frágeis e à vantagem evolutiva dos mais fortes, tendo sido essa a base teórica da seleção artificial utilizada no desenvolvimento do cupuaçu”. Três camadas, cada uma suficiente para o Errado. A primeira é a caricatura da força: aptidão é descendência, não vigor, e o ambiente que muda troca o vencedor. A segunda é o critério: seleção artificial tem critério humano, não ambiental; ela não “se baseia” na seleção natural, compartilha o mecanismo com ela. A terceira é o anacronismo: o texto data a domesticação do final do Holoceno, milênios antes de 1859; ninguém usa como base teórica um livro que ainda não existia. O item vizinho (68), que chamava o cupuaçu de organismo geneticamente modificado, cai pela definição do próprio texto: seleção artificial escolhe reprodutores com os alelos que a espécie já tem, e não insere gene de fora. E o item 66, que concluía do texto que preservar a biodiversidade exige áreas “desocupadas por populações humanas”, cai porque o texto diz o contrário: o manejo indígena “colaborava para a conservação da floresta”. Os três estão na lista de exercícios, o 67 como item desta página e os outros dois como itens vizinhos.
A lição de leitura vale para qualquer bloco. Primeiro o comando, que diz onde o bloco acaba. Depois os itens, varridos pelos substantivos, para saber quais são seus. Só então o texto, lido à procura de dados. E, diante de “segundo Darwin”, a ficha do autor recitada antes do resto da frase: variação preexistente, sobrevivência e reprodução diferenciais, sem força, sem progresso, sem objetivo.
Extinção não é seleção natural
A seleção natural explica por que uma variante fica mais comum que outra dentro de uma população. A extinção é o desaparecimento de uma espécie inteira, e pode acontecer por causas que não têm nada a ver com diferenças de aptidão entre seus membros: um asteroide, uma erupção, uma mudança de clima rápida demais, um predador ou patógeno novo que elimina todos igualmente, a destruição do hábitat. Dizer que “a espécie foi extinta por seleção natural” confunde o filtro que age entre indivíduos com o destino de uma linhagem inteira. É possível que a seleção não consiga acompanhar uma mudança rápida (a variação disponível não basta, ou o tempo acaba), e aí a extinção é a falha da adaptação, não um ato dela.
Em 2013, o PAS 3 apresentou um texto sobre um garoto que encontrou um mamute congelado na Sibéria e afirmou, no item 31, que “infere-se do texto que a extinção dos mamutes deveu-se à seleção natural”. O texto não atribuía causa alguma à extinção. “Infere-se do texto” é um contrato: a resposta tem de estar autorizada pelas linhas impressas, não pelo que a biologia explicaria em tese. Errado, duas vezes: pela leitura (o texto não diz) e pela biologia (extinção não é seleção natural). O item pertence à página de evidências da evolução, que trata do mamute como fóssil e das extinções em massa; aqui ele entra pela fronteira conceitual.
Como ler gráficos de distribuição, curvas no tempo e tabelas antes e depois
Os itens de seleção natural vêm em quatro embalagens, e cada uma tem um roteiro.
Distribuições antes e depois. Duas curvas (ou dois histogramas) da mesma característica, uma geração antes e uma depois. Compare três coisas, nesta ordem: a posição do pico (mudou? direcional), a largura (estreitou? estabilizadora) e o número de picos (dois? disruptiva). Não leia a altura absoluta: se a população diminuiu, a curva inteira fica mais baixa sem que isso diga nada sobre o modo.
Curvas de frequência ao longo do tempo. Um eixo de gerações (ou anos) e a frequência de uma variante. Subida contínua é seleção direcional a favor; descida, contra; oscilação em torno de um valor sem tendência pode ser seleção dependente de frequência ou simples acaso (deriva, em população pequena); um platô em valor intermediário sugere seleção balanceadora. Pergunte sempre pelo agente: a curva sozinha não diz por que mudou.
Tabelas numéricas. O exercício típico dá contagens por tipo antes e depois de um evento e pede uma frequência, uma aptidão relativa ou um coeficiente de seleção. O roteiro é fixo: frequência antes (ntipo/N); sobreviventes por tipo; aptidão absoluta de cada tipo (sobreviventes/iniciais); aptidão relativa (divida pelo maior valor); frequência depois (sobreviventes do tipo/total de sobreviventes). Dois erros de percurso: comparar números absolutos em vez de frações (o tipo com mais sobreviventes não é necessariamente o mais apto, se partiu de mais indivíduos), e calcular a frequência depois sobre a população inicial em vez de sobre os sobreviventes.
Textos. Em texto de divulgação, sublinhe o sujeito e o verbo que ligam ambiente e característica. “O inseticida selecionou mosquitos resistentes” e “a frequência dos resistentes aumentou” são formulações populacionais corretas. “O mosquito desenvolveu resistência”, “a bactéria aprendeu a driblar” e “a espécie evoluiu para sobreviver” põem a mudança no indivíduo, a intenção na população ou a causa no agente. E, se o item começar com “infere-se do texto”, a resposta tem de estar no texto.
Exemplo resolvido: a média antes e depois de uma seca
Uma população de aves foi medida antes e depois de uma seca. A profundidade do bico foi agrupada em quatro classes, e as contagens foram as seguintes. Antes: 8 mm, 10 aves; 9 mm, 40; 10 mm, 40; 11 mm, 10 (total 100). Depois: 8 mm, 2 aves; 9 mm, 10; 10 mm, 28; 11 mm, 10 (total 50). Qual foi o modo de seleção, e quanto mudou a média?
Média antes: (8×10+9×40+10×40+11×10)/100=(80+360+400+110)/100=9,50 mm. Média depois: (8×2+9×10+10×28+11×10)/50=(16+90+280+110)/50=9,92 mm. A média subiu 0,42 mm. Agora a sobrevivência por classe: 8 mm, 2/10=20 %; 9 mm, 10/40=25 %; 10 mm, 28/40=70 %; 11 mm, 10/10=100 %. A sobrevivência cresce com o tamanho do bico, sem favorecer o centro nem os dois extremos: seleção direcional a favor de bicos maiores. Conferência: o pico mudou de posição (de 9 a 10 mm para 10 mm) e não apareceu segundo pico. O que o exercício não diz, e o item não pode supor, é se a geração seguinte nascerá com bicos maiores: isso exige que a profundidade do bico seja herdável, o que no caso real de Daphne Major foi medido, e que a próxima estação não inverta a seleção, o que lá aconteceu várias vezes.
Como a prova cobra: os itens reais e o padrão deles
No PAS 3, a seleção em ação (natural e artificial) rendeu itens em 2016, 2017, 2024 e 2025, mais um item de 2022 sobre a vantagem do heterozigoto e um de 2016 sobre a fronteira com a transgenia; todos estão reproduzidos na lista de exercícios desta página, e o padrão deles cabe em cinco linhas.
O agente que produz a novidade (PAS 3 2016, item 79, Errado). O herbicida “resultará na produção de genes de resistência” e tornará as plantas imunes “a qualquer tipo de herbicida”. Dois erros: ordem invertida (a mutação precede o agente) e generalização (resistência é específica).
A ficha de Darwin aplicada a um experimento (PAS 3 2024, item 47, Certo). Bactérias que sobrevivem e crescem no meio com penicilina “estão de acordo com as propostas de Darwin”: sobrevivência diferencial de variantes preexistentes sob um agente seletivo é a definição.
O advérbio trocado (PAS 3 2024, item 46, Errado). O uso indiscriminado de antibióticos “pode selecionar bactérias menos resistentes”. Uma palavra decide: seleciona as mais resistentes.
A caricatura da força e o finalismo em múltipla escolha (PAS 3 2017, item 102, gabarito B). Entre quatro previsões “darwinistas” para duas espécies de pássaros no cerrado convertido em cana, só uma falava em descendentes e alimento; as outras falavam em porte, fragilidade e “preservação da espécie”.
A quimera com anacronismo (PAS 3 2025, item 67, Errado). “Morte dos mais frágeis”, “vantagem dos mais fortes” e Darwin como “base teórica” de uma domesticação de 5 mil anos.
Fora desse núcleo, a vantagem do heterozigoto apareceu em 2022 (item 64, múltipla escolha, gabarito A: SS com malária entra em crise; as alternativas erradas invertiam a vantagem do AS), e a fronteira seleção artificial × transgenia em 2016 (item 78, Errado: transgenia não se faz por seleção e cruzamento) e em 2025 (item 68, Errado: o cupuaçu não é OGM), este último tratado na página de mutações. Nenhum dos itens exigiu conta; todos exigiram a ordem mutação antes, seleção depois, e a definição de aptidão.
Erros clássicos, um por linha
“O mais forte sobrevive.” Apto é quem deixa mais descendentes; força, tamanho e vigor só contam se aumentarem a descendência ali. O pássaro “frágil” de 2017 venceu porque a lavoura o alimentava.
“A seleção cria a mutação” / “a bactéria se adaptou ao antibiótico.” A variante existe antes; o agente só muda quem deixa descendentes. Ordem invertida é a marca lamarckista do item (2016/79).
“A seleção age para o bem da espécie.” Ela age sobre diferenças de descendência entre indivíduos. Ninguém se reproduz “para preservar a espécie” (alternativa C de 2017/102).
“Adaptação é perfeição.” É o suficiente para deixar descendentes com o material disponível: olho com ponto cego, laringe que engasga, bico que é bom para uma semente e ruim para outra.
“O indivíduo se adapta ao longo da vida.” O que o indivíduo faz é aclimatação, plasticidade ou aprendizado. Adaptação evolutiva é populacional e entre gerações.
“Seleção artificial não é evolução” / “é antinatural.” É evolução dirigida: mesmas frequências de alelos mudando, critério humano. E não é transgenia: nenhum gene entra de fora (2016/78, 2025/68).
“Extinção é seleção natural.” Extinção é o fim de uma linhagem inteira, muitas vezes por causa que não distingue indivíduos; seleção é o filtro entre variantes de uma população (2013/31).
“Seleção natural é ao acaso.” A mutação é ao acaso quanto ao efeito; a seleção é o oposto do acaso: favorece sistematicamente quem deixa mais descendentes. O que é ao acaso, além da mutação, é a deriva genética, assunto de genética de populações.
“A evolução para quando a espécie está adaptada.” O ambiente muda e a mutação continua; em Daphne Major a direção da seleção mudou várias vezes em trinta anos.
“A seleção sexual contraria a seleção natural.” É um caso dela: a característica custa sobrevivência e paga em descendência.
“A resistência surge por causa do antibiótico.” Surge por mutação, antes; o antibiótico a torna frequente (2024/45 e 47).
“O heterozigoto AS é doente.” Tem o traço, não a doença, e onde há malária é o genótipo mais apto (2022/64). A genética do alelo está em mutações.
“Dois picos na distribuição são duas espécies.” São seleção disruptiva; espécie nova exige isolamento reprodutivo demonstrado.
“O número do tipo favorecido sempre aumenta.” A frequência aumenta; o número absoluto pode cair, se a população inteira encolheu. Aptidão é relativa.
O essencial em meia página
Seleção natural exige três condições: variação, hereditariedade e reprodução diferencial. Resultado: a frequência da variante favorecida sobe na geração seguinte. A variante existe antes; o ambiente não a cria, só muda quem deixa descendentes.
Aptidão é sucesso reprodutivo relativo, naquele ambiente: w= aptidão absoluta do tipo dividida pela do tipo mais apto; s=1−w. Não é força. A frequência pode subir enquanto o número cai.
A seleção age no fenótipo; a evolução muda alelos. Dominância esconde recessivos (seleção contra fenótipo recessivo raro é lenta); plasticidade não é evolução.
O que a seleção não faz: não cria variação, não tem objetivo, não produz perfeição (compromissos, restrições, exaptação), não age pelo bem da espécie, não para.
Modos: direcional (a média se desloca: Biston, bicos na seca de 1977, resistência), estabilizadora (média fica, variância cai: peso ao nascer), disruptiva (dois picos: dois recursos sem intermediário).
Seleção balanceadora mantém variação: dependente de frequência (o raro leva vantagem) e vantagem do heterozigoto (AS × malária: cerca de um décimo do risco de malária grave; alelo S mantido apesar de matar os SS).
Seleção sexual é parte da natural: intrassexual (armas) e intersexual (ornamentos); dimorfismo; o custo em sobrevivência paga em descendência (Darwin, 1871).
Seleção artificial: mesmo mecanismo, critério humano. Cão (linhagens já diversificadas há 11 mil anos), milho do teosinto (há cerca de 9 mil anos), brássicas, pombos, cupuaçu (há mais de 5 mil anos). Reduz variabilidade, arrasta defeitos, não é transgenia (2016/78, 2025/68) e não tem Darwin como base (2025/67).
Resistência é seleção em tempo real: mutação antes, rodadas de seleção depois (10 % para 99 % em três doses no exemplo); específica ao agente; antibióticos (2024/45 a 47), piretroides e Aedes (São Paulo, 1989 a 2000), glifosato e buva, Bt e refúgio. “A bactéria se adaptou” é lamarckismo de linguagem (2016/79).
Adaptação é resultado populacional da seleção, não ajuste individual nem perfeição; camuflagem, mimetismo e convergência são adaptações com página própria.
Evolução observada: Daphne Major (Boag e Grant, 1981; Grant e Grant, 2002), Biston (Cook e colaboradores, 2012), Lenski (mais de 80 000 gerações), guppies (Reznick, 1997), Anolis (Losos, 1997; Stuart, 2014), peixes-espinho (Colosimo, 2005), mariposas urbanas (Altermatt e Ebert, 2016), bacalhau (Olsen, 2004).
Extinção não é seleção natural, e “infere-se do texto” exige texto que autorize (2013/31).
Leitura: distribuição (posição, largura, picos), curva no tempo (tendência, oscilação, platô), tabela (frações, não números; frequência depois sobre os sobreviventes), texto (sujeito populacional, verbo de seleção).
Exercícios temporariamente indisponíveis
Não foi possível consultar o banco de questões. O conteúdo da aula continua disponível.
Flashcards temporariamente indisponíveis
Não foi possível consultar os cartões de revisão.
Introdução à seleção natural (animação)
Biologia Ilustrada · 5:24
Introdução. Animação de cinco minutos que apresenta a seleção natural como sobrevivência e reprodução diferencial de indivíduos de uma população, com a ideia de que o ambiente seleciona o organismo mais apto a viver nele. Cobre a seção “Três condições bastam” e a definição de aptidão. Assista antes de ler e anote, a cada cena, quem variou, o que foi herdado e quem deixou mais descendentes; depois confira com o diagrama das três condições.
Tipos de seleção natural: direcional, estabilizadora, disruptiva e sexual
Estudar Mais Biologia com Prof. Fontinele · 10:27
Aprofundamento. Dez minutos sobre os modos de seleção (direcional, estabilizadora e disruptiva) e a seleção sexual, com os gráficos de distribuição antes e depois. Corresponde às seções “Três modos de seleção” e “Seleção sexual”. Enquanto assiste, aplique a cada exemplo as três perguntas da página: o pico mudou de lugar, a curva estreitou, apareceu um segundo pico?
Seleção artificial e domesticação
Khan Academy Brasil · 5:31
Aplicação. Cinco minutos em que a Khan Academy Brasil discute a seleção artificial e a domesticação de animais e plantas: quem escolhe, com que critério e o que muda nas populações. Complementa a seção “Seleção artificial: o mesmo mecanismo com critério humano” e o quadro que compara seleção natural, artificial e transgenia. Depois de assistir, responda com uma frase por que o cupuaçu é seleção artificial e não transgenia.
ENEM 2022, questão 131: seleção natural e padrões reprodutivos em anfíbios (resolução comentada)
Prof. Martins Bio · 7:51
Resolução de questões. Resolução comentada, com aula do conteúdo, da questão 131 do ENEM 2022 (caderno amarelo), que parte da teoria da seleção natural de Darwin e trata de padrões reprodutivos de anfíbios anuros, isto é, de sucesso e estratégia reprodutiva. É a aplicação direta da seção “Aptidão é uma conta, não um elogio”: resolva antes de ouvir a resposta e julgue cada alternativa pelo critério da descendência, não pelo da força ou da sobrevivência.
Variação, hereditariedade e reprodução diferencial são condições centrais da seleção natural.As três condições da seleção natural e o resultado. Faltando qualquer uma, não há seleção: sem variação não há o que escolher, sem hereditariedade a vantagem não passa adiante, sem reprodução diferencial a proporção não muda. A faixa inferior lista o que o mecanismo não contém. Diagrama autoral.A conta da aptidão num exemplo de uma geração. A aptidão absoluta é a fração que chegou a se reproduzir; a relativa divide pelo maior valor. Repare que o número de marrons caiu (de 400 para 240) e mesmo assim a frequência deles subiu: aptidão compara tipos, não conta cabeças. Diagrama autoral; valores do exemplo do texto.Os três modos de seleção sobre uma característica contínua. A pergunta é sempre a mesma: que região da distribuição deixa mais descendentes? Na direcional a média se desloca; na estabilizadora a média fica e a curva estreita; na disruptiva a curva se parte em dois picos. Diagrama autoral, curvas esquemáticas fora de escala.A vantagem do heterozigoto no caso da anemia falciforme. Sem malária, o alelo S só traz custo e a seleção o reduz. Com malária, o AS é o genótipo mais apto, e a seleção mantém o alelo S na população mesmo ao preço dos SS. As alturas das barras são ilustrativas; o risco relativo do AS e as frequências regionais têm fonte citada. Diagrama autoral.As duas vias da seleção sexual. À esquerda, a competição entre indivíduos do mesmo sexo produz armas; à direita, a escolha de parceiros produz ornamentos. Nas duas, a característica pode custar sobrevivência e ainda assim se espalhar, porque o que a seleção conta é descendência. Diagrama autoral.Seleção natural, seleção artificial e transgenia lado a lado. As duas primeiras compartilham o mecanismo (frequências mudando sobre variação que já existia) e diferem no critério; a terceira é outro processo, porque insere um gene que a espécie não tinha. Diagrama autoral.Resistência como rodadas de seleção. Em cima, a ordem que decide os itens: a mutação existe antes da primeira dose. Embaixo, um exemplo com taxas fixas: de 10 % para 99 % de resistentes em três aplicações, sem que nenhuma bactéria tenha mudado. À direita, a lógica do refúgio: manter sensíveis vivos para diluir o alelo de resistência. Diagrama autoral; valores do exemplo do texto.Oito populações em que a seleção foi medida. Cada cartão nomeia o agente seletivo e o que mudou; a última linha de todos é a mesma: o agente escolheu entre variantes que já existiam. Diagrama autoral.Selecionar reprodutores pode alterar populações ao longo das gerações; não exige inserir genes em laboratório.Aptidão envolve contribuição para a descendência. Características podem favorecer acasalamento e impor outros custos.Quantidade absoluta e frequência são diferentes: um grupo pode diminuir em número e aumentar em proporção.Diferenças observadas não provam hereditariedade. É necessário investigar transmissão e sucesso reprodutivo no contexto.Comparação ilustrativa de folhas de sol e sombra: plasticidade é uma resposta fenotípica às condições. Uma mudança individual não demonstra, por si, alteração de frequências alélicas.A faixa de milho sem a toxina Bt ao lado da lavoura Bt não é desperdício: mantém lagartas sensíveis vivas, que cruzam com as raras resistentes e diluem o alelo de resistência. É a seleção natural lida ao contrário, como manejo.Dois fundos, nenhum intermediário: os lagartos muito claros somem na areia, os muito escuros somem na rocha, e os de cor média são vistos nos dois. Seleção disruptiva, a que parte a distribuição em dois picos sem fazer duas espécies.Do cupuí ao cupuaçu: milênios de povos indígenas do Rio Negro replantando as sementes dos frutos de polpa maior. Seleção artificial, com critério humano e sem nenhum gene de fora; a prova de 2025 pendurou doze itens neste fruto.O experimento que o PAS 3 de 2024 descreveu em três itens. A colônia solitária da placa com penicilina já resistia antes de encontrar o antibiótico: o remédio não a criou, só eliminou as vizinhas. Mutação antes, seleção depois.Do lobo às raças: milhares de anos de pessoas escolhendo quais cães se reproduziriam, com os alelos que a espécie já tinha. Seleção artificial em escala de milênios, com um custo que a foto mostra: o focinho curto do buldogue respira mal.Em São Paulo, piretroides foram usados nas campanhas públicas de 1989 a 2000 e suspensos quando a resistência apareceu; dez anos depois ela continuava alta, mantida pelos mesmos piretroides do borrifador doméstico. Nenhum mosquito se adaptou: a frequência dos resistentes subiu.A cauda que atrapalha o voo e chama predadores existe porque pavoas preferem machos com mais ocelos. Seleção sexual: a característica custa sobrevivência e paga em descendentes, e aptidão é descendência.
Rota PAS 3
Origens da vida e evolução: quem seleciona o que vive · PAS 3
Fontes desta página
Os materiais abaixo contribuíram para a explicação e os exemplos deste assunto.
Rota PAS 3 — Origens da vida e evolução: quem seleciona o que vive · Abertura; Antes de começar (ideias 1 a 4); Seleção em ação: a natural e a que tem critério humano (itens reais PAS 3 2024/47, 2016/79, 2017/102; exemplo do cupuaçu; box da obra); Leia como na prova: o bloco do cupuaçu (texto-base verbatim e item 2025/67; itens 66 e 68 citados); Como a banca cobra (2024/46; 2013/31 só citado); Resolvido tipo C (resistência); Exercícios 13 e 14; Banco de treino T10, T15 a T18
Fonte principal da seção de seleção em ação e do bloco do cupuaçu. Lamarck e Darwin, evidências, genética de populações e especiação, do mesmo capítulo, ficam nas páginas próprias. Dados externos (Daphne Major, Biston, Lenski, guppies, Anolis, peixes-espinho, mariposas urbanas, bacalhau, HbS e malária, domesticação do cão e do milho, Aedes e piretroides, buva e glifosato) conferidos em fontes primárias listadas em website/docs/hub-pas/reviews/selecao-natural-2026-10-02.json.
Rota PAS 3 — Resoluções comentadas do capítulo de evolução · Resolvido tipo C (quatro leituras para a mesma resistência); itens 13 e 14
Padrões de erro (mutação induzida, caracteres adquiridos, mais fortes) e a leitura populacional da vantagem do heterozigoto.
Rota PAS 3 — Resoluções do banco de treino do capítulo de evolução · T10, T15, T16, T17, T18
Conferência dos gabaritos de 2016/79, 2024/46, 2024/47 e 2025/67 e das variantes.
Rota PAS 3 — Genética e biotecnologia · Fronteira entre selecionar e inserir (itens reais PAS 3 2016/77 e 78, 2019/39 a 43; exemplo da soja Roundup Ready e do cupuaçu); Banco de treino T3 (item real PAS 3 2022/64, vantagem do heterozigoto)
Itens 2016/78 e 2022/64 reproduzidos nesta página; 2019/42 e 2025/68 referenciados por GUID nas páginas que os detêm.
Rota PAS 3 — Resoluções do banco de treino de genética e biotecnologia · T3
Conferência do gabarito A de 2022/64 e análise dos distratores.