Como a energia da luz vira matéria orgânica a partir do gás carbônico do ar, e de onde sai o oxigênio que a planta libera?
O que você vai aprender
Escrever a equação completa da fotossíntese (6 CO₂ + 12 H₂O → C₆H₁₂O₆ + 6 O₂ + 6 H₂O) e indicar o destino de cada átomo, inclusive a origem do O₂ na água.
Descrever os experimentos clássicos (Priestley, Ingenhousz, Engelmann, Hill, van Niel e Ruben-Kamen, Calvin, Jagendorf) e dizer que erro cada um descartou.
Localizar no cloroplasto a etapa fotoquímica (membranas dos tilacoides) e a etapa química (estroma) e listar o que entra e o que sai de cada uma.
Explicar por que a folha é verde a partir do espectro de absorção da clorofila e distinguir espectro de absorção de espectro de ação.
Explicar a etapa fotoquímica: fotossistemas II e I, fotólise da água, cadeia transportadora, gradiente de prótons, ATP-sintase e formação de NADPH; distinguir fluxo cíclico de não cíclico.
Descrever as três fases do ciclo de Calvin e fazer a contabilidade: 3 voltas por G3P, 6 CO₂ por glicose, 18 ATP e 12 NADPH por glicose.
Justificar por que "fase escura" é um nome inadequado e julgar itens que coloquem o ciclo de Calvin à noite ou a glicose na etapa fotoquímica.
Explicar a fotorrespiração e as estratégias C4 (separação no espaço, anatomia Kranz, PEP carboxilase) e CAM (separação no tempo), reconhecendo que o ciclo de Calvin é o mesmo.
Ler curvas de fatores limitantes (luz, CO₂, temperatura) e distinguir saturação de inibição luminosa.
Comparar fotossíntese e respiração aeróbia quanto a local, momento, reagentes, produtos e proporção de gases, e julgar itens sobre o balanço na planta.
Identificar quem fotossintetiza (plantas, algas, cianobactérias, fitoplâncton, bactérias anoxigênicas) e o que é quimiossíntese.
Relacionar a fotossíntese ao ciclo do carbono em escala planetária (produção primária, curva de Keeling) e aos biocombustíveis, com números de fontes conferidas.
Uma árvore adulta pesa algumas toneladas. Pergunte a dez pessoas de onde veio essa massa e a maioria responderá “do solo”, algumas dirão “da água”, e quase ninguém dirá “do ar”. A resposta certa é a menos intuitiva: a madeira é, no essencial, gás carbônico que a folha prendeu e a luz pagou para prender, mais o hidrogênio da água. Do solo vêm só minerais, em gramas. O buraco em volta de uma árvore não fica mais fundo a cada ano justamente porque a árvore não come terra. Ela come ar e bebe luz, e o processo que faz isso chama-se fotossíntese: a conversão de energia luminosa em energia química e, ao mesmo tempo, a fixação do carbono do CO₂ em matéria orgânica. Esta página é sobre o processo, da molécula de clorofila ao planeta.
O recorte é o mecanismo e o que ele explica: a equação e o destino de cada átomo; a história de três séculos que levou da planta na campânula ao isótopo pesado; o cloroplasto como fábrica com dois endereços; os pigmentos e os dois espectros; a etapa fotoquímica, com fotólise da água, cadeia transportadora, quimiosmose e NADPH; o ciclo de Calvin e sua contabilidade de ATP e NADPH; o motivo de “fase escura” ser um nome ruim; a fotorrespiração e as soluções C₄ e CAM; os fatores que limitam a taxa, com saturação e inibição; quem fotossintetiza e quem fixa carbono sem luz; a escala planetária, da produção primária à curva de Keeling; os biocombustíveis; a leitura de gráficos e experimentos; e os erros que os itens plantam. O balanço entre fotossíntese e respiração na planta inteira, o ponto de compensação em profundidade, os estômatos e a transpiração estão em fisiologia vegetal; a mitocôndria e a cadeia respiratória, em respiração celular; a fermentação que transforma o açúcar da cana em etanol, em fermentação; a estrutura do cloroplasto entre as outras organelas, em organelas celulares; a origem do cloroplasto a partir de uma cianobactéria, em endossimbiose; a Grande Oxidação e as primeiras cianobactérias, em origem da vida; o ciclo do carbono, em ciclos biogeoquímicos; e o papel dos produtores nas cadeias, em cadeias e teias alimentares.
A equação esconde de onde vem cada átomo
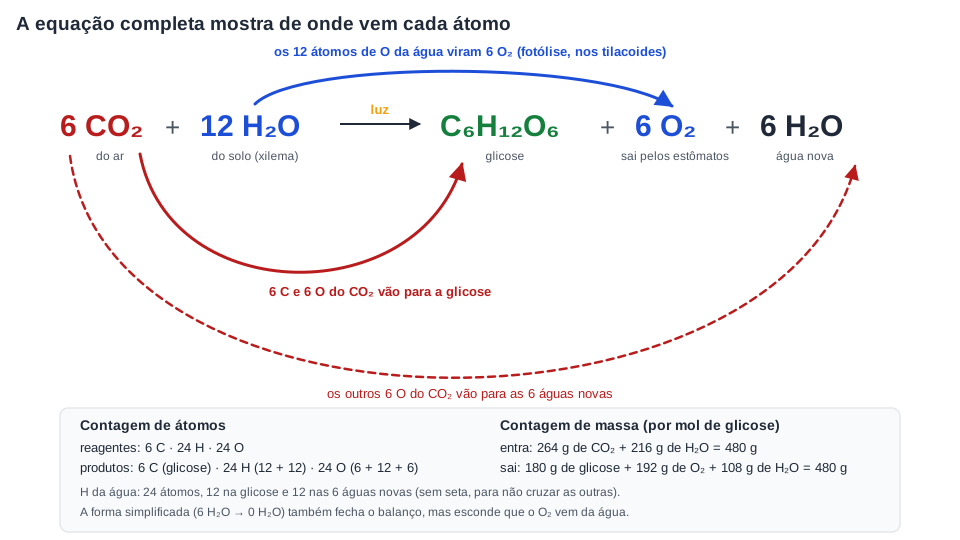
A forma completa da equação global é esta:
6CO2+12H2OluzC6H12O6+6O2+6H2O
Os átomos fecham: 6 carbonos, 24 hidrogênios e 24 oxigênios de cada lado. A forma simplificada cancela seis águas e fica com 6 CO₂ + 6 H₂O → C₆H₁₂O₆ + 6 O₂. As duas estão corretas como balanço, mas só a completa conta a história certa: são precisas doze moléculas de água porque todo o O₂ liberado sai da água, e seis O₂ exigem doze átomos de oxigênio, isto é, doze H₂O. O oxigênio do CO₂ não vai para o ar: vai parar na glicose e nas seis águas novas que aparecem do lado direito. O PAS 3 de 2023 (item 117) apresentou exatamente a equação completa, com E representando a energia luminosa, e perguntou se a fotossíntese “pode ser corretamente descrita” por ela: certo.
A equação completa mostra o destino de cada átomo: o O₂ vem da água, o carbono do CO₂ vai para a glicose, e o oxigênio do CO₂ acaba na glicose e na água nova. A massa também fecha: 264 + 216 = 180 + 192 + 108 gramas por mol de glicose. Diagrama autoral.
Fotossíntese: duas coisas ao mesmo tempo
Fotossíntese é a conversão de energia luminosa em energia química e a fixação de carbono inorgânico (CO₂) em matéria orgânica. Luz é energia pura: não tem massa, não tem carbono, não se acumula num tronco. Glicose é matéria que carrega energia nas suas ligações. A planta não “come luz” nem “produz energia”: converte a energia da luz e ganha matéria do ar. Quem faz isso com a luz é chamado fotoautótrofo (plantas, algas, cianobactérias); quem fabrica matéria orgânica com a energia de reações inorgânicas é quimioautótrofo; quem precisa de matéria orgânica pronta é heterótrofo. Todos eles respiram ou fermentam para recarregar ATP: ser produtor diz de onde vem a matéria, não dispensa a respiração.
Exemplo resolvido: a conta da massa. Massas molares: CO₂ 44 g/mol, H₂O 18 g/mol, glicose 180 g/mol, O₂ 32 g/mol. Pela equação simplificada, 6 mol de CO₂ (264 g) e 6 mol de água (108 g) viram 1 mol de glicose (180 g) e 6 mol de O₂ (192 g). Conferência: 264+108=372 e 180+192=372. Fecha. Repare no que a conta diz: para fabricar 180 g de açúcar, a planta retirou do ar 264 g de CO₂, mais do que a massa do açúcar. A diferença não sumiu: dois terços da massa do CO₂ são oxigênio, e esse oxigênio volta ao ar como O₂ (por via indireta, como a próxima seção mostra). É por isso que uma tonelada de madeira seca corresponde a mais de uma tonelada e meia de CO₂ que passou pelos estômatos.
O oxigênio não vem do gás carbônico
A leitura ingênua da equação diz que a planta “quebra o CO₂, fica com o C e solta o O₂”. Está errada, e a prova sabe disso. Na equação completa, as 12 moléculas de água fornecem os 12 átomos de oxigênio dos 6 O₂; os átomos de oxigênio do CO₂ vão para a glicose e para a água nova. Quando um item ou uma alternativa disser que o O₂ liberado “provém do CO₂” ou que a fotossíntese “libera o oxigênio do gás carbônico”, está errado. O experimento que decidiu a questão está na seção seguinte.
Trezentos anos para descobrir que a árvore vem do ar
A fotossíntese não foi descoberta de uma vez. Foi montada por partes, e cada parte responde a uma pergunta que o aluno de hoje também faz. Vale conhecer a sequência porque a prova gosta de experimentos clássicos, e porque cada um deles descarta um erro.
Van Helmont e o salgueiro (publicado em 1648). O médico flamengo Jan Baptist van Helmont secou cerca de 90 kg de terra, plantou um salgueiro de 2,3 kg e, por cinco anos, regou só com água. A árvore chegou a cerca de 77 kg; a terra, seca de novo, perdeu 57 g. A conclusão dele foi que a árvore era feita de água, a única coisa acrescentada. Ele descartou o solo com segurança e errou o resto, porque não pesou o que entra e sai de um vaso aberto: o ar. Faltava a ideia de que gás é matéria.
Priestley e a planta que “restaura” o ar (experimentos de 1771 e 1772). O químico inglês Joseph Priestley pôs uma vela acesa sob uma campânula de vidro: ela apagava, e um camundongo posto ali depois não sobrevivia. Um ramo de hortelã deixado sob a campânula por alguns dias restaurava o ar: a vela voltava a queimar, o animal vivia. Era a primeira evidência de que a planta devolve ao ar algo que a combustão e a respiração consomem, o gás que ele mesmo isolaria pouco depois e que hoje chamamos oxigênio. Os resultados eram irregulares: às vezes a planta não restaurava nada.
Ingenhousz acha a variável escondida (1779). O médico holandês Jan Ingenhousz, no livro Experiments upon Vegetables, mostrou por que Priestley oscilava: a planta só restaura o ar à luz, e só pelas partes verdes. No escuro, e nas partes não verdes, ela faz o contrário, “vicia” o ar como um animal. Ingenhousz viu as duas coisas que esta página e a de respiração juntam: a fotossíntese que depende da luz e a respiração que não para.
Senebier, de Saussure e Sachs: o CO₂, a água e o amido. Jean Senebier mostrou, em 1782, que o gás que a planta consome à luz é o gás carbônico. Nicolas-Théodore de Saussure, em 1804, pesou com cuidado e concluiu que a água é reagente e que a massa ganha pela planta vem do CO₂ e da água, não do solo. Julius von Sachs, nos anos 1860, mostrou que o produto se acumula como grãos de amido dentro dos cloroplastos, e que o amido aparece só nas partes iluminadas da folha. O teste do iodo em uma folha meio coberta com papel preto, que aparece adiante nesta página, é o experimento de Sachs em versão escolar.
Engelmann e o espectro de ação (1882). O fisiologista alemão Theodor Engelmann pôs um filamento de alga verde sob o microscópio, iluminou-o com a luz do Sol decomposta por um prisma, de modo que cada trecho do filamento recebesse uma cor, e espalhou na água bactérias que precisam de oxigênio e nadam para onde ele está. As bactérias se juntaram nos trechos vermelho e azul-violeta do filamento, e quase nenhuma no verde. O oxigênio estava sendo produzido onde a clorofila absorve. Foi o primeiro espectro de ação da fotossíntese, medido com bactérias antes de existir espectrofotômetro.
Blackman e as duas fases (1905). Medindo a taxa em função da luz, da temperatura e do CO₂, Frederick Blackman concluiu que o processo tem uma parte que depende da luz e outra, bioquímica, que depende da temperatura, e formulou a regra do fator limitante: a velocidade é ditada pelo fator mais escasso.
Hill separa as duas fases na bancada (1937). Robert Hill mostrou que cloroplastos isolados, fora da célula, liberam O₂ quando iluminados na presença de um aceptor artificial de elétrons, mesmo sem CO₂ nenhum. A liberação de oxigênio, portanto, não precisa da fixação de carbono: as duas fases são módulos separáveis. A reação leva o nome dele.
Van Niel prevê e Ruben e Kamen testam: o O₂ vem da água (1931 e 1941). O microbiologista holandês Cornelis van Niel estudou bactérias púrpuras que fotossintetizam usando gás sulfídrico (H₂S) em vez de água e que liberam enxofre, não oxigênio. Ele escreveu a equação geral 2H2A+CO2→(CH2O)+H2O+2A, em que A é enxofre nas bactérias e oxigênio nas plantas, e tirou a previsão: se as bactérias arrancam elétrons do H₂S e soltam S, as plantas arrancam elétrons da H₂O e soltam O. Em 1941, em Berkeley, Samuel Ruben, Merle Randall, Martin Kamen e James Hyde cultivaram a alga Chlorella em água enriquecida com o isótopo pesado oxigênio-18 e CO₂ comum, e depois o inverso. Quando o ¹⁸O estava na água, o O₂ liberado saía pesado; quando estava no CO₂, saía comum. Previsão por analogia, teste com marcador.
Calvin segue o carbono (anos 1950, Nobel de Química de 1961). Com o carbono-14 que Ruben e Kamen haviam produzido, Melvin Calvin, Andrew Benson e James Bassham expuseram algas a CO₂ radioativo por segundos, mataram as células em álcool fervente e separaram os compostos por cromatografia, para ver em que molécula o carbono aparecia primeiro. Assim mapearam o ciclo que leva o nome de Calvin. O Nobel de 1961 foi só dele.
Mitchell e a quimiosmose (hipótese de 1961, Nobel de 1978). Peter Mitchell propôs que a energia que liga o transporte de elétrons à síntese de ATP não está em nenhum intermediário químico, mas num gradiente de prótons através de uma membrana fechada. Em 1966, André Jagendorf e Ernest Uribe mergulharam cloroplastos em ácido, transferiram-os para uma solução básica, no escuro, e eles fabricaram ATP: só o gradiente de prótons, sem luz nenhuma, bastou para girar a ATP-sintase. É o mesmo mecanismo da mitocôndria, explicado em respiração celular.
Ano de experimento, ano de publicação, ano de prêmio
Datas de ciência costumam vir em três versões. Priestley fez os experimentos da campânula em 1771 e 1772 e publicou em 1772; Ingenhousz publicou em 1779; Hill publicou em maio de 1937; van Niel propôs em 1931 e Ruben e colaboradores publicaram em 1941; Calvin mapeou o ciclo nos anos 1950 e recebeu o Nobel em 1961; Mitchell propôs a quimiosmose em 1961 e recebeu o Nobel em 1978. Um item que troque “propôs” por “recebeu o prêmio” muda a década.
O cloroplasto é uma fábrica com dois endereços
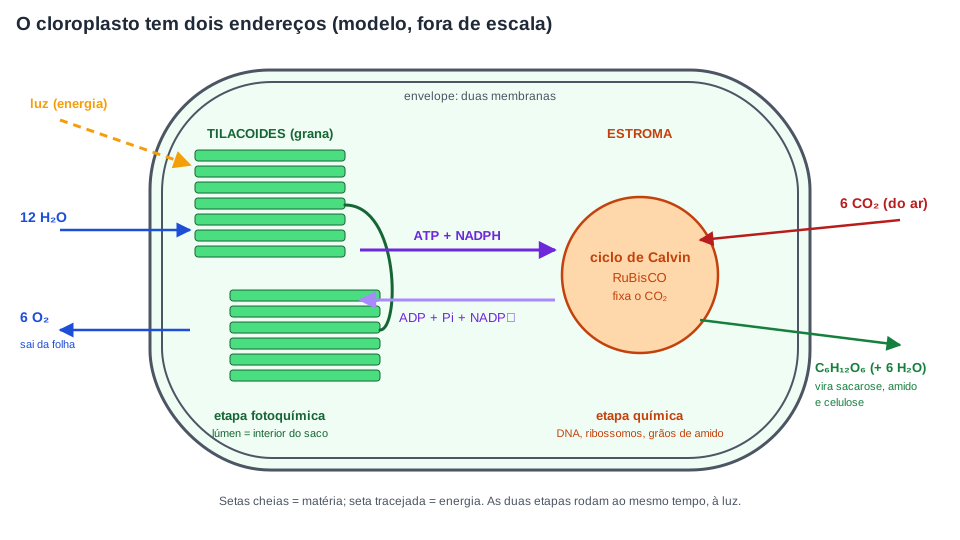
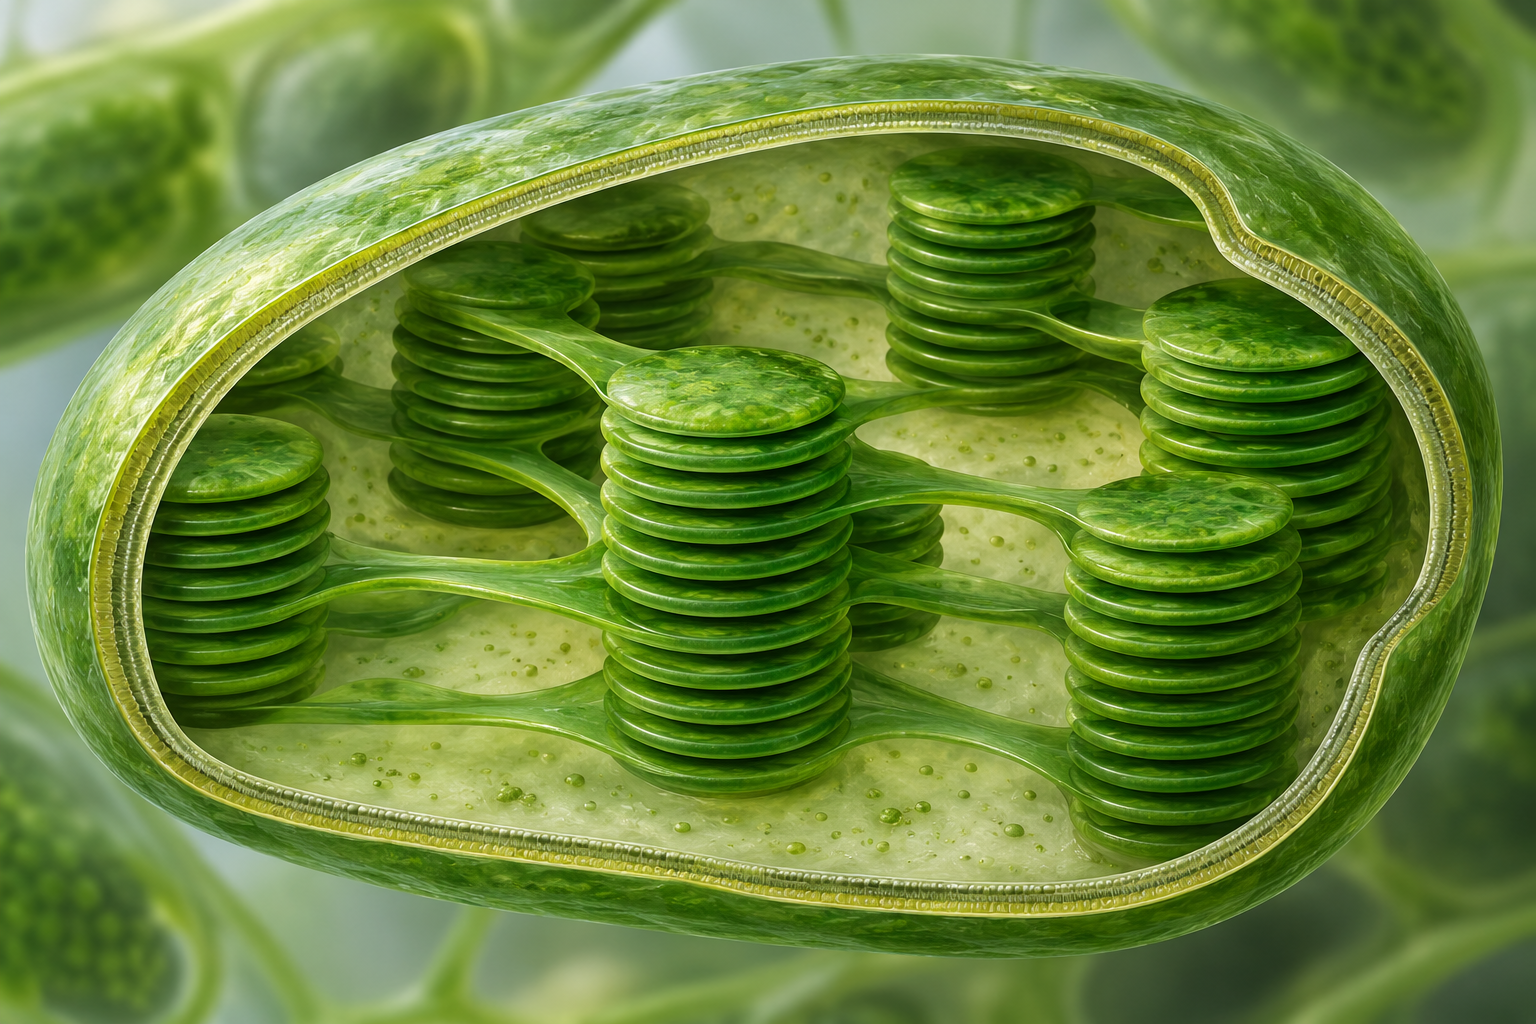
O cloroplasto tem duas membranas externas, o envelope, e DNA próprio, como a mitocôndria: as duas organelas descendem de procariontes englobados, a história de endossimbiose. O que o cloroplasto tem a mais é um terceiro sistema de membranas por dentro: sacos achatados chamados tilacoides, empilhados em grana (singular: granum) e ligados entre si por lamelas, mergulhados num fluido denso, o estroma. O interior do tilacoide é o lúmen. A divisão de trabalho é geográfica. Nas membranas dos tilacoides ficam a clorofila, os fotossistemas, a cadeia transportadora e a ATP-sintase: ali acontece a etapa fotoquímica. No estroma ficam a RuBisCO e as demais enzimas do ciclo de Calvin: ali acontece a etapa química, a fixação do carbono. Grãos de amido também se formam no estroma. Uma célula do interior da folha tem dezenas a uma centena de cloroplastos, cada um com 3 a 10 micrômetros, e eles se movem com o citoplasma e se orientam conforme a luz.
Dois endereços no mesmo cloroplasto. Nos tilacoides, a luz quebra a água, libera O₂ e carrega ATP e NADPH; no estroma, ATP e NADPH pagam a fixação do CO₂ em açúcar pela RuBisCO, e ADP, fosfato e NADP⁺ voltam para serem recarregados. As duas etapas rodam ao mesmo tempo, à luz. Fora de escala. Diagrama autoral.
A prova cobra o endereço com insistência, quase sempre trocando um substantivo. O PAS 3 de 2023 (item 116) afirmou que “os cloroplastos são compostos por um complexo membranoso formado por bolsas denominadas tilacoides”: certo. O PAS 3 de 2011 (item 103) disse que “a captação de luz pela célula é realizada por fotossistemas que se encontram nos cloroplastos”: certo, e a versão mais precisa diria “nas membranas dos tilacoides”. O PAS 1 de 2025 (item 83) disse que a fotossíntese “acontece nas suas cristas mitocondriais”: errado, cristas são a membrana interna da mitocôndria, onde fica a cadeia respiratória; o resto do item estava certo, e o substantivo trocado decidiu o gabarito.
Crachá das partes do cloroplasto
Envelope: duas membranas; controla o que entra e sai. Tilacoide: saco achatado cuja membrana contém clorofilas, fotossistemas I e II, cadeia transportadora e ATP-sintase; o interior é o lúmen, onde os prótons se acumulam. Granum: pilha de tilacoides. Estroma: fluido com RuBisCO, enzimas do ciclo de Calvin, DNA circular, ribossomos e grãos de amido. Para julgar um item: luz, clorofila, fotólise, O₂, ATP e NADPH são palavras de tilacoide; CO₂, RuBisCO, fixação e açúcar são palavras de estroma; cristas, Krebs e aceptor final são palavras de mitocôndria.
Por que a folha é verde: dois espectros que a prova confunde
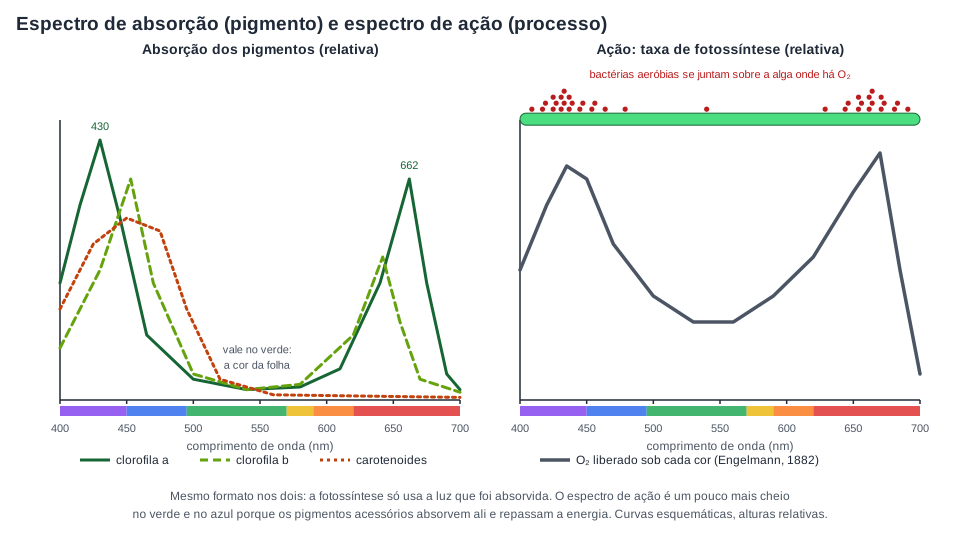
A luz do Sol chega em todas as cores do visível, de cerca de 400 nm (violeta) a 700 nm (vermelho). Um pigmento é uma molécula que absorve algumas dessas cores e devolve as outras, e a cor que vemos é a devolvida, refletida ou transmitida. A clorofila a, a única que participa diretamente da conversão de energia nos centros de reação, absorve com força no azul-violeta, com pico perto de 430 nm, e no vermelho, com pico perto de 660 nm, e quase nada no verde, entre 500 e 600 nm. O verde atravessa a folha ou é refletido, e por isso a folha é verde. A clorofila b tem picos deslocados, perto de 453 e 642 nm, e os carotenoides (amarelos e laranjas, como o betacaroteno) absorvem no azul, entre 420 e 500 nm. Esses pigmentos acessórios captam cores que a clorofila a perde e passam a energia adiante, alargando o trecho do espectro que a folha aproveita; os carotenoides também protegem o aparelho contra excesso de luz, dissipando energia como calor.
Espectro de absorção (o que cada pigmento absorve) e espectro de ação (quanto de fotossíntese cada cor produz). Os dois têm o mesmo formato porque a fotossíntese só usa a luz que foi absorvida; o espectro de ação é um pouco mais cheio no verde e no azul porque os pigmentos acessórios absorvem ali e repassam a energia. Os pontos vermelhos são as bactérias de Engelmann, que procuram o O₂ onde ele é produzido. Curvas esquemáticas. Diagrama autoral.
Há dois gráficos diferentes aqui, e um item pode trocar um pelo outro. O espectro de absorção é uma propriedade do pigmento: quanta luz de cada comprimento de onda a molécula absorve, medida num tubo com o pigmento extraído. O espectro de ação é uma propriedade do processo: quanta fotossíntese (O₂ liberado ou CO₂ fixado) a folha inteira faz sob cada cor. O de Engelmann foi um espectro de ação, com bactérias no lugar do sensor. Os dois têm quase o mesmo formato, altos no vermelho e no azul e baixos no verde, porque a planta só pode usar a luz que absorve; mas o espectro de ação é um pouco mais cheio no verde e no azul-esverdeado do que a curva da clorofila a sozinha, porque os pigmentos acessórios absorvem nessas faixas e entregam a energia aos centros de reação. O PAS 3 de 2011 pendurou dois itens num gráfico de absorção das clorofilas a e b impresso no caderno: um afirmava que a clorofila a reflete mais luz verde que a b (certo, pelas curvas da prova) e outro, do tipo C, pedia para escolher entre quatro gráficos o espectro de ação da fotossíntese. Sem o gráfico, o item não se reproduz, mas a habilidade é esta: ler o vale no verde como a cor que sobra, e reconhecer o espectro de ação pelo formato do espectro de absorção.
Por que as folhas mudam de cor no outono. Em clima temperado, a planta desmonta a clorofila antes de descartar a folha, para recolher o nitrogênio e o magnésio da molécula. Sem a clorofila, que é muito mais abundante, os carotenoides que estavam lá o tempo todo aparecem: a folha fica amarela e laranja. Ela revela pigmentos, não os produz. Os vermelhos e roxos de algumas espécies, esses sim, vêm de antocianinas sintetizadas no fim da estação, pigmentos solúveis no vacúolo, não no cloroplasto. O PAS 2 de 2011 (item 27), num bloco sobre o outono, afirmou que as mudanças de cor “resultam do aumento da produção de novos pigmentos nas folhas”: errado, porque a explicação do fenômeno principal é a degradação da clorofila que desmascara os carotenoides.
A clorofila não absorve verde
“A folha é verde porque a clorofila absorve a luz verde” inverte a física. A cor de um objeto é a luz que ele devolve; a folha é verde porque a clorofila absorve azul e vermelho e deixa o verde passar. Consequência prática: uma planta sob luz verde pura cresce mal, e uma estufa com lâmpadas de LED usa azul e vermelho, por isso a luz rosada. Segunda inversão: “a planta usa toda a luz do Sol” também está errada; ela só aproveita a faixa visível, cerca de metade da energia solar que chega ao solo, e pouco do verde dentro dela.
Exemplo resolvido: ler o experimento de Engelmann. Um filamento de alga é iluminado por um espectro de 400 a 700 nm; bactérias aeróbias se acumulam em dois trechos, um perto de 430 nm e outro perto de 670 nm, e quase não aparecem entre 500 e 600 nm. Três conclusões podem ser tiradas e uma não pode. (1) O O₂ é produzido onde a luz é absorvida pela clorofila: pode, é a leitura direta, e corresponde aos picos de absorção da clorofila a. (2) A luz verde não sustenta fotossíntese nenhuma: não pode, porque “quase nenhuma bactéria” não é “nenhuma”; os pigmentos acessórios absorvem um pouco no verde, e o espectro de ação ali é baixo, não nulo. (3) As bactérias são atraídas pela cor da luz: não pode, porque o controle é o próprio experimento, que usa bactérias que respondem ao O₂, não à luz; sem a alga, elas não se distribuem assim. (4) O gráfico obtido é um espectro de ação, não de absorção: pode, porque a grandeza medida é o produto do processo, o O₂, e não a luz que o pigmento retém. Conferência: se fosse espectro de absorção, bastaria o extrato de clorofila num tubo, sem alga viva nem bactéria.
Etapa fotoquímica: a luz quebra a água e carrega ATP e NADPH
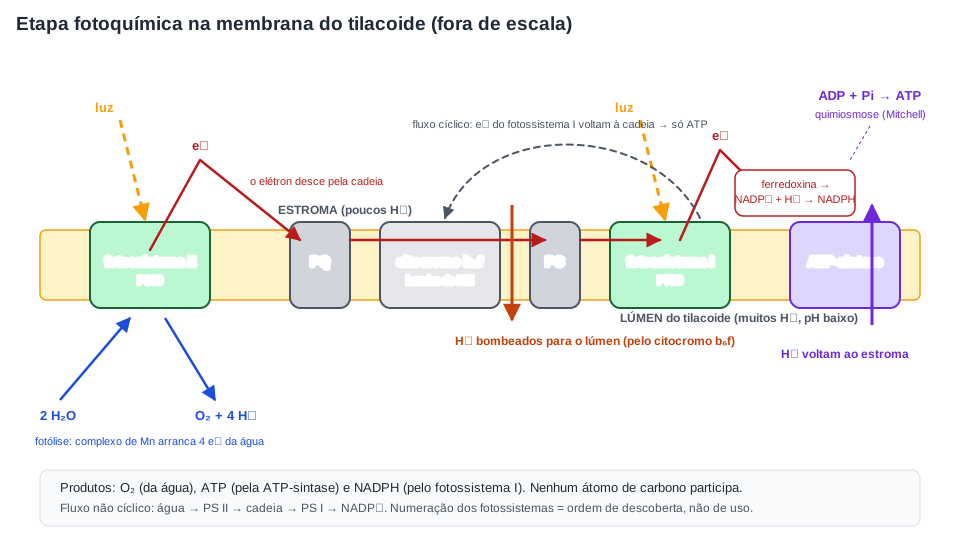
Nas membranas dos tilacoides, centenas de moléculas de clorofila e carotenoides estão organizadas em conjuntos chamados fotossistemas, que funcionam como antenas. Um fóton absorvido por qualquer pigmento da antena tem sua energia repassada de molécula em molécula até um par especial de clorofilas a no centro de reação, que perde um elétron energizado. Há dois fotossistemas, numerados pela ordem em que foram descobertos, não pela ordem em que trabalham: o fotossistema II (P680, pelo pico de absorção do centro de reação, em 680 nm) age primeiro, e o fotossistema I (P700) age depois. O caminho dos elétrons, desenhado em função da energia, tem a forma de um Z deitado, e por isso é chamado esquema Z.
A sequência, em cinco passos:
Fotossistema II perde um elétron. A luz excita o P680, que entrega um elétron de alta energia ao primeiro transportador da cadeia. O P680 fica com um “buraco” e vira o oxidante mais forte conhecido na biologia: precisa repor o elétron.
A água repõe o elétron: fotólise. Um complexo de proteínas com quatro átomos de manganês, preso ao fotossistema II do lado do lúmen, arranca elétrons de duas moléculas de água por vez: 2H2O→O2+4H++4e−. Os quatro elétrons repõem quatro vezes o P680; os quatro prótons ficam no lúmen; o O₂ é o que sobra da água e sai da folha. É deste passo que vem todo o oxigênio que você respira.
A cadeia transportadora bombeia prótons. Os elétrons descem por uma cadeia de transportadores na membrana (plastoquinona, complexo citocromo b₆f, plastocianina), e nessa descida o complexo citocromo bombeia H⁺ do estroma para o lúmen. O lúmen fica ácido e o estroma, alcalino: forma-se um gradiente de prótons.
Fotossistema I reenergiza o elétron e forma NADPH. O elétron chega ao P700 já sem energia; um segundo fóton o reexcita, e ele é entregue, pela ferredoxina, à enzima que reduz o NADP⁺: NADP++2e−+H+→NADPH. O NADPH é o transportador de elétrons da fotossíntese, parente do NADH da respiração, e sai para o estroma.
Quimiosmose: o gradiente gira a ATP-sintase. Os prótons acumulados no lúmen só têm uma saída, o canal da ATP-sintase; ao atravessá-lo, giram a enzima, que prende um fosfato ao ADP. É a mesma máquina e a mesma hipótese quimiosmótica de Mitchell que opera na mitocôndria, com os sentidos trocados: na mitocôndria os prótons se acumulam fora da membrana interna; no cloroplasto, dentro do tilacoide.
A etapa fotoquímica na membrana do tilacoide. A água entrega elétrons ao fotossistema II e vira O₂; os elétrons descem pela cadeia bombeando prótons para o lúmen, são reexcitados no fotossistema I e acabam no NADPH; os prótons voltam pela ATP-sintase e formam ATP. O fluxo cíclico (seta tracejada) devolve elétrons do fotossistema I à cadeia e produz só ATP, sem NADPH nem O₂. Fora de escala. Diagrama autoral.
Os produtos da etapa fotoquímica são três: ATP, NADPH e O₂. Note o que não aparece: a glicose. Nenhum átomo de carbono participou até aqui. O que a luz produziu foram dois transportadores de energia e poder redutor, destinados ao estroma, e um gás residual. Em uma frase, o fluxo descrito acima é o não cíclico, da água ao NADPH; existe também um fluxo cíclico, em que o elétron reexcitado no fotossistema I volta à cadeia transportadora em vez de ir ao NADP⁺, bombeando mais prótons e produzindo só ATP, sem NADPH nem O₂. A planta usa o cíclico para ajustar a proporção entre ATP e NADPH, porque o ciclo de Calvin consome mais ATP do que NADPH (3 para 2).
O que entra, o que sai e onde
Etapa fotoquímica (membrana dos tilacoides, só com luz). Entra: luz, água, ADP + fosfato, NADP⁺. Sai: O₂ (da água), ATP, NADPH. Mecanismo: fotossistemas II e I em série, fotólise da água pelo complexo de manganês, cadeia transportadora que bombeia H⁺ para o lúmen, ATP-sintase movida pelo gradiente (quimiosmose), redução do NADP⁺. Etapa química (estroma). Entra: CO₂, ATP, NADPH. Sai: açúcar de três carbonos (que vira glicose, sacarose, amido, celulose), ADP + fosfato, NADP⁺. Mecanismo: ciclo de Calvin, com a RuBisCO fixando o CO₂. Os dois conjuntos de produtos são o elo: a etapa química devolve ADP, fosfato e NADP⁺ que a etapa fotoquímica recarrega.
Quantas clorofilas por molécula de oxigênio
Em 1932, Robert Emerson e William Arnold iluminaram algas com flashes muito curtos e mediram quanto O₂ saía por flash. O resultado foi que cerca de 2 400 moléculas de clorofila cooperam para liberar uma única molécula de O₂, o que levou à ideia de “unidade fotossintética”: a maior parte da clorofila é antena, e só uma fração minúscula fica nos centros de reação. Experimentos posteriores fixaram em 8 a 10 o número mínimo de fótons absorvidos por O₂ liberado, coerente com os quatro elétrons da fotólise passando por dois fotossistemas (dois fótons por elétron). Para uma glicose, que exige 6 O₂, isso dá no mínimo 48 fótons.
Ciclo de Calvin: o CO₂ vira açúcar no estroma, e a conta fecha
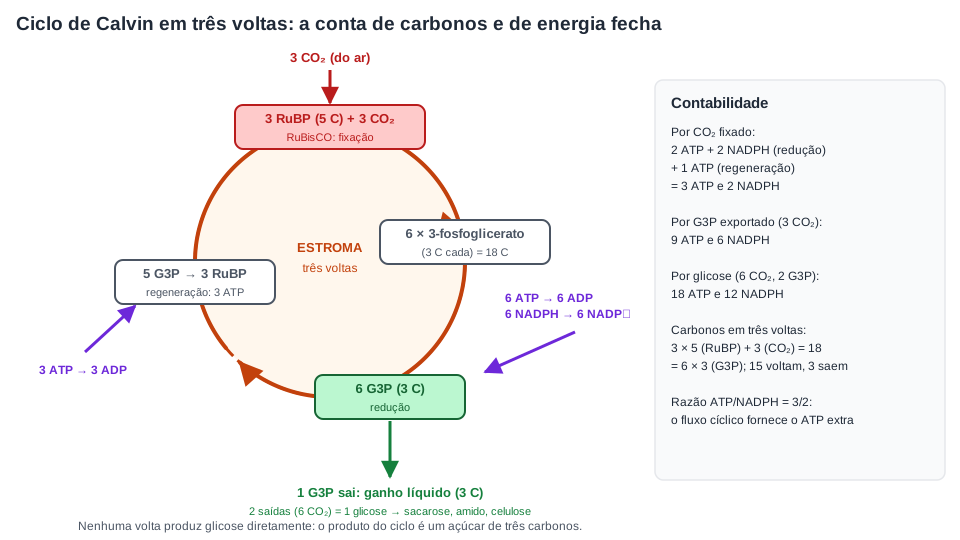
A etapa química acontece no estroma e tem três fases, que giram como um ciclo porque a molécula que recebe o CO₂ precisa ser refeita a cada volta.
Fase 1, fixação. A enzima RuBisCO (ribulose-1,5-bisfosfato carboxilase/oxigenase) prende uma molécula de CO₂ a uma molécula de cinco carbonos que já existe no estroma, a ribulose-1,5-bisfosfato (RuBP). O composto de seis carbonos que se forma é instável e se parte em duas moléculas de três carbonos, o 3-fosfoglicerato. Este é o instante em que um átomo de carbono deixa de ser gás e passa a ser matéria orgânica: por isso o ciclo também se chama ciclo C₃, e as plantas que o fazem diretamente, plantas C₃.
Fase 2, redução. Cada 3-fosfoglicerato recebe um fosfato de um ATP e depois elétrons e hidrogênio de um NADPH, e vira gliceraldeído-3-fosfato (G3P), um açúcar de três carbonos. É aqui que a energia da luz, guardada em ATP e NADPH, entra na molécula orgânica. Por CO₂ fixado, essa fase gasta 2 ATP e 2 NADPH.
Fase 3, regeneração. De cada seis G3P formados em três voltas, cinco são rearranjados, com gasto de mais 3 ATP (1 por CO₂), para refazer três RuBP, que podem receber os próximos três CO₂. O sexto G3P sai do ciclo. Esse é o ganho líquido: três voltas, três CO₂, um G3P exportado. Duas rodadas de três voltas, isto é, 6 CO₂, rendem dois G3P, e dois G3P fazem uma glicose. A glicose, por sua vez, vira sacarose para viagem pelo floema, amido para reserva no próprio cloroplasto ou nas raízes, e celulose para a parede.
Três voltas do ciclo de Calvin: três CO₂ entram, seis G3P se formam, cinco regeneram as três RuBP e um sai como ganho líquido. A conta de carbonos fecha (3 × 5 + 3 = 18 = 6 × 3) e a de energia também: 9 ATP e 6 NADPH por G3P, 18 ATP e 12 NADPH por glicose. Diagrama autoral.
Exemplo resolvido: a contabilidade por glicose. Quantos ATP e NADPH a etapa fotoquímica precisa entregar para que o estroma monte uma glicose? Por CO₂ fixado: 2 ATP e 2 NADPH na redução, mais 1 ATP na regeneração, total 3 ATP e 2 NADPH. Uma glicose exige 6 CO₂: 6×3=18 ATP e 6×2=12 NADPH. Conferência pelos carbonos: três voltas consomem 3 CO₂ (3 C) e 3 RuBP (15 C), somando 18 C, e produzem 6 G3P (18 C); cinco G3P (15 C) viram 3 RuBP (15 C), e sobra 1 G3P (3 C). Duas rodadas, 6 C, uma glicose. Conferência pela razão: 18 para 12 é 3 para 2, a proporção que o fluxo cíclico ajuda a manter. Repare na assimetria com a respiração: desmontar uma glicose rende cerca de 30 ATP; montar uma custa 18 ATP mais 12 NADPH, e cada NADPH vale energeticamente perto de 2,5 ATP. Montar sai mais caro do que desmontar devolve, como em toda conversão de energia.
A enzima mais abundante do planeta é lenta
A RuBisCO processa poucas moléculas de CO₂ por segundo, enquanto enzimas rápidas como a catalase processam milhões. A planta compensa com quantidade: a RuBisCO chega a metade da proteína solúvel de uma folha, e uma estimativa publicada em 2019 por Yinon Bar-On e Ron Milo na revista PNAS calculou cerca de 0,7 bilhão de toneladas da enzima na Terra, mais de 90 % delas nas folhas das plantas terrestres, cerca de 3 % da massa seca de uma folha. É por isso que ela é chamada de proteína mais abundante do planeta. E é por isso que a folha é um alimento rico em proteína para quem consegue digeri-la: a vaca que pasta está, em boa parte, comendo RuBisCO.
“Fase escura” é um nome ruim, e a prova sabe
Livros antigos chamavam o ciclo de Calvin de “fase escura”, porque ele não usa fótons diretamente. O nome induz a dois erros, e os dois já apareceram em alternativas. O primeiro é achar que o ciclo acontece à noite. Não acontece de forma sustentada: ele depende do ATP e do NADPH que só a etapa fotoquímica fornece, e no escuro esses estoques acabam em minutos; além disso, várias enzimas do ciclo, inclusive a RuBisCO, só ficam ativas quando a luz altera o pH e o estado redox do estroma. O segundo erro é achar que as duas etapas se alternam, uma de dia e outra de noite. Elas rodam ao mesmo tempo, à luz, no mesmo cloroplasto, a poucos nanômetros de distância: o NADPH formado na membrana do tilacoide é consumido no estroma segundos depois. Os nomes que descrevem o que cada etapa faz são etapa fotoquímica (ou reações dependentes de luz) e etapa química (fixação do carbono, ou reações independentes da luz, no sentido de que não usam fótons diretamente). Se um item usar “fase clara” e “fase escura”, julgue pelo mecanismo descrito, não pelo rótulo: “a fase escura ocorre durante a noite, quando a planta respira” está errado; “a fase escura depende dos produtos da fase clara” está certo.
Quatro frases sobre as etapas, duas certas e duas erradas
Certa: “O O₂ é liberado na etapa fotoquímica, a partir da água.” Certa: “A glicose é formada na etapa química, a partir do CO₂, com ATP e NADPH produzidos à luz.” Errada: “A glicose é produzida na etapa fotoquímica, pela ação direta da luz sobre o CO₂.” Errada: “O ATP produzido na fotossíntese abastece toda a célula vegetal.” Esta última merece atenção: o ATP da etapa fotoquímica é consumido quase inteiramente dentro do próprio cloroplasto, pelo ciclo de Calvin. A célula vegetal, inclusive a da folha, recarrega o ATP que gasta nas suas bombas, sínteses e divisões pela respiração nas mitocôndrias, oxidando o açúcar que a fotossíntese fabricou. A planta não “vive de luz”: vive de açúcar, como você.
Fotorrespiração e as plantas C₄ e CAM: mesmo ciclo, pré-fixação diferente
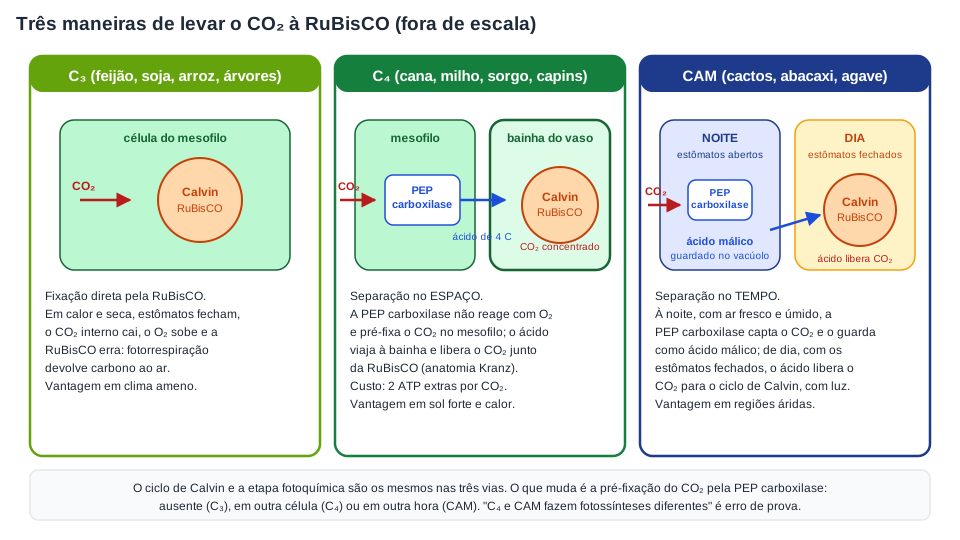
O nome completo da RuBisCO termina em “oxigenase” por um motivo: a enzima não distingue bem o CO₂ do O₂, e às vezes prende O₂ à RuBP no lugar do CO₂. O produto dessa reação errada é tóxico e precisa ser reciclado por um caminho que gasta ATP e libera CO₂ em vez de fixá-lo: a fotorrespiração. Em condições amenas, o desperdício é tolerável. Em dia quente e seco, a planta fecha os estômatos para não perder água, o CO₂ dentro da folha cai, o O₂ produzido pela fotólise se acumula, e a RuBisCO passa a errar com frequência: a planta C₃ pode perder uma fração grande do carbono que fixou. Esse é o custo que duas soluções evolutivas reduzem, cada uma separando a captura do CO₂ da sua fixação pela RuBisCO.
Plantas C₄: separação no espaço. Cana-de-açúcar, milho, sorgo e muitos capins têm uma anatomia foliar especial, chamada anatomia Kranz (“coroa”, em alemão): as células da bainha que envolve cada vaso são rodeadas por células do mesofilo, em anel. No mesofilo, uma enzima chamada PEP carboxilase, que não se confunde com O₂ e tem afinidade muito maior pelo CO₂, prende o gás a um composto de três carbonos e forma um ácido de quatro carbonos (daí o nome). Esse ácido viaja para as células da bainha, onde é descarboxilado: o CO₂ é liberado em concentração alta, exatamente onde está a RuBisCO, que então quase não erra. O ciclo de Calvin é o mesmo; o que a planta C₄ acrescentou foi uma bomba de CO₂ antes dele, ao custo de 2 ATP extras por CO₂. Em sol forte e calor, o investimento compensa: as C₄ têm ponto de compensação de CO₂ muito baixo, alta eficiência no uso da água e as maiores produtividades da agricultura. Em clima frio e nublado, o gasto extra não compensa, e as C₃ (feijão, soja, arroz, trigo, quase todas as árvores) levam vantagem.
Plantas CAM: separação no tempo. Cactos, abacaxi, agave e muitas suculentas fazem a mesma pré-fixação pela PEP carboxilase, mas à noite, com os estômatos abertos quando o ar é mais fresco e úmido. O CO₂ é guardado como ácido málico no vacúolo (o nome vem de “metabolismo ácido das crassuláceas”, a família em que foi descrito). De dia, com os estômatos fechados para não perder água, o ácido é quebrado, o CO₂ é liberado dentro da célula e entra no ciclo de Calvin, com o ATP e o NADPH da luz. O PAS 2 de 2013 (item 31) descreveu esse mecanismo com tudo no lugar, estômatos fechados de dia e abertos à noite, CO₂ convertido em ácidos orgânicos à noite e liberado de dia: certo. O PAS 2 de 2007 (item 52) chamou a via CAM de adaptação vantajosa em regiões áridas: certo. E o item 50 do mesmo bloco de 2007 afirmou que as C₃ são mais eficientes na fixação de CO₂ que as C₄ em condições iguais: errado, é o contrário.
Três maneiras de levar CO₂ à RuBisCO. A planta C₃ fixa direto e paga a fotorrespiração no calor; a C₄ pré-fixa no mesofilo e concentra o CO₂ na bainha (separação no espaço); a CAM pré-fixa à noite e fixa de dia (separação no tempo). O ciclo de Calvin é o mesmo nas três. Fora de escala. Diagrama autoral.
C₄ e CAM não são "outras fotossínteses"
As três vias têm a mesma etapa fotoquímica e o mesmo ciclo de Calvin. O que muda é se existe uma etapa de pré-fixação pela PEP carboxilase e onde ela acontece: em outra célula (C₄) ou em outra hora (CAM). Um item que diga que “as plantas C₄ não realizam o ciclo de Calvin” ou que “as plantas CAM fazem fotossíntese à noite” está errado. A CAM capta CO₂ à noite; a fotossíntese propriamente dita, que precisa de luz, continua de dia.
O que limita a taxa: luz, CO₂, temperatura e água
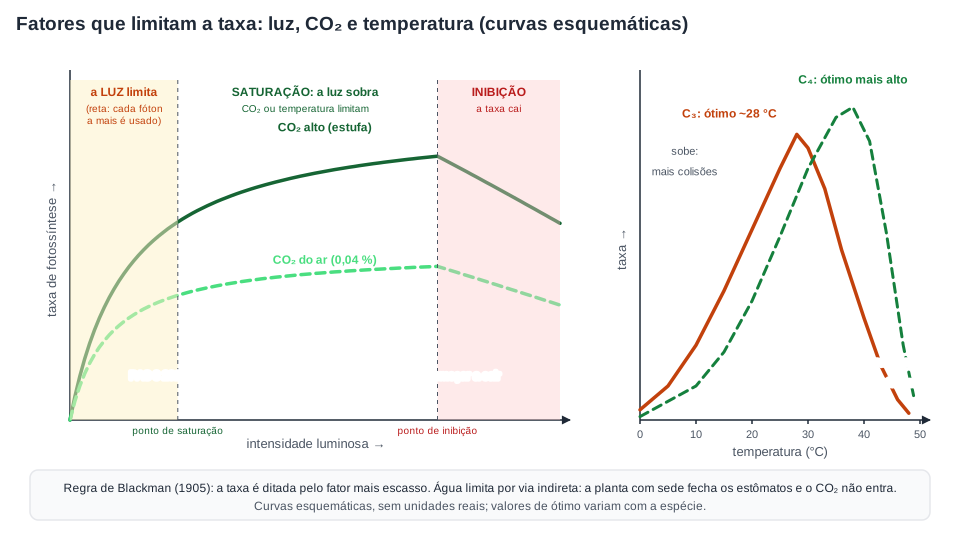
A velocidade da fotossíntese depende de quanto de cada ingrediente chega, e a regra de Blackman decide: a taxa é ditada pelo fator mais escasso. Luz. Com pouca luz, a etapa fotoquímica é o gargalo, e a taxa sobe quase em linha reta com a intensidade; a partir de certo ponto a luz sobra, e a taxa se estabiliza num patamar, o ponto de saturação luminosa: aumentar a luz não aumenta a fotossíntese, porque o gargalo passou a ser outro, em geral o CO₂ ou a capacidade das enzimas. Com luz ainda mais forte, a taxa passa a cair: é o ponto de inibição (ou fotoinibição), em que o excesso de energia danifica o fotossistema II e a planta gasta recursos consertando-o. CO₂. O ar tem cerca de 0,04 % de CO₂ (perto de 430 partes por milhão em 2026), e ele entra devagar pelos estômatos; é o limitante habitual em dia claro. Dobre o CO₂ e o patamar de saturação sobe, o que as estufas comerciais fazem de propósito. Temperatura. Age sobre as enzimas do estroma: a taxa sobe até um ótimo e cai depois, por desnaturação; o ótimo varia com a espécie e é mais alto nas C₄. Água. Limita por via indireta: a planta com pouca água fecha os estômatos, e sem estômato aberto não entra CO₂.
Curvas de fatores. À esquerda: quando a luz limita, a taxa sobe com ela; na saturação, a luz sobra e o CO₂ (ou a temperatura) limita, por isso mais CO₂ eleva o patamar; com luz excessiva a taxa cai, na inibição. À direita: a temperatura age sobre as enzimas, com ótimo e queda por desnaturação. Curvas esquemáticas. Diagrama autoral.
O PAS 3 de 2011 julgou os dois pontos da curva de luz na mesma prova, e os dois itens eram certos. O item 101: “no processo de fotossíntese, há, necessariamente, um ponto de saturação luminosa, a partir do qual o aumento de intensidade da luz incidente não corresponderá a aumento na taxa de fotossíntese”. O item 100: “no processo de fotossíntese, há, necessariamente, um ponto de inibição luminosa, a partir do qual o aumento de intensidade da luz induz a diminuição na taxa de fotossíntese”. Saturar é parar de subir; inibir é começar a cair. Um item que defina um ponto com o comportamento do outro está errado. O “necessariamente” não é marca de erro aqui: para qualquer planta existe uma intensidade a partir da qual a taxa para de crescer, e outra, mais alta, a partir da qual ela cai, ainda que os valores variem muito de espécie para espécie.
Exemplo resolvido: qual fator está limitando? Numa estufa fechada, em dia claro, o agricultor injeta CO₂ e a produção sobe; num dia nublado, injeta o mesmo CO₂ e nada acontece. Por quê? No dia claro, a planta está no patamar da curva de luz: a luz sobra e o CO₂ limita; mais CO₂ desloca a planta para a curva de cima e a taxa sobe. No dia nublado, ela está no trecho inicial, limitada pela luz: não há ATP e NADPH suficientes para fixar o CO₂ a mais, e a taxa não muda. Conferência: a regra prevê que só o fator limitante altera a taxa quando aumentado; nas duas situações, foi o que se viu. O ponto de compensação, a diferença entre plantas de sol e de sombra e a leitura detalhada da curva de luz estão em fisiologia vegetal.
Fotossíntese e respiração: processos inversos na mesma célula
A respiração aeróbia é a equação da fotossíntese lida ao contrário: C6H12O6+6O2→6CO2+6H2O, com liberação de energia que a mitocôndria converte em ATP. Toda célula viva da planta respira, da raiz à pétala, de dia e de noite. Só as células com cloroplastos fotossintetizam, e só com luz. Os dois processos rodam ao mesmo tempo, na mesma célula, em organelas diferentes, e o CO₂ que a mitocôndria solta pode ser fixado pelo cloroplasto ao lado sem nunca sair da folha. O que se mede por fora é o saldo. De dia, em geral, a fotossíntese supera a respiração várias vezes, e a folha absorve CO₂ e libera O₂; de noite, só a respiração continua, e os sentidos se invertem.
Como as duas equações são inversas, a proporção entre os gases é a mesma nos dois sentidos: 6 O₂ para 6 CO₂. Se a planta libera ao longo do dia mais O₂ do que consome, é porque fotossintetiza mais do que respira, uma diferença de quantidade, não de estequiometria. O PAS 1 de 2018 cobrou exatamente isso, numa figura de folha com “fotossíntese (dia)” em cima e “respiração (dia e noite)” embaixo e num texto sobre uma árvore adulta que absorve cerca de 25 kg de CO₂ por ano. O item 65 disse que a planta produz parte do próprio alimento por fotossíntese de dia e o consome na respiração de dia e de noite: certo. O item 66 explicou o balanço positivo de O₂ por uma suposta diferença de proporção entre as equações: errado. O PAS 2 de 2010 (item 34) disse que os dois processos ocorrem “ao mesmo tempo e no mesmo local, na célula vegetal”: errado pelo “mesmo local”. O PAS 2 de 2013 (item 32) disse que a luz aumenta a liberação de CO₂ pelas folhas porque o CO₂ “é produzido na fotossíntese e na respiração celular”: errado, a fotossíntese consome CO₂. E o PAS 1 de 2020 (item 44) afirmou que “a retirada de gás carbônico (CO₂) da atmosfera é feita por meio da respiração”: errado, quem retira CO₂ do ar é a fotossíntese; a respiração o devolve.
Quadro de bolso: fotossíntese × respiração aeróbia
Onde: cloroplasto (tilacoides e estroma) × mitocôndria (matriz e cristas). Quando: só com luz × sempre. Quem: células com cloroplastos de plantas, algas e cianobactérias (sem organela) × toda célula viva, planta inclusive. Entra: CO₂, H₂O, luz × glicose, O₂. Sai: glicose, O₂ (da água) × CO₂, H₂O. Energia: luz convertida em energia química (consome energia) × energia química convertida em ATP e calor (libera energia). Transportador de elétrons: NADPH × NADH. Fonte de elétrons: água (fotólise) × glicose. Aceptor final de elétrons: NADP⁺ × O₂. Quimiosmose: prótons no lúmen do tilacoide × prótons no espaço entre as membranas da mitocôndria; a ATP-sintase é a mesma máquina nos dois.
A planta devolve ao ar, pela própria respiração, uma fração grande do que fixa, perto de metade em muitas espécies; o que sobra é a produtividade primária líquida, a matéria que vira caule, raiz, fruto e que alimenta quem come a planta. O balanço de 24 horas, o ponto de compensação e as plantas de sol e de sombra estão em fisiologia vegetal; a cadeia respiratória e o motivo de a planta no quarto não roubar o seu oxigênio, em respiração celular.
Quem fotossintetiza, e quem produz sem luz
Se a sua lista de produtores tem só plantas, ela deixou de fora a linhagem em que o processo surgiu. A fotossíntese que libera O₂ nasceu em cianobactérias, procariontes sem cloroplasto, com a clorofila espalhada em membranas internas da própria célula, há mais de 2,4 bilhões de anos; foi o oxigênio delas que, acumulando-se, produziu a Grande Oxidação, contada em origem da vida. O cloroplasto das plantas e das algas é uma cianobactéria domesticada. Por isso o PAS 1 de 2018 (item 64) foi errado ao afirmar que a fotossíntese “ocorre nas plantas e em bactérias fotossintetizantes, mas não em cianobactérias”: negar a fotossíntese às cianobactérias é negar a origem do processo. Elas continuam por aí: a Spirulina vendida como suplemento é uma, e as florações verdes de lagos poluídos por esgoto também.
Algas, unicelulares ou multicelulares (as macroalgas marinhas), fotossintetizam com cloroplastos e são produtoras; fungos nunca fotossintetizam, são heterótrofos que digerem matéria orgânica, e por isso não são “plantas sem clorofila”. O fitoplâncton, algas unicelulares como as diatomáceas e cianobactérias que flutuam na camada iluminada dos oceanos e lagos, é o segundo grupo esquecido. Individualmente invisíveis, somadas essas células respondem por quase metade da produção primária do planeta: a estimativa clássica de Christopher Field e colaboradores, publicada na Science em 1998 a partir de dados de satélite, atribuiu aos oceanos cerca de 48,5 dos 104,9 bilhões de toneladas de carbono fixadas por ano como produção primária líquida, 46 %, com contribuições quase iguais de terra e mar. Uma biomassa pequena produz tanto porque uma célula de fitoplâncton vive dias e se renova muitas vezes por ano, enquanto uma árvore vive décadas.
Há ainda fotossíntese sem oxigênio. Bactérias púrpuras e verdes usam H₂S, hidrogênio ou compostos orgânicos como fonte de elétrons, em vez de água, e por isso não liberam O₂: é a fotossíntese anoxigênica, a forma mais antiga do processo e a que van Niel usou para prever de onde vinha o oxigênio das plantas. O PAS 2 de 2011 (item 30) apresentou a equação nCO2+2nH2S→(CH2O)n+2nS+nH2O como a do açúcar produzido nas folhas: errado, é a equação das sulfobactérias; a folha usa água e libera O₂. Uma questão recente do ENEM fez a pergunta pelo outro lado: descreveu a fotossíntese anoxigênica com CO₂ e H₂S e perguntou qual composto, na fotossíntese oxigênica, tem função análoga à do H₂S. A resposta é a água, o doador de elétrons.
Quimiossíntese: fixar carbono no escuro. Bactérias e arqueias quimiossintetizantes obtêm energia oxidando substâncias inorgânicas, como gás sulfídrico, amônia, íons de ferro e hidrogênio, e usam essa energia para fixar CO₂ em matéria orgânica, em geral pelo mesmo ciclo de Calvin. Não é “fotossíntese sem luz”: é outra fonte de energia para a mesma fixação de carbono. As bactérias nitrificantes do solo oxidam amônia a nitrito e nitrato, a forma que as raízes absorvem, uma etapa do ciclo do nitrogênio descrita em ciclos biogeoquímicos. Nas fontes hidrotermais do fundo do mar, a água quente rica em H₂S sustenta bactérias que fixam carbono e, sobre elas, vermes tubulares, caranguejos e mexilhões: um ecossistema inteiro sem um fóton, e uma das hipóteses para o cenário da origem da vida.
Da folha ao planeta: oxigênio, produção primária e a curva de Keeling
Multiplique a folha por todas as folhas, algas e cianobactérias da Terra. Uma estimativa baseada em medições de torres de fluxo e modelos, publicada por Christian Beer e colaboradores na Science em 2010, calculou a fotossíntese bruta da vegetação terrestre em cerca de 123 bilhões de toneladas de carbono por ano, com florestas tropicais e savanas respondendo por 60 % disso. É o maior fluxo de CO₂ do planeta, e a fotossíntese é, ao lado da dissolução do gás nos oceanos, o processo que retira CO₂ do ar em escala comparável à das emissões. Quase todo esse carbono volta ao ar em meses ou anos, pela respiração das próprias plantas, dos animais e dos decompositores; o que fica retido é a parte que vira madeira, solo e sedimento.
O oxigênio do ar, 21 %, é um estoque acumulado ao longo de bilhões de anos, e a produção anual é uma fração minúscula dele. Por isso a frase “a Amazônia é o pulmão do mundo” erra duas vezes: pulmão não produz oxigênio, e uma floresta madura respira quase tudo o que fotossintetiza, com saldo de O₂ perto de zero; e a frase “metade do oxigênio que respiramos vem do mar” confunde produção com estoque. Se a fotossíntese parasse amanhã, o O₂ do ar levaria séculos a milênios para cair de forma perceptível; a comida acabaria antes.
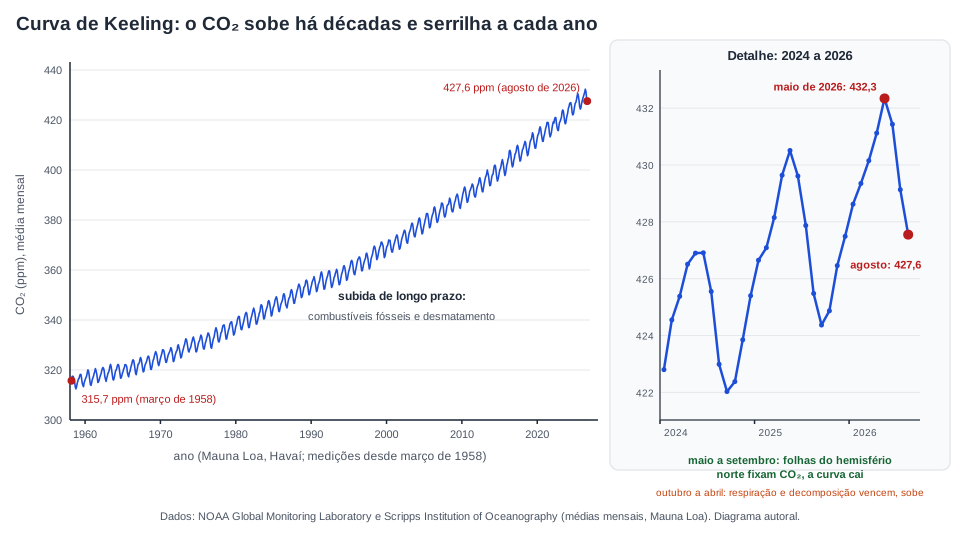
O CO₂, ao contrário, é um estoque pequeno, 0,04 %, e sobre ele o mesmo fluxo anual fica visível. É o que mostra a curva de Keeling. Em março de 1958, Charles David Keeling, da Scripps Institution of Oceanography, começou a medir o CO₂ no observatório de Mauna Loa, no Havaí, a 3 400 m de altitude, longe de fontes locais; a série continua até hoje, mantida também pela agência americana NOAA, e é o registro direto mais longo da composição da atmosfera. Dois padrões saltam da curva. O primeiro é a subida: de cerca de 315 ppm em 1958 para médias mensais acima de 430 ppm em 2026. O segundo é o serrilhado anual: a cada ano a concentração cai de maio a setembro e sobe de outubro a abril. É a respiração do hemisfério norte, que tem muito mais terra firme e floresta do que o sul: no verão boreal as folhas fixam CO₂ mais depressa do que o planeta respira, e a concentração cai; no inverno, com as folhas caídas, a respiração e a decomposição vencem, e ela sobe. Em 2026, a média mensal de Mauna Loa passou de 432,3 ppm em maio para 427,6 ppm em agosto, uma oscilação de quase 5 ppm, produzida pela fotossíntese de um hemisfério.
A curva de Keeling, com os dados mensais de Mauna Loa (NOAA GML e Scripps). A subida de longo prazo é a queima de combustíveis fósseis e o desmatamento; o serrilhado é a fotossíntese do hemisfério norte, que puxa o CO₂ para baixo a cada verão e o devolve a cada inverno. Diagrama autoral a partir de dados públicos.
Fotossíntese no tanque: biocombustíveis
Tudo o que queima na Terra é, com raríssimas exceções, fotossíntese acumulada. A diferença entre um combustível fóssil e um biocombustível é o tempo: o petróleo é matéria orgânica de fitoplâncton fixada há dezenas a centenas de milhões de anos; a lenha, há décadas; o etanol da cana, na safra passada. Biomassa é a matéria orgânica recente usada como fonte de energia. O etanol brasileiro é o exemplo completo: a cana, planta C₄ de alta produtividade, fixa CO₂ do ar e acumula sacarose no colmo; na usina, leveduras fermentam o caldo a etanol e CO₂, sem oxigênio, e a destilação concentra o álcool; o bagaço é queimado nas caldeiras e gera eletricidade. Na safra 2024/25, as usinas do Centro-Sul produziram 34,96 bilhões de litros de etanol, segundo a União da Indústria de Cana-de-Açúcar e Bioenergia (UNICA). O processo biológico da dorna está em fermentação; aqui importa a origem: cada litro de etanol carrega energia de fótons que bateram num canavial cerca de um ano antes.
Ao queimar, o etanol devolve ao ar o CO₂ que a cana fixou; se o ciclo fosse só esse, o saldo seria zero. O ciclo real inclui o diesel das máquinas, o fertilizante, a queima de palha onde ainda existe e a mudança no uso da terra, de modo que o etanol reduz muito as emissões em relação à gasolina, mas não as zera. O PAS 2 de 2008 (item 73) afirmou, com cuidado, que “uma das vantagens do emprego da biomassa como fonte de energia é o fato de que as plantas cultivadas para a reposição do estoque de biomassa absorvem parte do CO₂ liberado na queima”: certo, pelo “parte” e pelo “uma das vantagens”. A fotossíntese artificial, em uma frase: dispositivos que usam luz para quebrar a água e produzir hidrogênio ou reduzir CO₂ a combustíveis, imitando a etapa fotoquímica, ainda em escala de laboratório e de plantas-piloto.
Como ler gráficos e esquemas de fotossíntese
Quatro figuras resolvem a maioria dos itens. Espectro de absorção: eixo horizontal em nanômetros, 400 a 700; os picos da clorofila ficam no azul-violeta e no vermelho; o vale no verde é a cor da folha; se o gráfico tiver várias curvas, a que tem picos deslocados para o meio é a clorofila b, e a que só absorve no azul é dos carotenoides. Espectro de ação: mesmo eixo, mas a grandeza é taxa de fotossíntese; o formato acompanha o da absorção. Curva de luz: trecho reto (a luz limita), patamar (saturação; CO₂ ou temperatura limitam), queda (inibição); se houver duas curvas com CO₂ diferente, a de mais CO₂ tem patamar mais alto; se o eixo vertical for troca líquida de CO₂, a curva começa negativa (respiração) e cruza o zero no ponto de compensação. Esquema do cloroplasto: localize as palavras; luz, água, O₂, ATP e NADPH apontam para os tilacoides; CO₂, RuBisCO e açúcar apontam para o estroma; as setas entre os dois compartimentos levam ATP e NADPH num sentido e ADP, fosfato e NADP⁺ no outro.
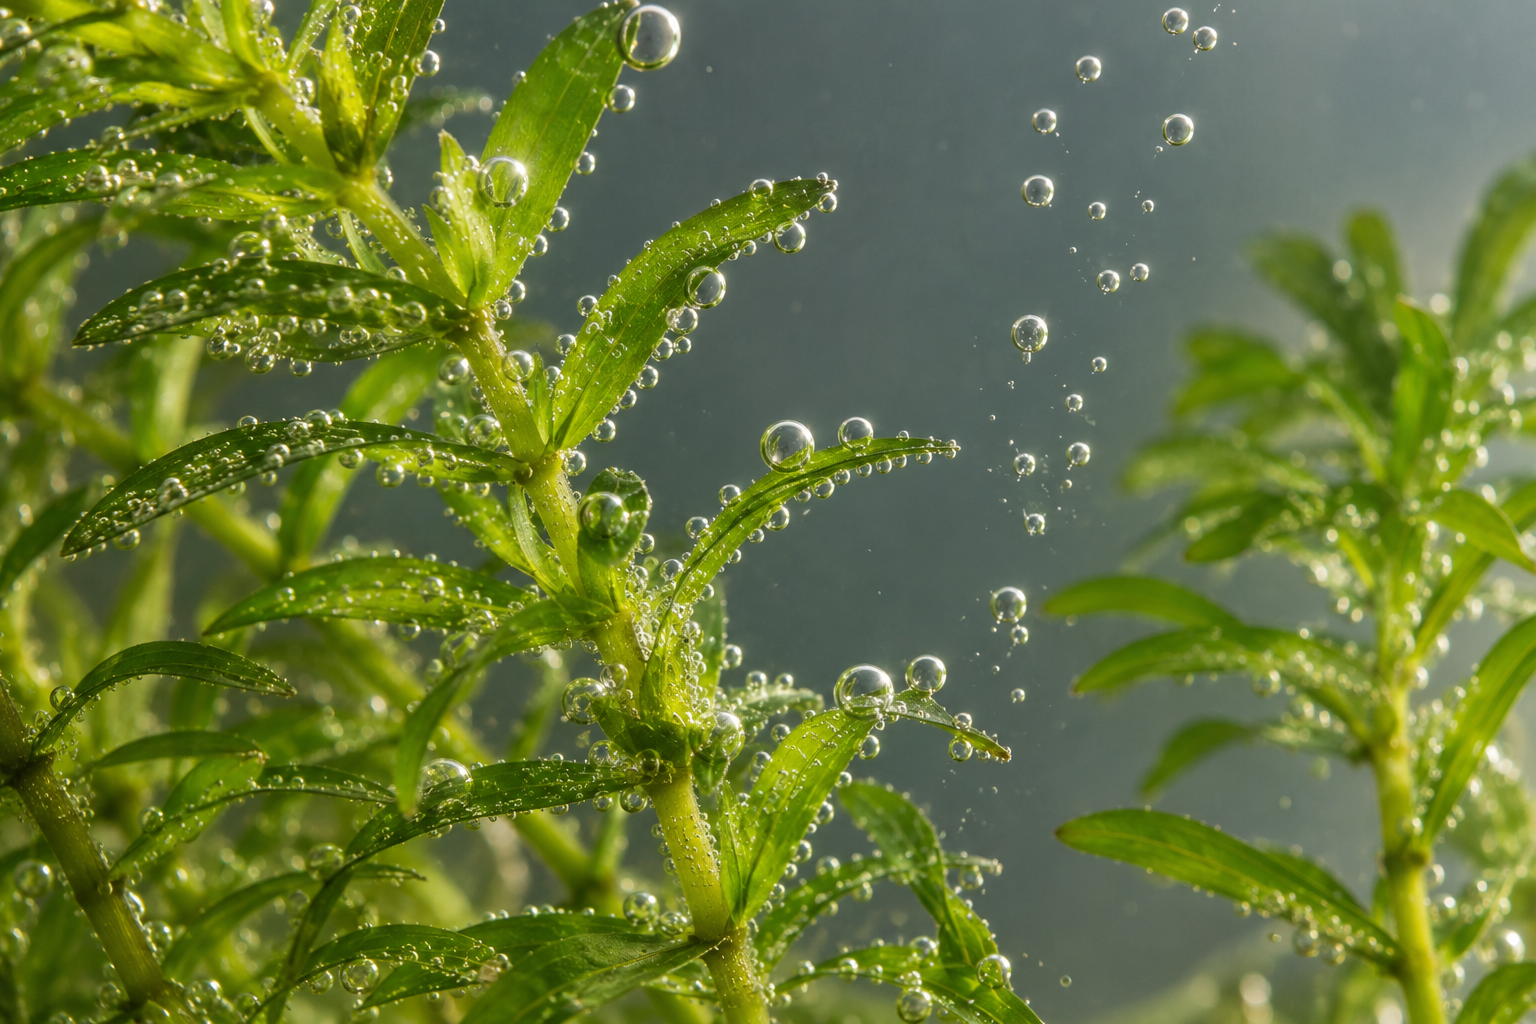
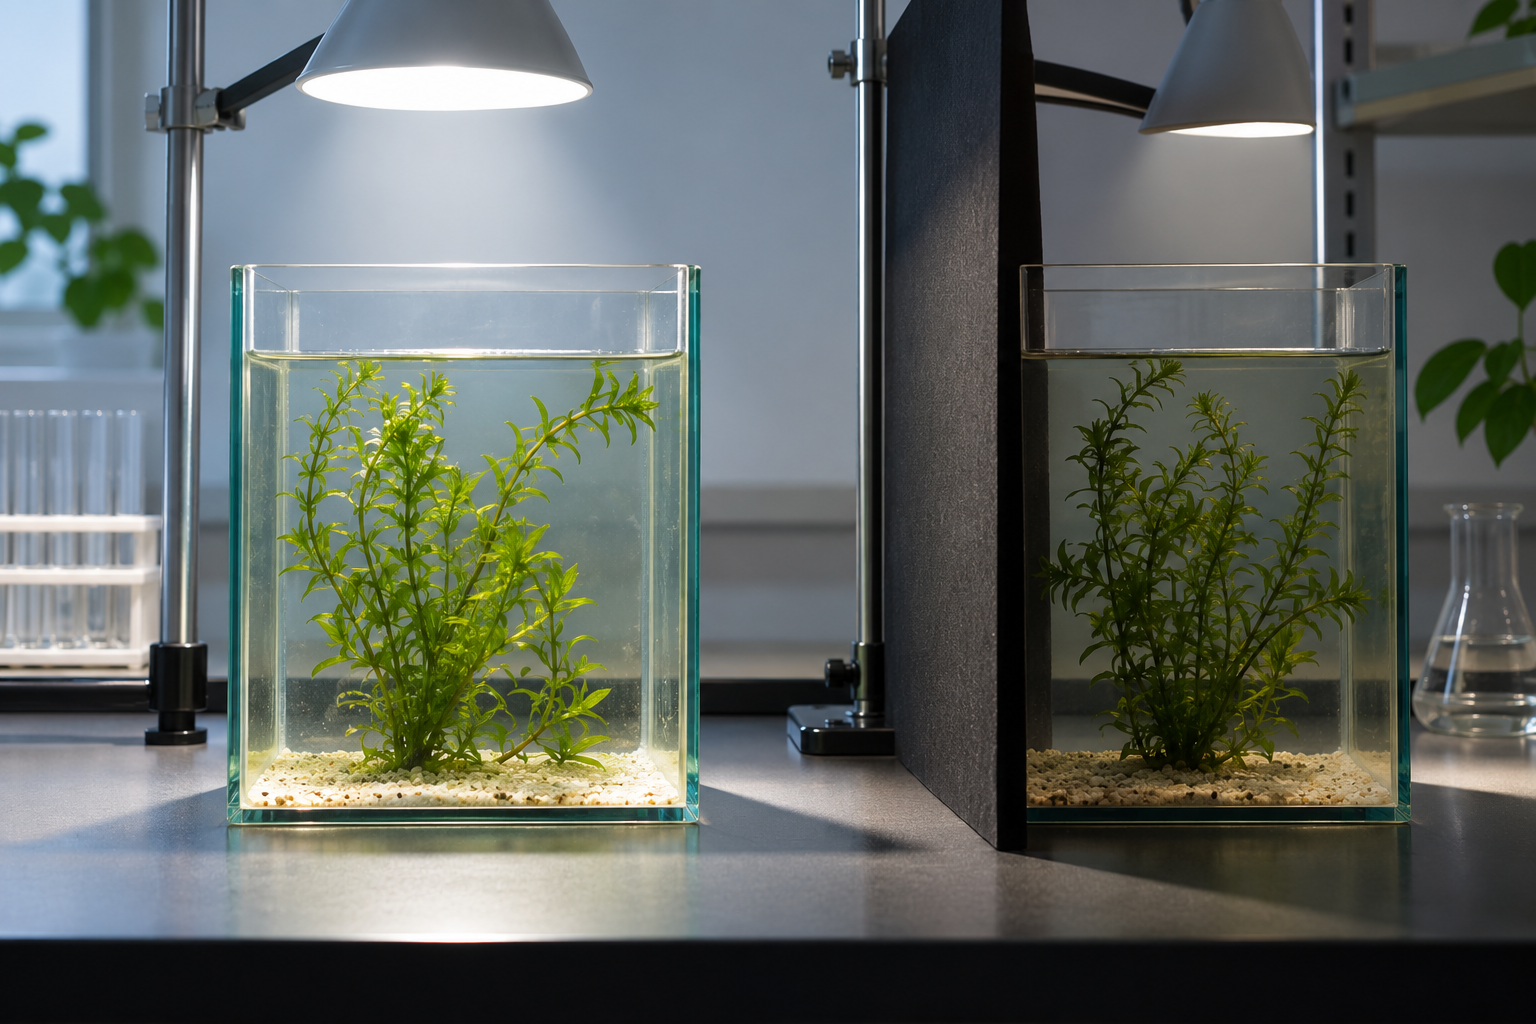
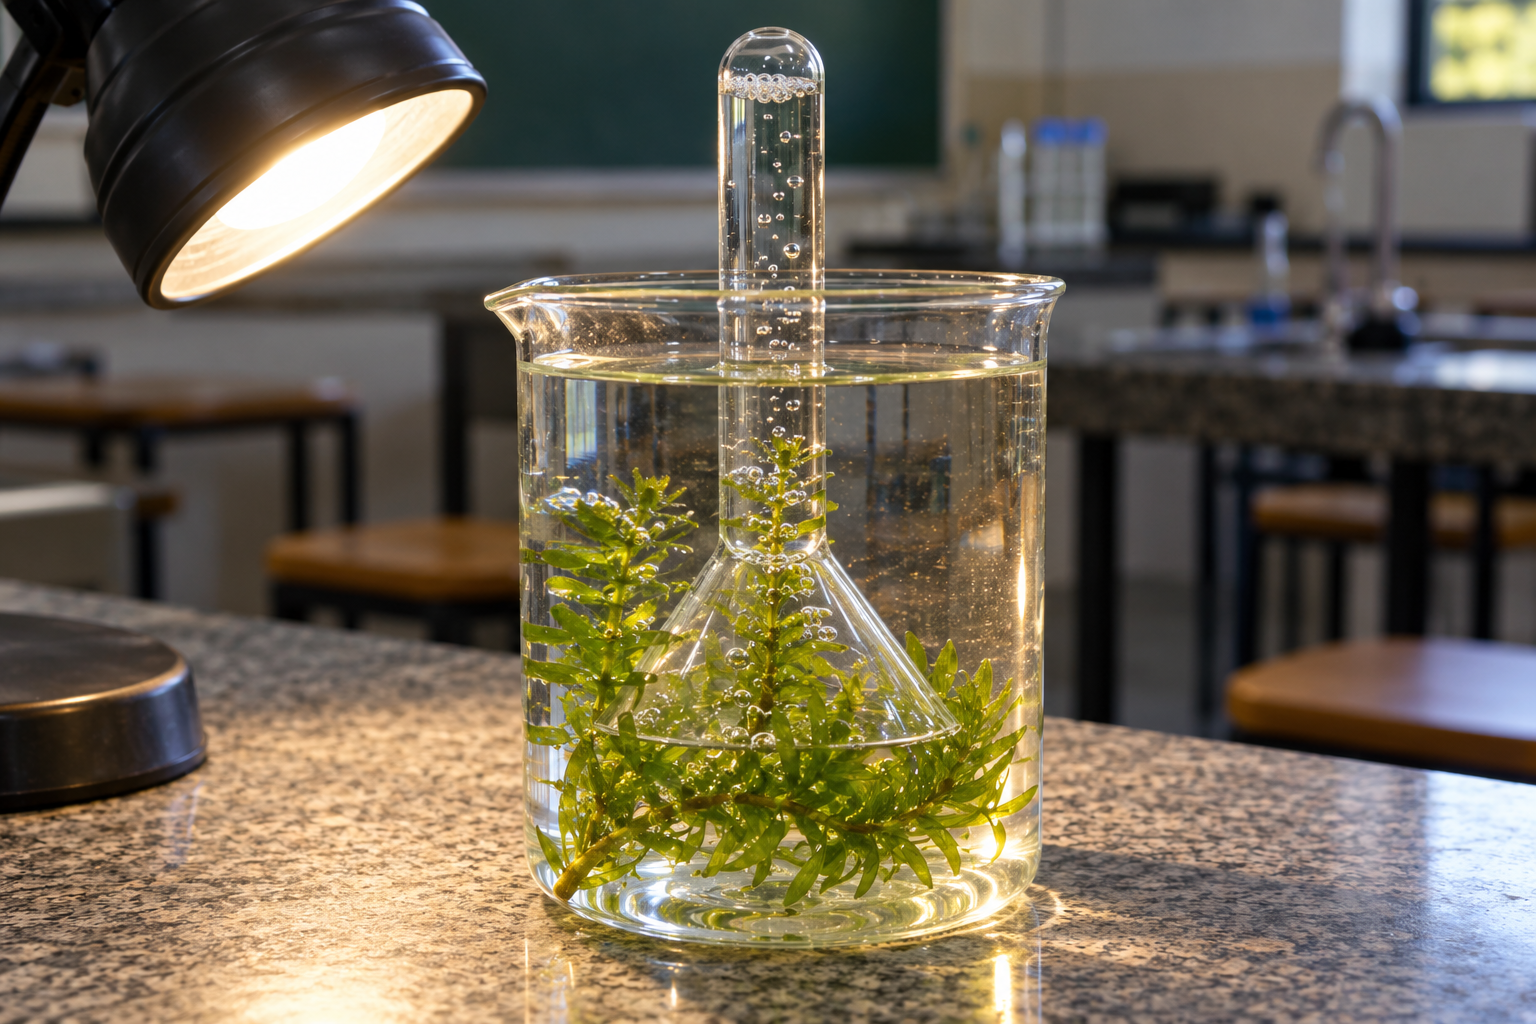
Elódea e bolhas. O experimento acima. Variáveis a controlar: temperatura (a lâmpada aquece a água; use um anteparo de água ou LED), CO₂ (bicarbonato), o mesmo ramo. Erro comum: concluir que no escuro “a planta não faz nada” porque não há bolhas; ela respira, e o O₂ consumido não aparece como bolha.
Água de cal e azul de bromotimol. A água de cal fica turva com CO₂ (forma carbonato de cálcio); o azul de bromotimol fica amarelo com muito CO₂, verde com pouco e azul com quase nenhum. Três tubos com indicador e um pouco de CO₂ soprado: elódea na luz fica azul (consumiu CO₂; saldo da fotossíntese sobre a respiração); elódea no escuro fica amarela (só respirou); tubo sem planta não muda (controle). O tubo no escuro é a prova de que a planta respira; o tubo na luz mostra o saldo, não a ausência de respiração.
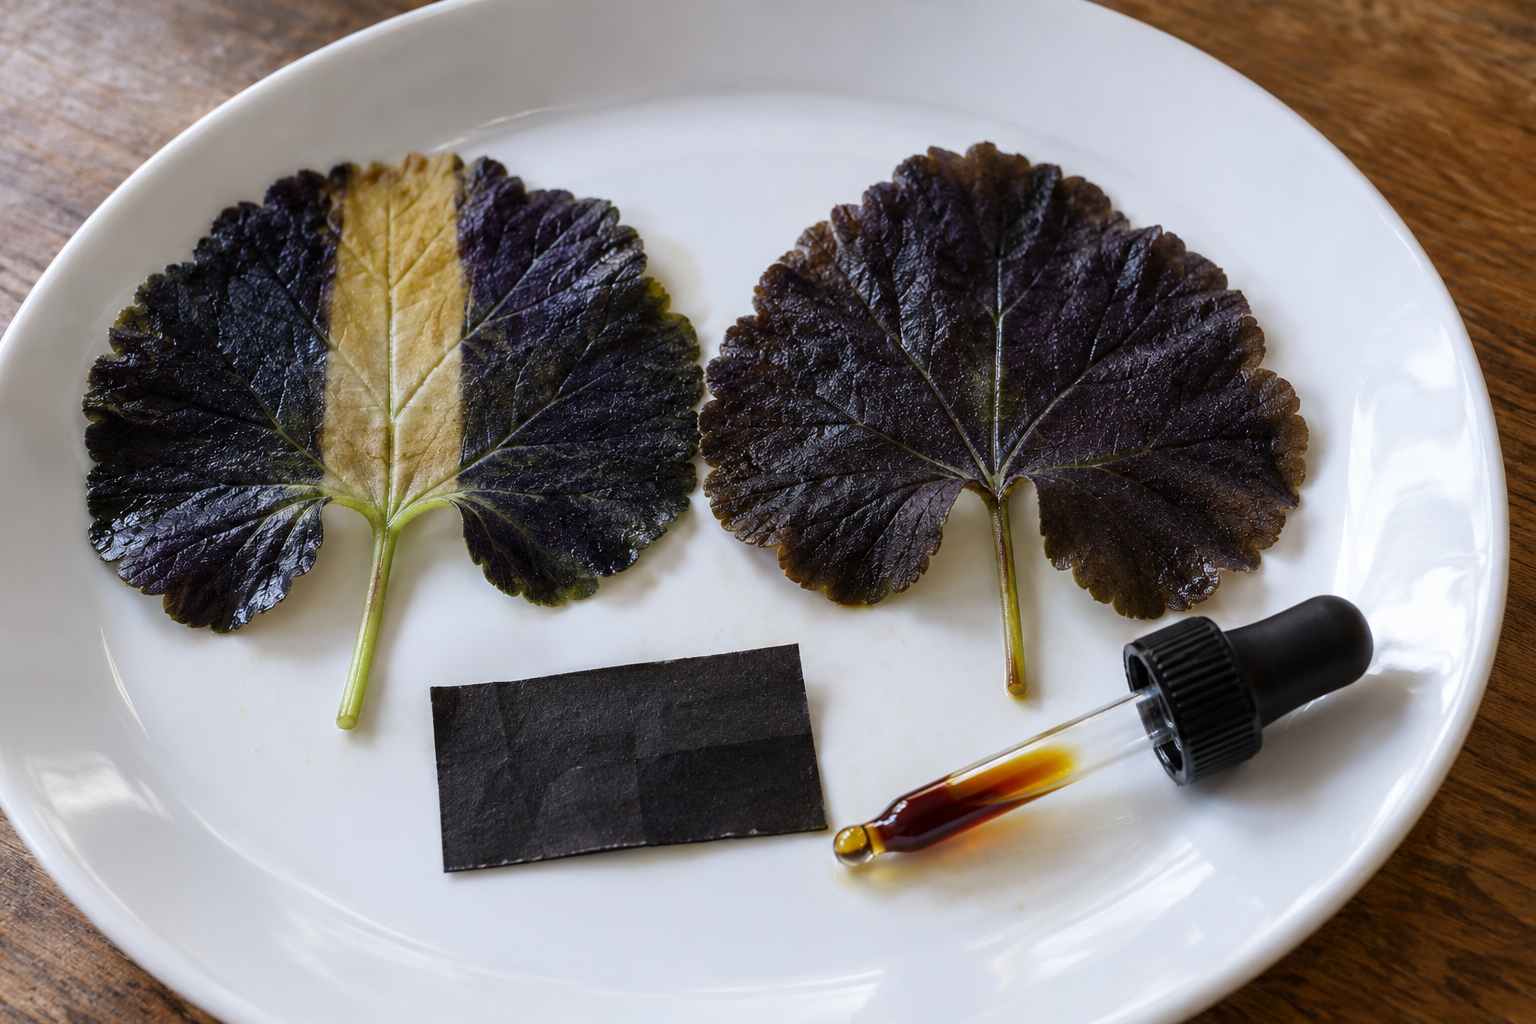
Folha com papel preto e iodo (o experimento de Sachs). Deixe uma planta no escuro por 48 horas para esvaziar o amido; cubra parte de uma folha com papel preto nos dois lados; exponha à luz por algumas horas; ferva a folha em água, depois em álcool para retirar a clorofila, e pingue iodo. A parte iluminada fica roxo-escura (amido); a parte coberta fica cor de iodo (sem amido). Conclusões permitidas: o amido se forma só onde houve luz. Conclusão não permitida: que a parte coberta “não fez nada”, pois ela respirou e recebeu açúcar da parte iluminada pelo floema, só que em quantidade insuficiente para acumular amido. Uma folha variegada, com partes brancas sem clorofila, acrescenta a segunda variável: só as partes verdes e iluminadas ficam roxas.
Exemplo resolvido: a árvore do caderno. O texto do PAS 1 de 2018 dizia que uma árvore adulta absorve cerca de 25 kg de CO₂ por ano. Quanto carbono isso representa, e quanta glicose a árvore poderia fabricar com ele? Carbono: 25×12/44≈6,8 kg. Glicose: 25 kg de CO₂ são 25000/44≈568 mol; a cada 6 mol de CO₂ corresponde 1 mol de glicose, logo 568/6≈95 mol, ou 95×180≈17 kg de glicose. Conferência: os 6,8 kg de carbono correspondem a 40 % da massa da glicose (72 de 180), e 17×0,4≈6,8. Fecha. Essa glicose não fica como glicose: vira celulose, amido e, em grande parte, é respirada pela própria árvore.
Doze erros clássicos, e quais a prova já usou
“O O₂ liberado vem do CO₂.” Vem da água, pela fotólise (Ruben e Kamen, 1941; equação completa, PAS 3 2023, item 117).
“A planta fotossintetiza de dia e respira à noite.” Respira sempre; fotossintetiza quando há luz (PAS 1 2018, item 65, certo ao dizer “durante o dia e durante a noite”).
“A planta não respira.” Toda célula viva da planta respira, nas mitocôndrias (PAS 2 2013, item 32).
“A fase escura ocorre à noite.” Depende do ATP e do NADPH da luz; para em minutos no escuro.
“A clorofila absorve a luz verde.” Absorve azul e vermelho e devolve o verde, por isso a folha é verde.
“A glicose é feita na etapa fotoquímica.” A etapa fotoquímica produz ATP, NADPH e O₂; a glicose é montada no estroma, no ciclo de Calvin.
“O ATP da fotossíntese abastece a célula toda.” É consumido no próprio cloroplasto; a célula vegetal vive do ATP da respiração.
“A planta tira o alimento do solo.” Do solo vêm água e minerais; a matéria orgânica vem do CO₂ do ar e do hidrogênio da água (van Helmont, de Saussure).
“Cloroplasto só existe em folhas.” Caules verdes, frutos verdes e até raízes expostas à luz têm cloroplastos; e a fotossíntese em cianobactérias nem precisa de cloroplasto (PAS 1 2018, item 64).
“Algas não fotossintetizam; fungos fotossintetizam.” Algas são produtoras; fungos são heterótrofos.
“C₄ e CAM são fotossínteses diferentes.” Mesmo ciclo de Calvin; a diferença é a pré-fixação do CO₂ pela PEP carboxilase, em outra célula ou em outra hora (PAS 2 2013, item 31; 2007, itens 50 e 52).
“A fotossíntese ocorre nas cristas mitocondriais” ou “na mitocôndria”. Cloroplasto, tilacoides e estroma (PAS 1 2025, item 83; PAS 2 2010, item 34).
Como a prova cobra a fotossíntese
Nos itens reais reproduzidos nesta página, a banca pediu quatro coisas. A equação e a origem dos átomos: a forma completa com 12 águas foi dada como correta (PAS 3 2023, item 117), e a equação com H₂S foi dada como errada para a folha (PAS 2 2011, item 30). O endereço: fotossistemas nos cloroplastos (PAS 3 2011, item 103, certo), tilacoides como bolsas membranosas (PAS 3 2023, item 116, certo), cristas mitocondriais (PAS 1 2025, item 83, errado), “mesmo local” para fotossíntese e respiração (PAS 2 2010, item 34, errado). A curva de luz: saturação e inibição, cada uma definida corretamente (PAS 3 2011, itens 100 e 101, ambos certos). O balanço com a respiração: a planta respira de dia e de noite (PAS 1 2018, item 65, certo), a proporção dos gases é a mesma nas duas equações (item 66, errado), a luz não aumenta a liberação de CO₂ (PAS 2 2013, item 32, errado), a respiração não retira CO₂ do ar (PAS 1 2020, item 44, errado). Completam o conjunto os pigmentos do outono (PAS 2 2011, item 27, errado), as cianobactérias (PAS 1 2018, item 64, errado), as vias CAM e C₄ (PAS 2 2013, item 31, e 2007, itens 50 e 52) e a biomassa como combustível (PAS 2 2008, item 73, certo). O padrão dominante é o substantivo trocado: um item verdadeiro pela metade com uma palavra técnica errada na carona. Antídoto: localize o substantivo que carrega o mecanismo (água, tilacoide, estroma, cloroplasto, saturação, CO₂) e pergunte se é este mesmo.
O essencial em meia página
Fotossíntese converte energia luminosa em energia química e fixa CO₂ em matéria orgânica. Equação completa: 6 CO₂ + 12 H₂O → C₆H₁₂O₆ + 6 O₂ + 6 H₂O. O O₂ vem da água (van Niel, 1931; Ruben e colaboradores, 1941, com ¹⁸O); o carbono vai para a glicose; o oxigênio do CO₂ vai para a glicose e a água nova. 264 g de CO₂ para 180 g de glicose.
História em uma linha: van Helmont (não é o solo), Priestley 1771–1772 (a planta restaura o ar), Ingenhousz 1779 (só à luz, só partes verdes), Senebier 1782 (CO₂), de Saussure 1804 (água e massa), Sachs anos 1860 (amido), Engelmann 1882 (espectro de ação), Blackman 1905 (fator limitante), Hill 1937 (etapas separáveis), Calvin anos 1950 (Nobel 1961), Mitchell 1961 (Nobel 1978).
Cloroplasto: envelope duplo, DNA próprio; tilacoides (grana) com clorofila, fotossistemas, cadeia e ATP-sintase; estroma com RuBisCO e ciclo de Calvin.
Pigmentos: clorofila a absorve em ~430 e ~660 nm e devolve o verde; clorofila b e carotenoides alargam a faixa. Espectro de absorção (pigmento) × espectro de ação (processo): mesmo formato. Outono: carotenoides revelados, não produzidos.
Etapa fotoquímica (tilacoides): fotossistema II, fotólise da água (2 H₂O → O₂ + 4 H⁺ + 4 e⁻), cadeia que bombeia H⁺ para o lúmen, fotossistema I, NADPH; ATP por quimiosmose. Produtos: ATP, NADPH, O₂. Sem carbono. Fluxo cíclico: só ATP.
Ciclo de Calvin (estroma): fixação pela RuBisCO (CO₂ + RuBP → 2 × 3-fosfoglicerato), redução (ATP + NADPH → G3P), regeneração (ATP). 3 voltas = 1 G3P; 6 CO₂ = 1 glicose; 18 ATP + 12 NADPH por glicose (3 ATP + 2 NADPH por CO₂). RuBisCO: lenta, ~0,7 Gt no planeta.
“Fase escura” não ocorre à noite: depende dos produtos da luz; as duas etapas rodam juntas, à luz.
Fotorrespiração: a RuBisCO prende O₂ e a planta perde carbono no calor. C₄ (cana, milho): PEP carboxilase no mesofilo, RuBisCO na bainha (espaço). CAM (cactos, abacaxi): PEP carboxilase à noite, Calvin de dia (tempo). Mesmo ciclo nas três.
Fatores: luz (reta, saturação, inibição: saturar é parar de subir, inibir é começar a cair), CO₂ (0,04 % do ar; eleva o patamar), temperatura (ótimo e desnaturação), água (fecha estômatos). Regra de Blackman: manda o fator mais escasso.
Fotossíntese × respiração: inversas, mesma proporção de gases (6:6), organelas diferentes, respiração sempre, fotossíntese só à luz; saldo positivo = quantidade, não estequiometria.
Quem: plantas, algas, cianobactérias (origem do processo, 2,4 bilhões de anos); fitoplâncton ≈ metade da produção primária (Field et al., 1998); bactérias anoxigênicas (H₂S, sem O₂); quimiossíntese (nitrificantes, fontes hidrotermais) fixa carbono sem luz.
Planeta: fotossíntese terrestre bruta ≈ 123 Gt C/ano (Beer et al., 2010); O₂ é estoque, CO₂ é fluxo visível; curva de Keeling desde 1958, de 315 para mais de 430 ppm, com serrilhado anual de ~5 ppm feito pelas folhas do hemisfério norte.
Biocombustíveis: etanol = fotossíntese da cana + fermentação; 34,96 bilhões de litros no Centro-Sul em 2024/25 (UNICA); ciclo curto de carbono, redução grande, não zero.
Experimentos: elódea e bolhas (O₂; saturação), bromotimol (saldo × respiração), folha com papel preto e iodo (amido só com luz e clorofila), Engelmann (espectro de ação).
Exercícios temporariamente indisponíveis
Não foi possível consultar o banco de questões. O conteúdo da aula continua disponível.
Flashcards temporariamente indisponíveis
Não foi possível consultar os cartões de revisão.
Fotossíntese - Biologia - Ensino Médio
Canal Futura · 11:35
Introdução. Aula do Canal Futura para o ensino médio, de pouco mais de onze minutos, que apresenta a fotossíntese como o processo em que seres autótrofos produzem matéria orgânica com a energia da luz. Cobre o que as seções “A equação esconde de onde vem cada átomo” e “O cloroplasto é uma fábrica com dois endereços” explicam; assista antes de ler e anote onde o vídeo coloca a origem do O₂ e os produtos de cada etapa.
Bioquímica - Aula 23 - Fotossíntese 1
UNIVESP · 21:19
Aprofundamento. Primeira das duas aulas sobre fotossíntese da disciplina Bioquímica da licenciatura em Ciências Biológicas da Univesp (professor responsável Angelo Luiz Cortelazzo), em nível universitário introdutório. Trata da estrutura do cloroplasto, dos pigmentos e da etapa fotoquímica, com fotossistemas, cadeia transportadora e formação de ATP e NADPH. Assista depois das seções “Por que a folha é verde” e “Etapa fotoquímica” e compare a nomenclatura.
Fatores da fotossíntese - Biologia - Ensino Médio
Canal Futura · 8:59
Aplicação. Aula curta do Canal Futura sobre os três fatores que regulam a taxa de fotossíntese, concentração de CO₂, intensidade luminosa e temperatura. É o conteúdo da seção “O que limita a taxa” e das curvas de fatores limitantes; use para fixar a diferença entre saturação e inibição luminosa, cobrada no PAS 3 de 2011, e a regra de que o fator mais escasso dita a velocidade.
Resumão do Vitão - Botânica - Fotossíntese - Parte 1 - Conteúdo + 8 Exercícios ENEM UFF UNESP
QUIBIO com Vitor Considera · 43:15
Resolução de questões. Depois de um resumo do cloroplasto e das equações, o professor resolve oito questões de vestibular e ENEM sobre fotossíntese, com minutagem na descrição (questões 1 a 4 aos 5 min 50 s; fases da fotossíntese aos 15 min 28 s; questões 5 a 8 a partir de 28 min 41 s). Use depois de ler a página inteira: pause em cada enunciado, resolva com o quadro de bolso da seção “Fotossíntese e respiração” e só então compare.
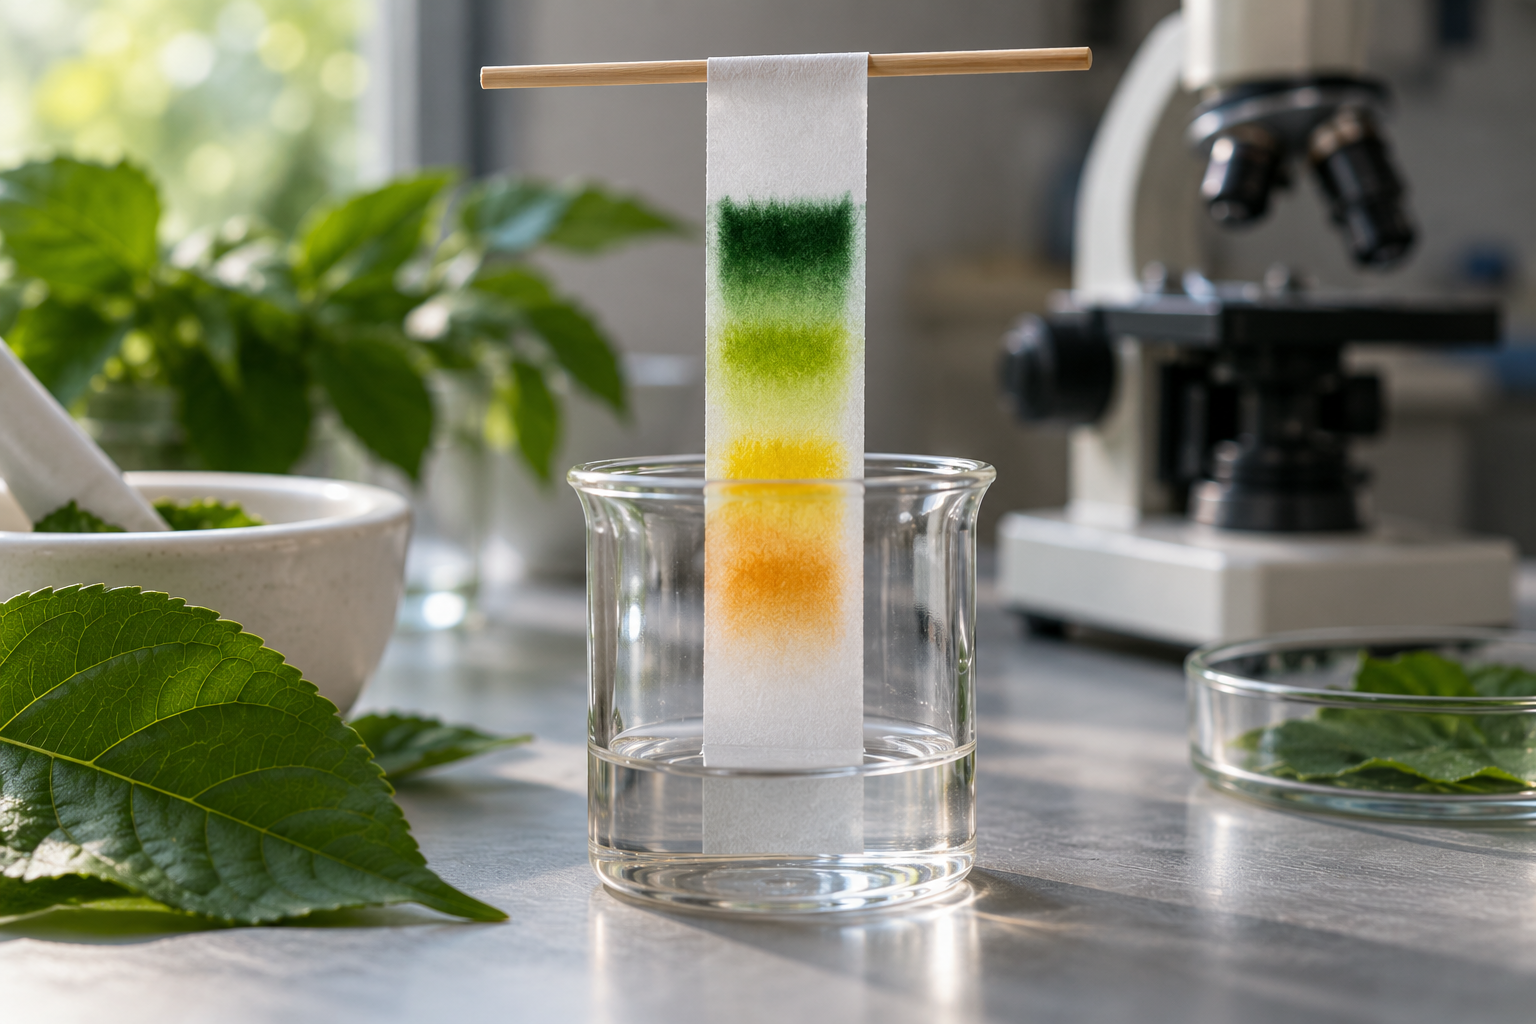
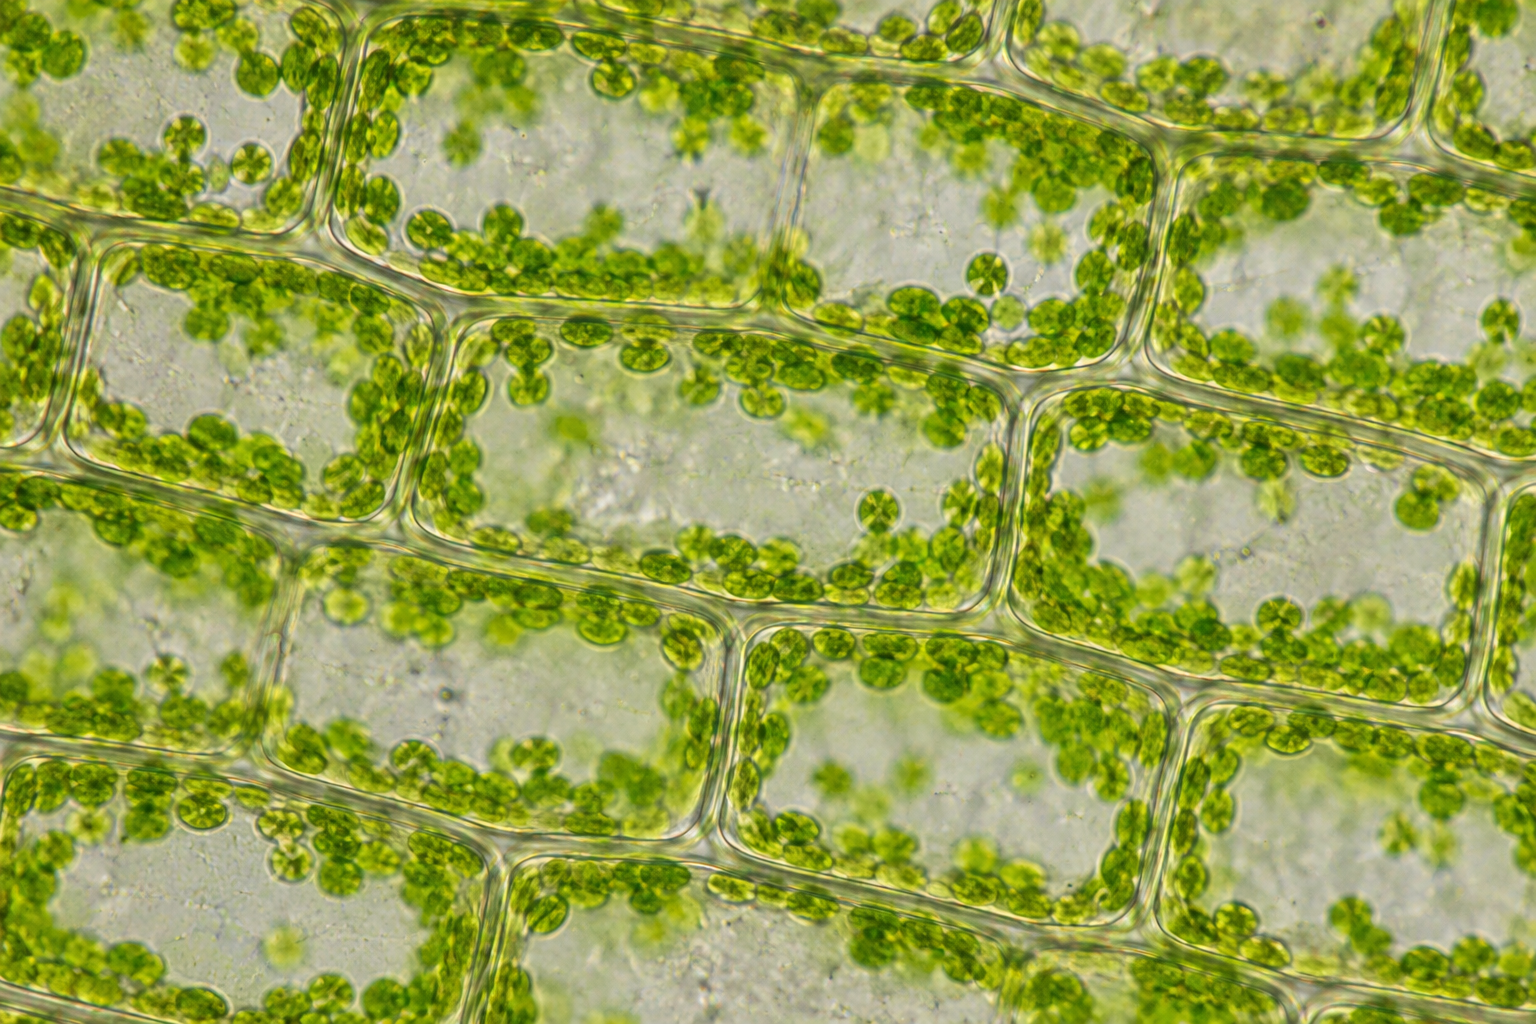
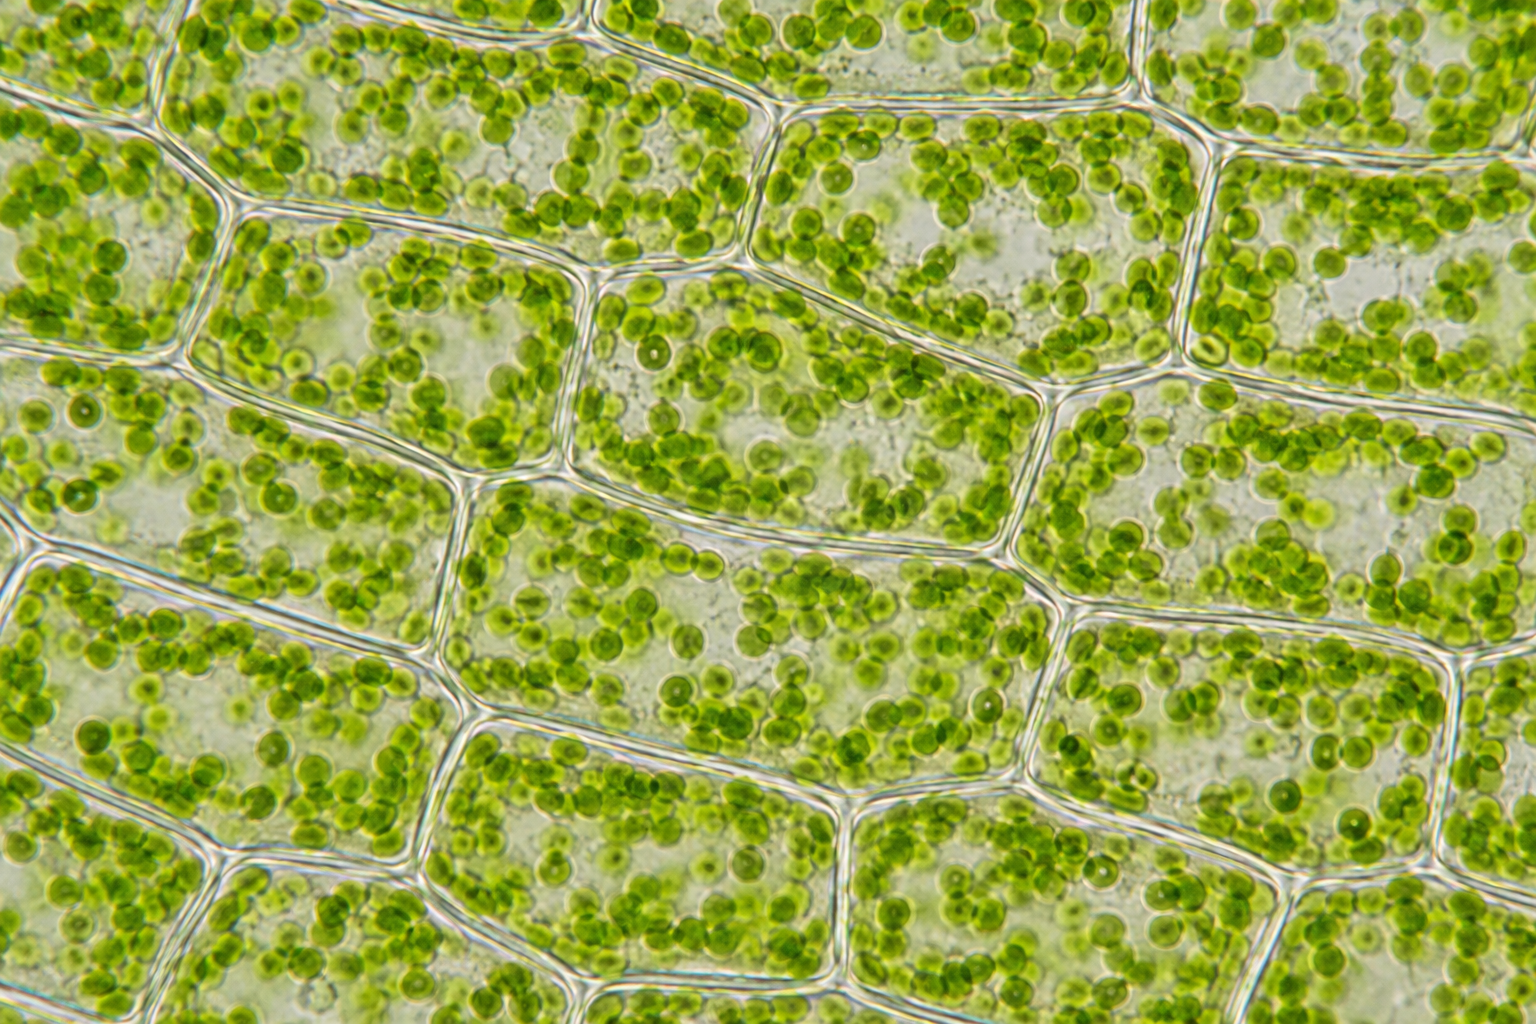
Plantas aquáticas permitem observar liberação de gás em determinadas condições. A identificação do gás e a medição da taxa exigem controle experimental.A equação completa mostra o destino de cada átomo: o O₂ vem da água (fotólise, nos tilacoides), o carbono do CO₂ vai para a glicose, e o oxigênio do CO₂ acaba na glicose e nas águas novas. A massa também fecha: 264 + 216 = 180 + 192 + 108 gramas por mol de glicose. A forma simplificada fecha o balanço, mas esconde a origem do oxigênio. Diagrama autoral.Dois endereços no mesmo cloroplasto. Nos tilacoides, a luz quebra a água, libera O₂ e carrega ATP e NADPH; no estroma, ATP e NADPH pagam a fixação do CO₂ em açúcar pela RuBisCO, e ADP, fosfato e NADP⁺ voltam para serem recarregados. Setas cheias são matéria; a tracejada é energia. As duas etapas rodam ao mesmo tempo, à luz. Fora de escala. Diagrama autoral.Espectro de absorção (o que cada pigmento retém) e espectro de ação (quanto O₂ a planta libera sob cada cor). Os dois têm o mesmo formato porque a fotossíntese só usa a luz absorvida; o espectro de ação é um pouco mais cheio no verde e no azul porque os pigmentos acessórios absorvem ali e repassam a energia. Os pontos vermelhos são as bactérias de Engelmann (1882), que procuram o O₂ onde ele é produzido. Curvas esquemáticas. Diagrama autoral.A etapa fotoquímica na membrana do tilacoide. A água entrega elétrons ao fotossistema II e vira O₂; os elétrons descem pela cadeia bombeando prótons para o lúmen, são reexcitados no fotossistema I e acabam no NADPH; os prótons voltam pela ATP-sintase e formam ATP. O fluxo cíclico (seta tracejada) devolve elétrons do fotossistema I à cadeia e produz só ATP, sem NADPH nem O₂. Fora de escala. Diagrama autoral.Três voltas do ciclo de Calvin: três CO₂ entram, seis G3P se formam, cinco regeneram as três RuBP e um sai como ganho líquido. A conta de carbonos fecha (3 × 5 + 3 = 18 = 6 × 3) e a de energia também: 9 ATP e 6 NADPH por G3P, 18 ATP e 12 NADPH por glicose. Nenhuma volta produz glicose diretamente. Diagrama autoral.Três maneiras de levar CO₂ à RuBisCO. A planta C₃ fixa direto e paga a fotorrespiração no calor; a C₄ pré-fixa no mesofilo e concentra o CO₂ na bainha (separação no espaço); a CAM pré-fixa à noite e fixa de dia (separação no tempo). O ciclo de Calvin é o mesmo nas três. Fora de escala. Diagrama autoral.Curvas de fatores. À esquerda: quando a luz limita, a taxa sobe com ela; na saturação, a luz sobra e o CO₂ (ou a temperatura) limita, por isso mais CO₂ eleva o patamar; com luz excessiva a taxa cai, na inibição. À direita: a temperatura age sobre as enzimas, com ótimo e queda por desnaturação; o ótimo é mais alto nas plantas C₄. Curvas esquemáticas, sem unidades reais. Diagrama autoral.A curva de Keeling, traçada com as médias mensais de Mauna Loa (NOAA GML e Scripps). A subida de longo prazo vem da queima de combustíveis fósseis e do desmatamento; o serrilhado é a fotossíntese do hemisfério norte, que puxa o CO₂ para baixo a cada verão boreal e o devolve a cada inverno. Em 2026, a queda de maio a agosto foi de quase 5 ppm. Diagrama autoral a partir de dados públicos.Ao investigar efeito da luz, outras condições precisam ser controladas. Saturação e fotoinibição descrevem comportamentos diferentes.Folhas possuem diferentes pigmentos. A separação evidencia diversidade que pode ficar mascarada pela predominância visual do verde.A fase fotoquímica se associa às membranas dos tilacoides; o ciclo de Calvin ocorre no estroma.Cloroplastos contêm estruturas que conectam a captação de luz à assimilação de carbono.As condições de luz variam no ambiente; uma taxa medida numa espécie e condição não vale automaticamente para todas as plantas.As bolhas são O₂ que saiu da água pela fotólise; contá-las por minuto, a distâncias diferentes da lâmpada, desenha a curva de luz com saturação.Dezenas de cloroplastos por célula: o verde é a cor real da clorofila, e cada organela tem os dois endereços da fotossíntese, tilacoides e estroma.A cana é uma planta C₄: pré-fixa o CO₂ no mesofilo e sustenta a produtividade no calor. A sacarose que a usina fermenta é luz do ano anterior.Cianobactérias fotossintetizam sem cloroplasto: foi nelas que a fotossíntese com liberação de O₂ surgiu, há mais de 2,4 bilhões de anos.O experimento de Sachs em versão escolar: o amido, revelado em roxo pelo iodo, só se formou onde a luz chegou.Planta CAM: os estômatos abrem à noite para captar CO₂, guardado como ácido málico, e fecham de dia, quando o ácido libera o gás para o ciclo de Calvin.Células que vivem dias e se renovam o ano inteiro: o fitoplâncton responde por quase metade da produção primária do planeta.
Rota PAS 3
Citologia e bioquímica: a célula em funcionamento · PAS 3
Fontes desta página
Os materiais abaixo contribuíram para a explicação e os exemplos deste assunto.
Rota PAS 3 — Citologia e bioquímica: a célula em funcionamento · Bioenergética: respiração, fermentação e fotossíntese; Como a banca cobra; Treino T7–T9
Itens reais PAS 3 2023/117, 2011/100, 2011/101 e 2011/103 (verbatim); saturação × inibição; endereço dos fotossistemas.
Biologia EM1 — Capítulo 7: A energia na célula · O cloroplasto e a fotossíntese: luz que vira açúcar; Fotossíntese e respiração no mesmo esquema; Quem mais fotossintetiza; Biomassa e biocombustíveis; ATP
Equação completa e origem do O₂ (van Niel, Ruben e Kamen), pigmentos e Engelmann, etapa fotoquímica e ciclo de Calvin, fatores limitantes, cianobactérias, fitoplâncton, quimiossíntese, etanol. Datas e números conferidos em fontes primárias (ver reviews/fotossintese-2026-10-02.json).
Biologia EM1 — Bloco PAS do Capítulo 7 · Textos-base IV, V e VI (PAS 1 2025/83, 2018/62–66, 2020/44)
Itens reais citados na teoria e reusados por GUID das páginas donas (organelas-celulares, respiracao-celular, ciclos-biogeoquimicos).
Rota PAS 2 — Botânica: a planta em funcionamento · Fotossíntese e respiração: a planta faz as duas
Itens PAS 2 2013/31–32, 2007/50–52, 2011/27 e 30, 2010/34, 2008/73 citados na teoria; os arquivos pertencem à página fisiologia-vegetal.