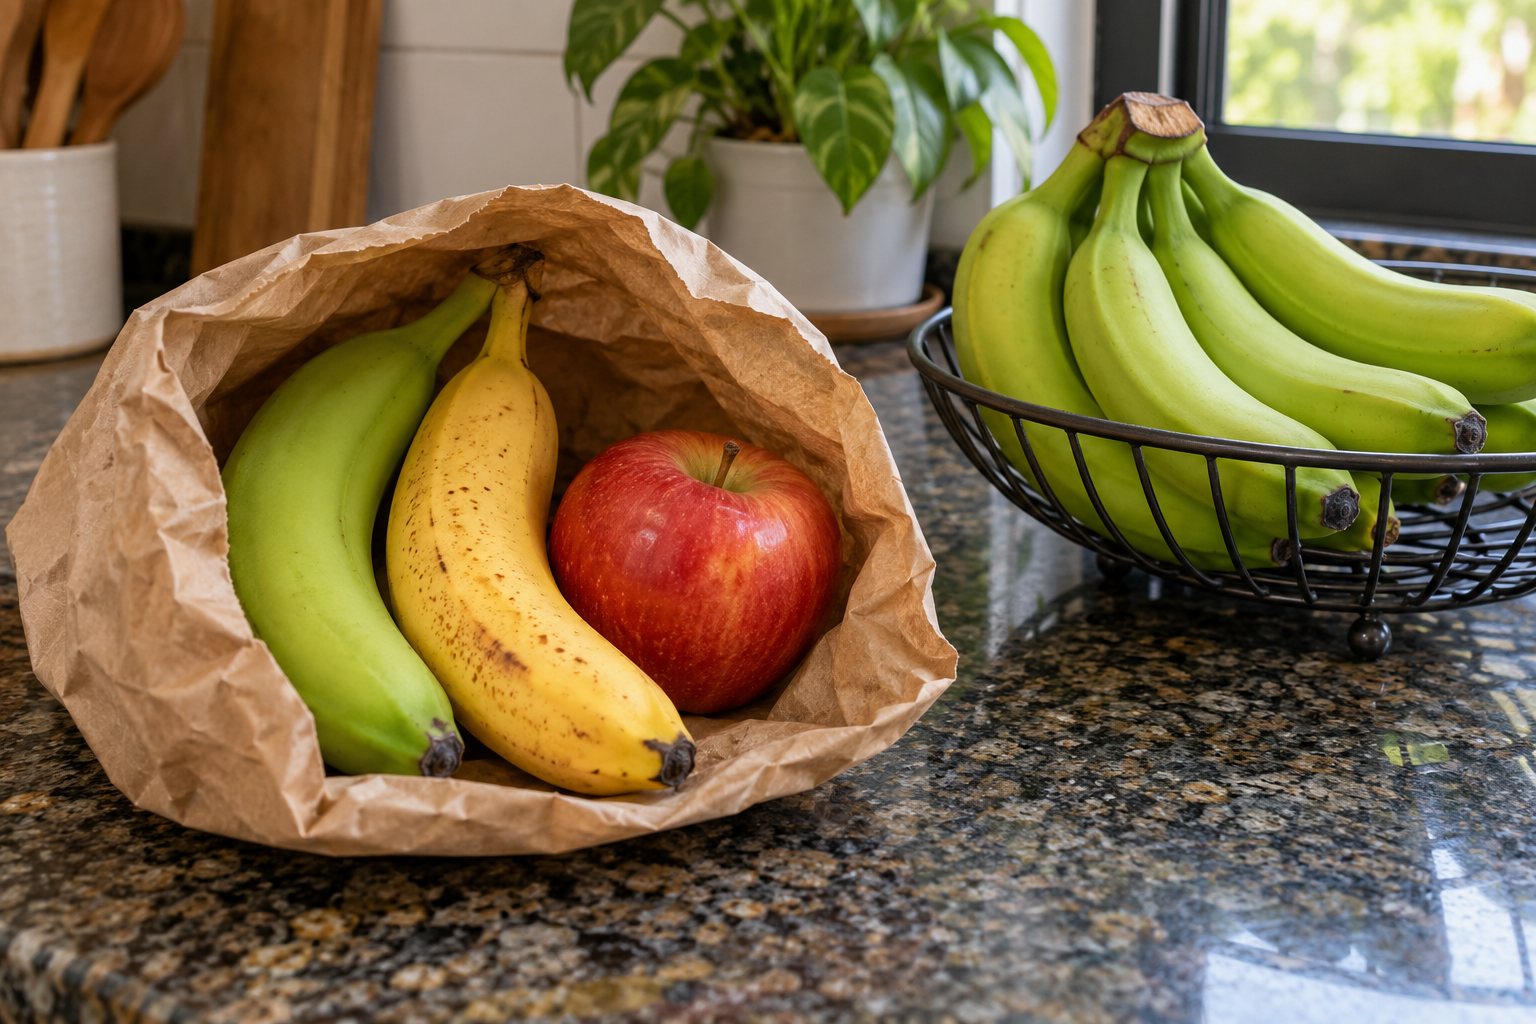Como uma planta sem coração, nervo ou cérebro sobe água até a copa, decide quando abrir os estômatos, manda açúcar para o fruto e sabe quando crescer, florescer, amadurecer e esperar?
O que você vai aprender
Distinguir fotossíntese bruta, respiração e fotossíntese líquida e localizar o ponto de compensação e a saturação numa curva de luz ou numa tabela de trocas gasosas.
Explicar por que a planta respira o tempo todo e fotossintetiza só com luz, em organelas diferentes, e julgar itens sobre o saldo de gases da folha.
Identificar o fator limitante da fotossíntese (luz, CO₂, temperatura, água) a partir do trecho da curva em que a planta está.
Descrever a absorção de água e sais pela raiz (pelos absorventes, osmose, vias apoplástica e simplástica, estria de Caspary) e a função da seleção na endoderme.
Explicar a subida da seiva bruta pela teoria da coesão-tensão e situar pressão da raiz, gutação e capilaridade como mecanismos coadjuvantes.
Explicar o mecanismo de abertura do estômato (turgor, potássio, osmose) e prever o efeito de luz, CO₂, água, ácido abscísico e temperatura sobre a abertura e sobre a transpiração.
Interpretar gráficos de transpiração e absorção ao longo do dia e explicar a murcha temporária.
Aplicar a hipótese do fluxo de pressão para prever o sentido do transporte no floema e interpretar o experimento do anelamento.
Associar cada fitormônio (auxina, giberelina, citocinina, etileno, ácido abscísico) à sua ficha e reconhecer a ficha trocada em um item.
Interpretar os experimentos de Darwin, Boysen-Jensen e Went e o gráfico de resposta à auxina do caule e da raiz, explicando fototropismo, gravitropismo e dominância apical.
Classificar movimentos como tropismos ou nastismos e distinguir fototropismo de fotoperiodismo.
Decidir, a partir do fotoperíodo crítico, se uma planta de dia curto, de dia longo ou neutra floresce em dado regime de luz, e explicar o papel do fitocromo e da noite contínua.
Listar os fatores da germinação, distinguir vida latente de ausência de metabolismo e explicar os tipos de dormência e como são quebrados.
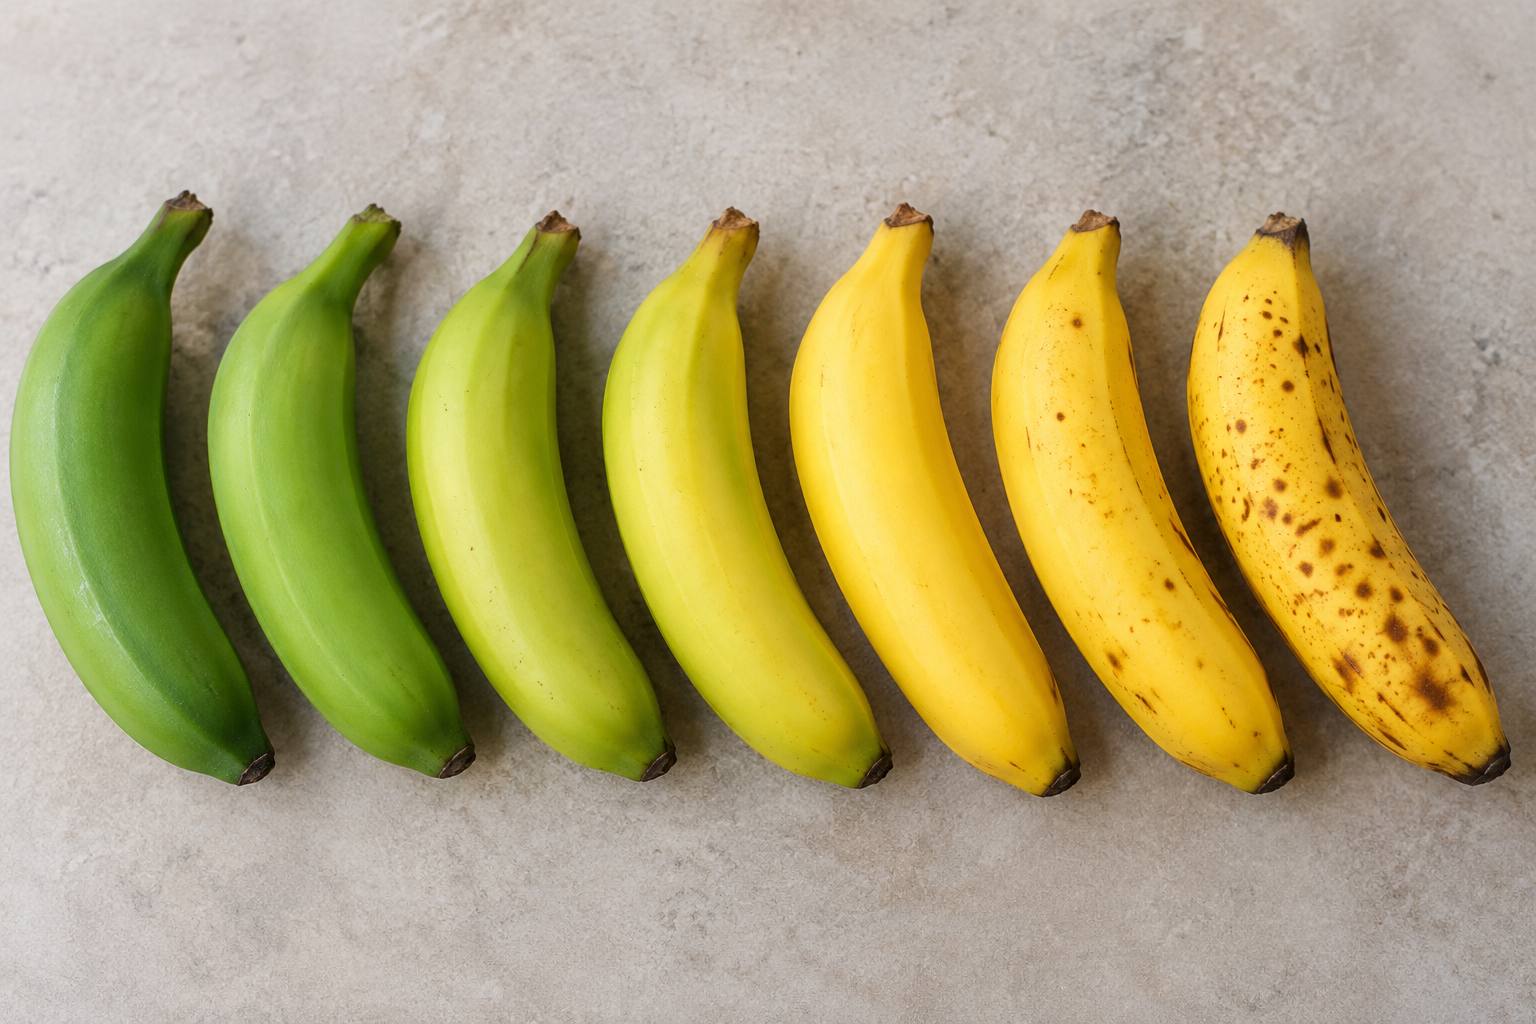
Uma banana verde dentro de um saco de papel com uma maçã madura amadurece em dois dias; sozinha na fruteira, leva uma semana. Um pé de tomate deitado no chão levanta a ponta e cresce torto em direção à janela. Um cravo branco num copo de água com corante azul fica com as bordas das pétalas azuis em poucas horas, sem bomba nenhuma. Uma alface esquecida na bancada murcha; mergulhada em água, fica crocante de novo em meia hora. Um pé de feijão germinado dentro do armário cresce fino, comprido e amarelo por uma semana e depois para. Nenhuma dessas plantas tem coração, nervo ou cérebro. O que explica as cinco cenas é um conjunto pequeno de mecanismos: um balanço entre o que a planta fabrica com luz e o que gasta o tempo todo, uma coluna de água puxada de cima, um poro que abre e fecha, um açúcar que viaja sob pressão e cinco substâncias que mandam crescer, entortar, amadurecer ou esperar.
Esta página é sobre a planta em funcionamento. Começa pelo balanço entre fotossíntese e respiração, com o ponto de compensação e a leitura da curva de luz; passa pela nutrição mineral em uma passagem; percorre o caminho da água, da raiz ao estômato, e a teoria da coesão-tensão; explica como o estômato decide abrir e o que governa a transpiração; mostra como o açúcar vai da fonte ao dreno pelo floema e o que o anelamento prova; apresenta as fichas dos cinco hormônios e os experimentos que descobriram a auxina; separa tropismos de nastismos; explica como a planta mede a noite para florescer; e termina na germinação, na leitura de gráficos e nos erros que os itens plantam. As etapas bioquímicas da fotossíntese estão em fotossíntese, e as da respiração, em respiração celular. Osmose e transporte pela membrana, em membrana plasmática e transportes; as propriedades da água (coesão, adesão, calor de vaporização), em água e sais minerais; o ciclo do nitrogênio e do fósforo, em ciclos biogeoquímicos; as adaptações das plantas do Cerrado ao fogo e ao solo, em Cerrado. Os grupos vegetais, os tecidos (xilema e floema como tecidos) e a flor, o fruto e a polinização ficam em páginas próprias: aqui só entra o que a planta faz com eles.
A planta fabrica de dia e gasta o tempo todo: o balanço que decide se ela cresce
Toda célula viva da planta respira, da ponta da raiz à pétala, de dia e de noite, nas mitocôndrias. Só as células com cloroplastos fotossintetizam, e só enquanto há luz. Os dois processos acontecem ao mesmo tempo, na mesma folha, durante o dia, em organelas diferentes. O que se mede por fora, o gás que entra ou sai da folha, é o saldo dos dois, nunca um deles isolado. Esse saldo é o que decide se a planta ganha ou perde massa.
Fotossíntese bruta, respiração e fotossíntese líquida
Fotossíntese bruta é tudo o que a planta fixa de carbono com a luz. Respiração é o que ela devolve ao ar, dia e noite, para obter ATP. Fotossíntese líquida é a diferença: bruta menos respiração. Quando a diferença é positiva, a planta acumula carbono e cresce; quando é negativa, vive das reservas e emagrece. O ponto de compensação é a condição, de luz ou de gás carbônico, em que fotossíntese bruta e respiração se igualam: a troca líquida de gases com o ar é zero, embora os dois processos continuem rodando. Numa folha, a quantidade de O₂ liberada é igual à de CO₂ absorvida, porque as duas equações são inversas e têm a mesma proporção entre os gases, 6 para 6 por glicose. Se a planta libera mais O₂ do que consome, é porque fotossintetiza mais do que respira, não porque as proporções sejam diferentes.
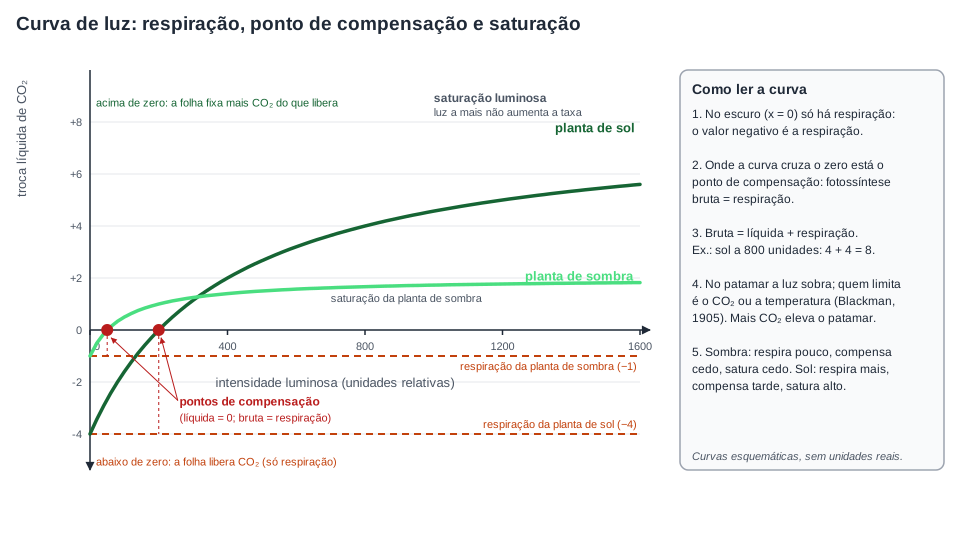
Pense no gráfico da taxa de fotossíntese em função da intensidade luminosa. No escuro, a taxa de fotossíntese é zero e a planta só respira: a troca líquida é negativa, a folha libera CO₂. À medida que a luz aumenta, a fotossíntese cresce quase em linha reta, porque cada fóton a mais é aproveitado. Em certo ponto a curva cruza a linha da respiração: é o ponto de compensação luminoso. Depois dele, a planta ganha carbono. Mais adiante a curva se achata e chega a um patamar, a saturação luminosa: luz a mais não aumenta a taxa, porque o gargalo passou a ser outro fator, em geral o CO₂, que é escasso no ar (cerca de 0,04 %) e entra pelos estômatos devagar. Em 1905, o fisiologista inglês Frederick Blackman formulou a regra que explica a forma da curva: quando um processo depende de vários fatores, a velocidade é ditada pelo fator que está mais escasso. Dobre o CO₂ e o patamar sobe. A temperatura age sobre as enzimas: a taxa sobe até um ótimo e cai depois, por desnaturação. A água limita por um caminho indireto: a planta com pouca água fecha os estômatos, e sem estômato aberto não entra CO₂. Estufas comerciais aplicam a regra ao pé da letra, injetando CO₂ e controlando luz e temperatura.
A curva de luz. No escuro só há respiração, por isso a troca líquida começa negativa. Cada curva cruza o zero no seu ponto de compensação e se achata na saturação, onde a luz deixa de ser o fator limitante. A planta de sombra respira menos e compensa com pouca luz, mas satura cedo; a planta de sol precisa de mais luz para compensar e aproveita o sol forte. Curvas esquemáticas, sem unidades reais. Diagrama autoral.
Duas plantas com a mesma luz podem estar em lados opostos do ponto de compensação. Plantas de sombra (as do sub-bosque de uma mata, muitas plantas de interior) têm folhas finas, com mais clorofila por massa, e respiração baixa: o ponto de compensação é baixo, elas sobrevivem com pouca luz, mas saturam cedo e crescem devagar. Plantas de sol (gramíneas de campo aberto, a maioria das culturas agrícolas) respiram mais, precisam de mais luz para compensar e só mostram sua vantagem em sol pleno, onde seu patamar é muito mais alto. Uma planta de sol posta num canto escuro da sala fica abaixo do ponto de compensação a maior parte do dia, gasta as reservas e morre mesmo regada. Uma planta de sombra posta a sol pleno satura, aquece, fecha estômatos e pode queimar as folhas. O mesmo raciocínio vale para o CO₂: as plantas chamadas C₄ (milho, cana, capim) concentram o gás antes de fixá-lo e têm ponto de compensação de CO₂ muito baixo, o que as mantém com saldo positivo no calor e com estômatos semiabertos; as plantas C₃ (feijão, soja, arroz, trigo) fixam o CO₂ direto no ciclo de Calvin e perdem rendimento no calor forte. As plantas CAM (cactos, abacaxi, agave) abrem os estômatos à noite, guardam o CO₂ em ácidos orgânicos como o málico e o liberam de dia, com os estômatos fechados. Como funcionam as três vias está em fotossíntese; aqui importa a consequência: ponto de compensação e eficiência no uso da água são diferentes, e a prova já cobrou exatamente isso.
O PAS 2 de 2013 trouxe os dois lados do balanço no mesmo caderno. O item 31 descreveu o metabolismo CAM com tudo no lugar, estômatos fechados de dia e abertos à noite, CO₂ guardado em ácidos orgânicos e liberado de dia para a fotossíntese: certo. O item 32 afirmou que a luz “aumenta a liberação de CO₂ pelas folhas das plantas, porque esse composto é produzido na fotossíntese e na respiração celular”: errado, porque a fotossíntese consome CO₂; com luz, a folha libera menos gás carbônico, não mais, e abaixo do ponto de compensação ela ainda libera algum, mas menos do que no escuro. Em 2007, uma tabela comparou as três vias (eficiência no uso da água, taxa ótima e ponto de compensação de 50, 5 e 2 mg de CO₂ por litro de ar para C₃, C₄ e CAM); o item 50, que dizia que as plantas C₃ são mais eficientes na fixação de CO₂ que as C₄ em condições iguais, foi errado, e o item 52, que chamou a via CAM de adaptação vantajosa em regiões áridas, foi certo. E em 2010, um item pendurado na canção Matança disse que respiração e fotossíntese ocorrem “ao mesmo tempo e no mesmo local, na célula vegetal”: errado pelo “mesmo local”, porque uma acontece no cloroplasto e a outra na mitocôndria. Ao mesmo tempo, de dia, está certo.
Dois endereços, dois horários, um saldo
Fotossíntese: cloroplasto, só com luz, consome CO₂ e libera O₂. Respiração: mitocôndria, sempre, consome O₂ e libera CO₂. “Ao mesmo tempo” está certo durante o dia; “no mesmo local” está errado; “a planta respira só à noite” está errado; “a luz aumenta a liberação de CO₂” está errado. Quando um item fala do gás que a folha troca com o ar, pergunte se ele está falando do processo ou do saldo: o saldo pode ser zero com os dois processos a pleno vapor.
A planta devolve ao ar uma fração grande do que fixa. Em muitas espécies, perto de metade do carbono fixado no dia é respirado pela própria planta; o que sobra é a produtividade primária líquida, a matéria que vira caule, raiz, fruto e que fica disponível para quem come a planta, conceito que cadeias e teias alimentares usa. Uma floresta madura tem fotossíntese bruta enorme, mas o saldo de carbono do ecossistema fica perto de zero, porque plantas, animais e decompositores respiram quase tudo o que ela fixa: é um ecossistema inteiro no seu ponto de compensação. Uma plantação jovem ou uma floresta em regeneração tem saldo positivo e por isso acumula carbono.
Exemplo resolvido: lendo uma tabela de trocas gasosas. Uma folha foi mantida em câmaras com diferentes intensidades luminosas, e mediu-se a troca líquida de CO₂ em miligramas por hora: no escuro, −4; com 100 unidades de luz, −2; com 200, 0; com 400, +6; com 800, +10; com 1 600, +10. Qual é a respiração da folha? Qual é o ponto de compensação? Qual é a fotossíntese bruta com 400 unidades? A respiração é o que se mede no escuro, quando não há fotossíntese: 4 mg/h de CO₂ liberados. O ponto de compensação é a luz em que a troca líquida é zero: 200 unidades. A fotossíntese bruta é a líquida mais a respiração, supondo que a respiração não mude com a luz: com 400 unidades, 6+4=10 mg/h. A saturação acontece entre 800 e 1 600 unidades, onde a taxa para de subir. Conferência: no ponto de compensação a bruta deve ser igual à respiração, 0+4=4 mg/h, e é. O erro clássico é ler o zero da tabela como “a folha parou de fotossintetizar e de respirar”: ela está fazendo as duas coisas, a 4 mg/h cada.
Nutrição mineral: o que a raiz busca no solo além de água
A massa de uma planta vem quase toda do ar: o carbono da glicose entra como CO₂ pelos estômatos, e o oxigênio e o hidrogênio vêm da água e do próprio CO₂. Do solo a raiz retira água e sais minerais, uma fração pequena da massa seca, mas sem a qual nada funciona. Os macronutrientes, exigidos em maior quantidade, são nitrogênio, fósforo, potássio, cálcio, magnésio e enxofre. O nitrogênio entra em todo aminoácido, em toda proteína, no DNA e na clorofila; a planta o absorve como nitrato ou amônio, nunca como N₂ do ar, e por isso depende das bactérias do ciclo do nitrogênio. O fósforo está no ATP, nos ácidos nucleicos e nos fosfolipídios das membranas. O potássio não entra em molécula nenhuma: é o íon que regula o turgor das células e, como a seção dos estômatos mostra, abre e fecha os poros da folha. O magnésio é o átomo central da clorofila; o cálcio dá firmeza à parede celular; o enxofre entra em dois aminoácidos. Os micronutrientes (ferro, manganês, zinco, cobre, boro, molibdênio, cloro, níquel) são exigidos em quantidades ínfimas, em geral como cofatores de enzimas. A falta de um nutriente aparece na folha: nitrogênio em falta amarela as folhas velhas primeiro, porque a planta desloca o nitrogênio delas para as folhas novas; ferro em falta amarela as folhas novas, porque o ferro não se move dentro da planta. Os adubos N-P-K levam no nome os três macronutrientes que o solo mais frequentemente não dá na quantidade exigida pelas lavouras. No Cerrado, o solo é profundo mas pobre em cálcio, magnésio e fósforo e ácido, com alumínio tóxico; as plantas nativas toleram isso, a soja não, e por isso a lavoura só se instalou com calagem e adubo fosfatado, história contada em Cerrado.
Da raiz ao xilema: como a água entra e por que sobe sem bomba
A água se move na planta por dois motivos diferentes, e separá-los é metade desta seção. Ela entra nas células por osmose, atrás do lado mais concentrado. Ela sobe pela planta puxada pela evaporação lá em cima, nas folhas. Nenhum dos dois movimentos é um bombeamento: não existe coração vegetal, e a raiz não “suga” a água do solo.
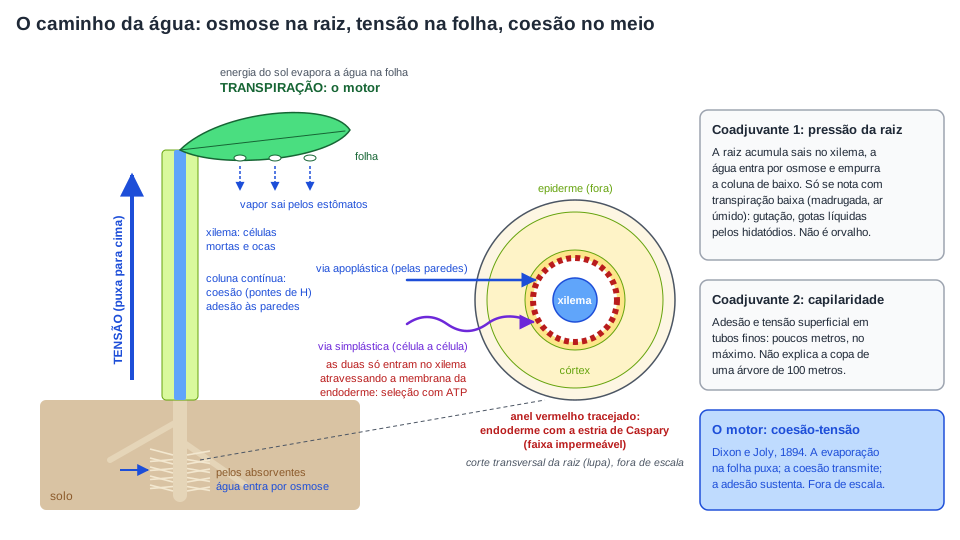
Absorção. A ponta de cada raiz, logo atrás da região de crescimento, tem uma zona coberta de pelos absorventes: prolongamentos finos das células da epiderme que multiplicam a superfície de contato com o solo. O interior da raiz é mais concentrado em solutos do que a solução do solo, e a água entra por osmose. Entre a epiderme e o cilindro central, onde está o xilema, a água atravessa o córtex por dois caminhos. Pela via apoplástica, ela corre pelas paredes celulares e pelos espaços entre as células, sem atravessar membrana nenhuma. Pela via simplástica, ela atravessa a membrana e passa de célula a célula pelo citoplasma. Na camada mais interna do córtex, a endoderme, uma faixa impermeável de suberina nas paredes, a estria de Caspary, bloqueia a via apoplástica: tudo o que vai entrar no xilema precisa atravessar a membrana de uma célula da endoderme. É aí que a planta seleciona: deixa passar água e os íons que quer, com transporte ativo, e barra o que não quer. Os sais minerais, portanto, não entram “junto com a água” de modo passivo: a raiz gasta ATP para concentrá-los.
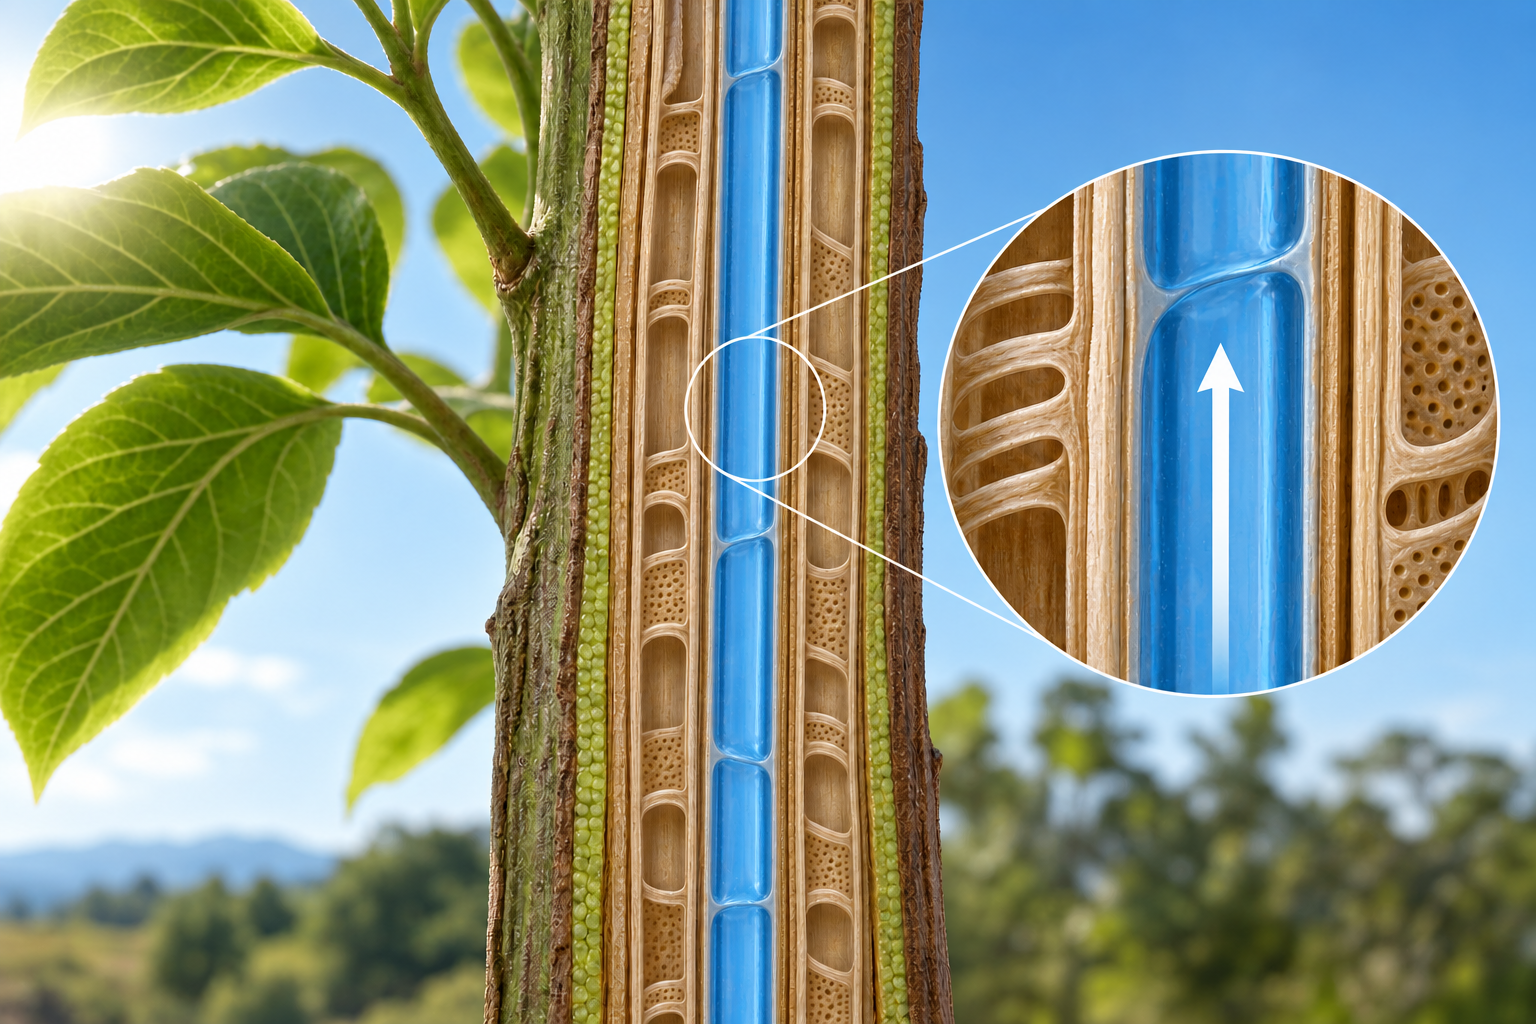
O xilema. O tecido que conduz a água é um encanamento de células mortas e ocas (traqueídes e elementos de vaso), com paredes reforçadas de lignina, emendadas ponta a ponta da raiz até a última folha. Por ele sobe a seiva bruta (ou mineral): água e sais. Como o xilema é morto, ele não pode bombear nada; o motor tem que estar fora dele.
A teoria da coesão-tensão
Nas folhas, a água evapora da superfície das células do mesofilo para os espaços de ar e sai pelos estômatos: é a transpiração. Cada molécula que evapora puxa a vizinha, porque as moléculas de água são ligadas por pontes de hidrogênio (coesão); a coluna inteira, da folha à raiz, é puxada para cima sob tensão, uma pressão negativa, e não se rompe porque a coesão a mantém contínua e a adesão da água às paredes do xilema a sustenta. O motor é a evaporação na folha; a energia vem do sol que aquece a folha; a raiz apenas repõe, por osmose, o que a folha perde. É a teoria da coesão-tensão, proposta por Henry Dixon e John Joly em 1894 (Josef Boehm chegara a ideia parecida em 1893), e ela explica como a água chega ao alto de uma sequoia de 100 metros sem nenhuma parte móvel.
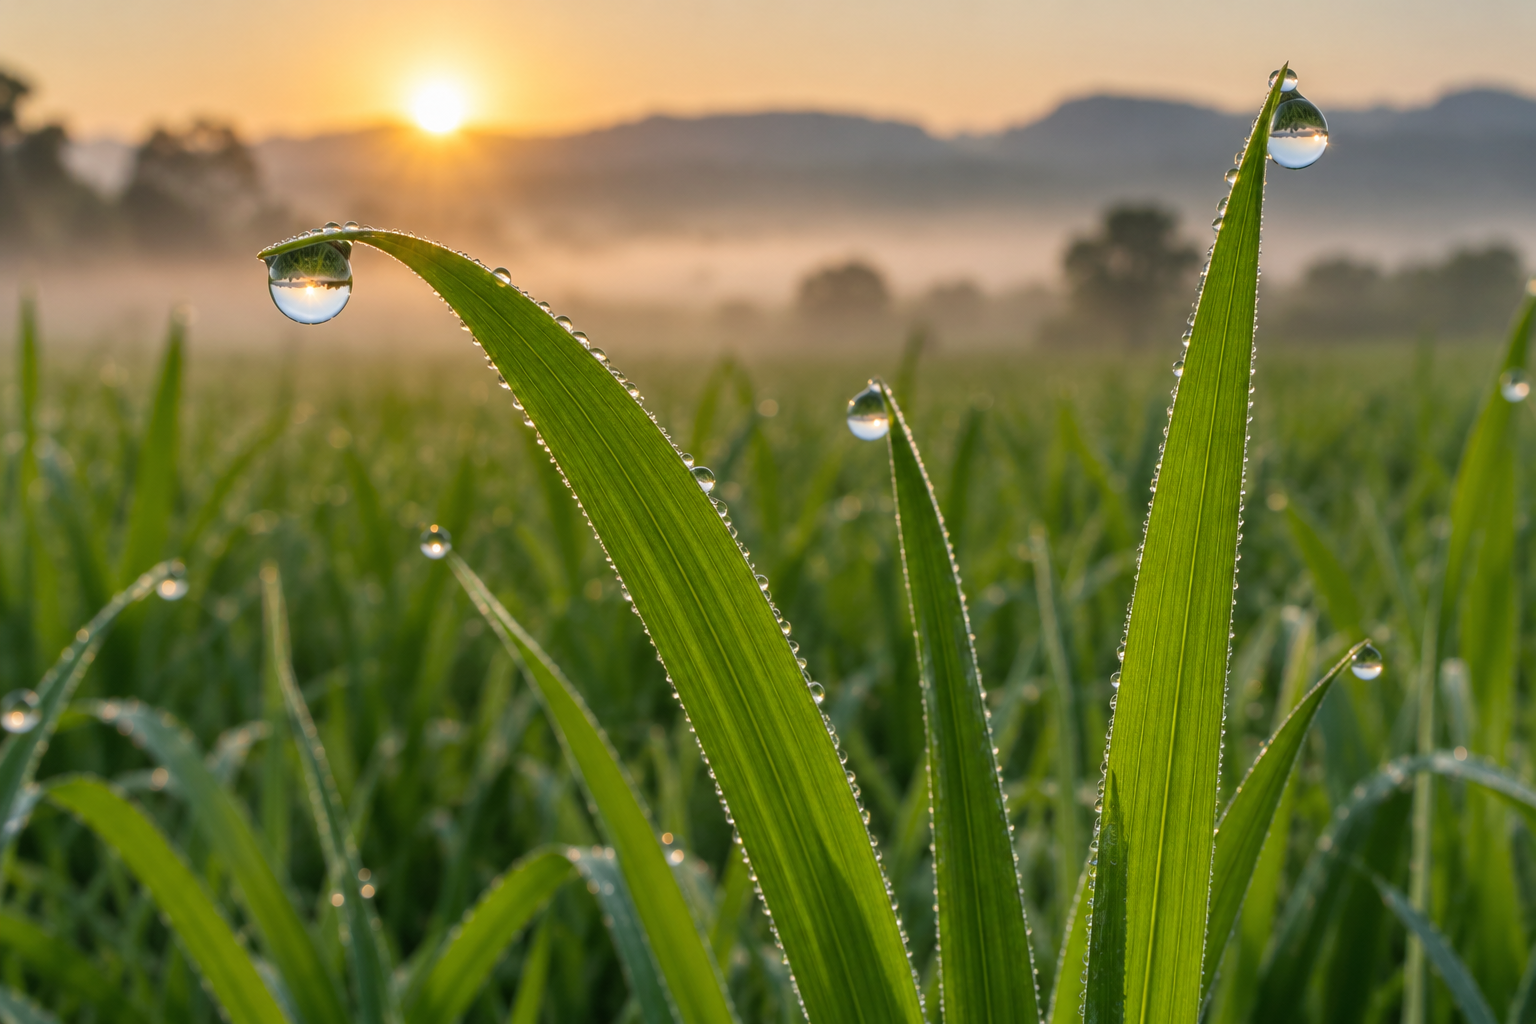
Dois outros mecanismos existem, mas são coadjuvantes. A capilaridade, a subida da água em tubos finos por adesão e tensão superficial, leva a água a alguns centímetros ou poucos metros, nunca ao alto de uma árvore. A pressão positiva da raiz aparece quando a raiz acumula sais no xilema e a água entra por osmose, empurrando a coluna de baixo para cima; ela só se nota quando a transpiração é baixa, de madrugada ou em ar úmido, e seu sinal é a gutação: gotas de água líquida nas pontas e bordas das folhas de capim e de morangueiro ao amanhecer, saindo por poros especiais (hidatódios). Gutação não é orvalho (que se condensa do ar) nem transpiração (que é vapor): é água líquida empurrada de dentro. Em árvores altas a pressão da raiz é insignificante; quem sobe a água é a transpiração.
O caminho da água. Ela entra na raiz por osmose, passa obrigatoriamente pela membrana das células da endoderme (a estria de Caspary bloqueia a via pelas paredes) e sobe pelo xilema morto puxada pela evaporação na folha. A coluna não se rompe porque as moléculas de água se atraem (coesão) e aderem às paredes do vaso. Pressão da raiz e capilaridade existem, mas não levam água ao alto de uma árvore. Fora de escala. Diagrama autoral.
O cravo azul e o buquê que murcha
O cravo branco no copo com corante fica azul nas bordas das pétalas porque o caule cortado continua a conduzir: a evaporação nas pétalas e nas folhas puxa a coluna pelo xilema, e o corante sobe junto. O mesmo experimento diz por que o buquê murcha depressa se o caule não for cortado de novo debaixo d’água: ao cortar no ar, bolhas entram nos vasos e rompem a coluna; sem continuidade, a coesão não tem o que puxar. Florista corta o caule em diagonal e dentro da água por isso, não por capricho.
A absorção pelas folhas existe em algumas espécies: árvores de florestas de neblina e plantas de restinga absorvem água do orvalho e da bruma pela superfície da folha. Foi a reportagem sobre essas árvores que o PAS 2 de 2008 usou como texto-base para três itens. O item 109 afirmou que “as plantas eliminam água para o ambiente unicamente pelas folhas”: errado, porque caules jovens (pelas lenticelas da casca), flores e frutos também perdem água; o “unicamente” é a absolutização que derruba o item. O item 110 concluiu que, num dia a 35 °C e 14 % de umidade relativa, a transpiração seria mais intensa nas plantas que absorvem água só pela raiz do que nas que absorvem também pela folha: errado, porque a intensidade da transpiração depende do ar (quente e seco transpira-se muito) e da abertura dos estômatos, não de por onde a planta absorve a água. O item 111, que chamou a absorção foliar de “resposta evolutiva do vegetal à disponibilidade de água no ambiente”, foi certo.
Estômatos: o dilema de abrir para o CO₂ e perder água
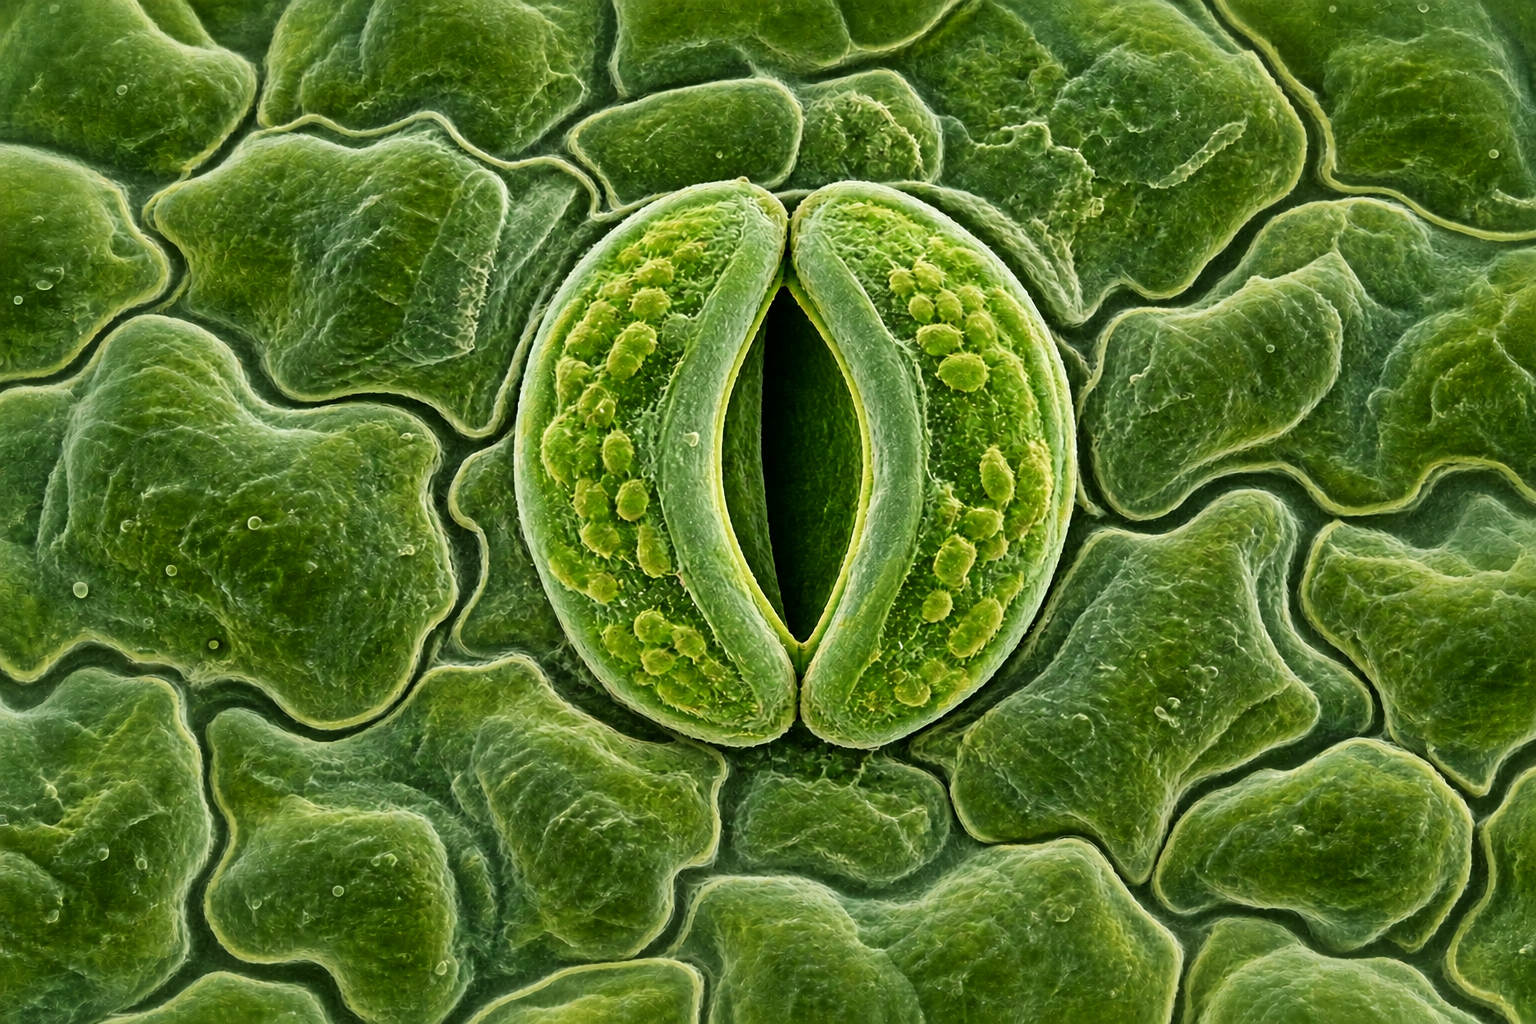
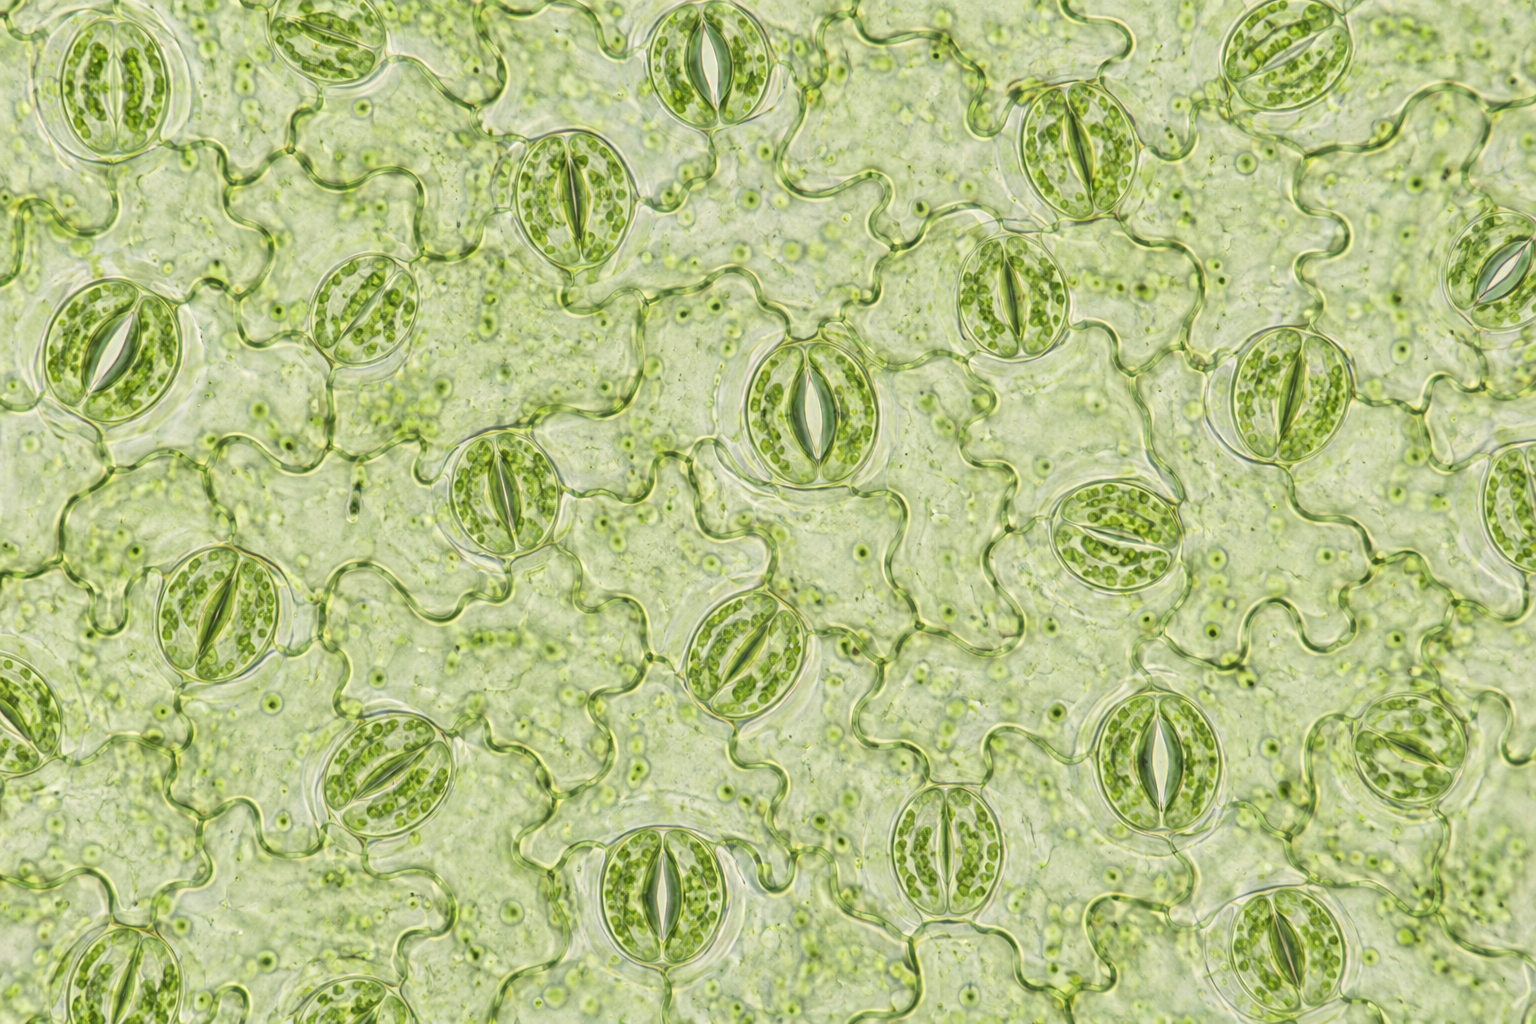
O estômato é um poro na epiderme da folha, cercado por duas células-guarda em forma de rim (ou de haltere, nas gramíneas). É por ele que entra o CO₂ da fotossíntese e por ele que sai o vapor da transpiração; é também por ele que entra o O₂ da respiração à noite e sai o O₂ produzido de dia. Abrir o estômato é ganhar CO₂ e perder água; fechar é poupar água e ficar sem CO₂. A planta vive administrando esse dilema, e quase tudo nesta seção é a lista do que pesa em cada prato da balança. Na maioria das folhas os estômatos estão na face inferior, protegida do sol direto; em folhas flutuantes de plantas aquáticas ficam na face de cima; em folhas submersas não existem.
Como o estômato abre: turgor e potássio
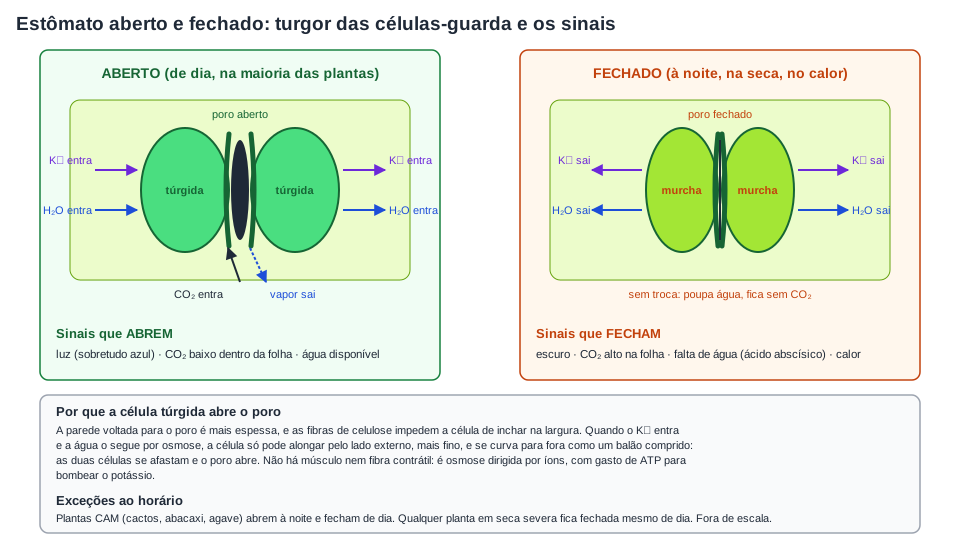
As células-guarda abrem o poro quando ficam túrgidas e o fecham quando perdem água. O que muda o turgor é o íon potássio (K⁺): quando a célula-guarda bombeia K⁺ para dentro (com gasto de ATP, acompanhado de cloreto e de malato produzido na própria célula), sua concentração sobe, a água entra por osmose, a célula incha e, como a parede que dá para o poro é mais espessa e as fibras de celulose impedem o inchaço radial, as duas células se curvam para fora e o poro se abre. Quando o K⁺ sai, a água sai atrás, as células murcham e o poro fecha. Não há músculo: é osmose dirigida por íons.
O que faz o K⁺ entrar ou sair é um conjunto de sinais, e cada um tem direção definida. Luz, sobretudo a azul, abre: ativa as bombas das células-guarda e, de dia, a planta precisa de CO₂. CO₂ baixo dentro da folha abre, e CO₂ alto fecha: quando a fotossíntese consome o gás interno, o estômato abre para repor; à noite, com a respiração acumulando CO₂, ele fecha. Água em falta fecha: a raiz em solo seco produz ácido abscísico (ABA), que viaja no xilema até a folha e faz as células-guarda perderem K⁺; a folha fecha os estômatos antes mesmo de murchar. Temperatura alta costuma fechar, pelo mesmo caminho do estresse hídrico. Somando, o padrão da maioria das plantas é estômato aberto de dia e fechado à noite, com fechamento parcial nas horas mais quentes e secas do dia. As exceções têm nome: as plantas CAM invertem o padrão (abrem à noite, fecham de dia), e uma planta de qualquer grupo em seca severa mantém os estômatos fechados mesmo de dia, parando a fotossíntese para não secar. Foi essa a lógica do item 74 do PAS 2 de 2017: a vegetação do Cerrado “se caracteriza por apresentar folhas com estômatos permanentemente abertos” é errado, porque planta de estação seca prolongada administra água fechando estômatos; “permanentemente abertos” seria a receita para secar.
O estômato abre quando as células-guarda acumulam potássio e ganham água por osmose, e fecha quando o perdem. Luz e CO₂ baixo abrem; escuro, CO₂ alto, falta de água (via ácido abscísico) e calor fecham. As plantas CAM invertem o horário. Diagrama autoral.
O estômato não se abre "para respirar"
A respiração das células da folha acontece o tempo todo e usa o O₂ que atravessa a epiderme pelos estômatos e pelas lenticelas; mas o que governa a abertura do estômato é a demanda de CO₂ da fotossíntese e a disponibilidade de água, não a respiração. Dizer que a planta “abre os estômatos à noite para respirar” erra duas vezes: a maioria fecha à noite, e quem abre à noite (as CAM) abre para captar CO₂.
Transpiração. É a perda de água em forma de vapor, sobretudo pelos estômatos (transpiração estomática), e um pouco pela cutícula (transpiração cuticular, pequena quando a cutícula é espessa). Uma planta transpira muito mais água do que usa: mais de 90 % da água absorvida pela raiz sai pela folha como vapor, e só uma fração pequena fica nas células ou entra na fotossíntese. Não é desperdício puro: a transpiração é o motor da subida da seiva bruta, distribui os sais minerais pela planta e esfria a folha, porque a água leva calor ao evaporar. Os fatores que a aumentam são os mesmos que fazem roupa secar mais rápido no varal: luz (abre estômatos), temperatura alta, umidade relativa baixa (ar seco recebe vapor com mais facilidade) e vento (varre a camada de ar úmido que se forma sobre a folha). A água no solo age no sentido contrário: solo seco faz a planta fechar estômatos e transpirar menos. Um item do PAS 2 de 2008 (o 110, comentado na seção anterior) foi escrito justamente sobre um dia a 35 °C e 14 % de umidade, condição de transpiração máxima.
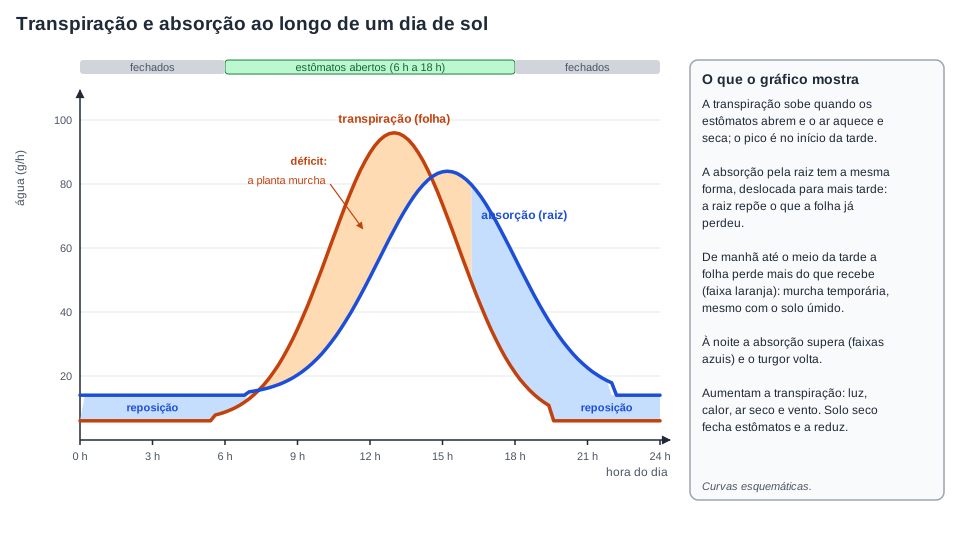
Transpiração e absorção num dia de sol. A transpiração dispara quando os estômatos abrem e o ar aquece; a absorção pela raiz segue a mesma forma, mas atrasada, porque a raiz só repõe o que a folha já perdeu. Entre as duas curvas, de manhã até o meio da tarde, a folha perde mais do que recebe e murcha; à noite a absorção supera e a planta recupera o turgor. Curvas esquemáticas. Diagrama autoral.
Esse gráfico explica o pé de tomate que murcha ao meio-dia com o solo úmido. Às nove da manhã os estômatos estão abertos: entra CO₂, sai vapor, a coluna sobe, a raiz repõe. Ao meio-dia, com 32 °C e ar seco, a transpiração supera a absorção; as células das folhas perdem turgor e a planta murcha. As células-guarda fecham parte dos estômatos: menos água sai, mas entra menos CO₂, e a fotossíntese cai. No fim da tarde o ar esfria, a umidade sobe, a transpiração diminui, a raiz recupera o atraso e a planta se ergue. Nenhuma bomba trabalhou; foi o sol, evaporando água na folha, que puxou a coluna inteira. O balanço hídrico da planta é essa conta: o que entra pela raiz menos o que sai pela folha; quando fica negativo por tempo demais, a murcha deixa de ser temporária e vira murcha permanente, com dano às células.
Floema: o açúcar vai da fonte ao dreno, em qualquer direção
O açúcar fabricado na folha precisa chegar à raiz, ao fruto, à gema e ao tubérculo, que não fotossintetizam. Quem o leva é o floema, um tecido de células vivas: os tubos crivados (ou elementos crivados), células alongadas, sem núcleo, ligadas por placas perfuradas, acompanhadas de células companheiras que fazem o trabalho metabólico. Por ele circula a seiva elaborada (ou orgânica): água com sacarose, mais aminoácidos, hormônios e sinais. O caldo doce da cana é seiva elaborada.
Fonte, dreno e a hipótese do fluxo de pressão
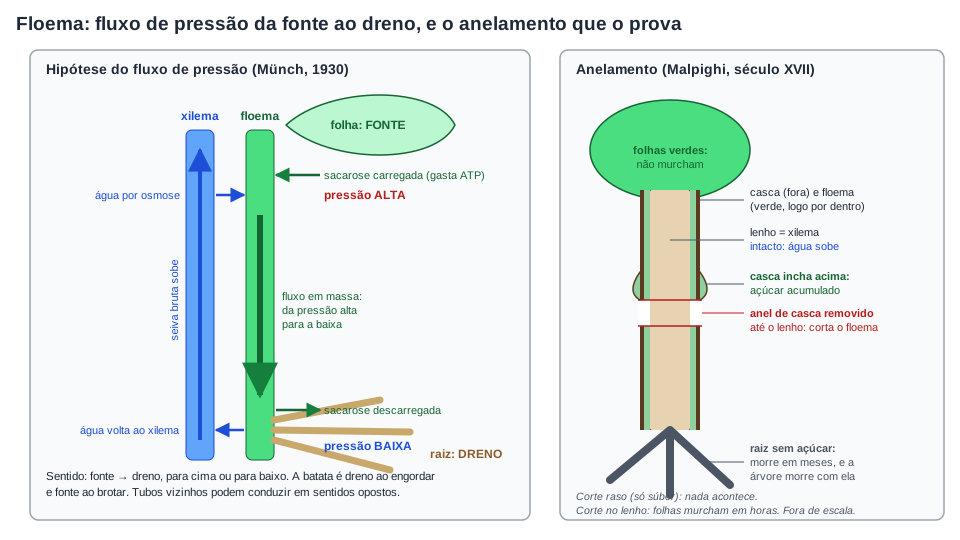
Fonte é o órgão que exporta açúcar: a folha madura, ou um órgão de reserva (tubérculo, raiz tuberosa, cotilédone) quando está sendo esvaziado. Dreno é o órgão que importa: fruto em crescimento, raiz, gema, flor, folha jovem, tubérculo em formação. O mesmo órgão troca de papel: a batata é dreno enquanto engorda e vira fonte quando brota. A hipótese do fluxo de pressão, formulada por Ernst Münch em 1930, explica o movimento em quatro passos. Na fonte, a sacarose é carregada nos tubos crivados com gasto de energia; a concentração ali sobe; a água entra do xilema vizinho por osmose; a pressão dentro do tubo aumenta. No dreno, a sacarose é descarregada e consumida ou armazenada; a concentração cai; a água sai; a pressão diminui. Entre pressão alta na fonte e baixa no dreno, a seiva flui em massa, pelo mesmo motivo que a água corre numa mangueira. O sentido do fluxo é da fonte para o dreno, para cima ou para baixo, conforme onde cada um está; tubos vizinhos podem conduzir em sentidos opostos.
A frase “a seiva elaborada desce” descreve a folha mandando açúcar para a raiz, caso comum, mas não é regra: a mesma folha manda açúcar para cima, para o fruto na ponta do ramo, e a batata brotando manda açúcar para o alto. O que define o sentido é a posição relativa de fonte e dreno. O xilema, ao contrário, só tem um sentido útil: da raiz para a folha, porque a tensão vem de cima. Os dois tecidos trabalham acoplados: a água que entra no floema na fonte vem do xilema, e a que sai no dreno volta a ele.
O PAS 2 de 2013 descreveu esse mecanismo com precisão de livro, num bloco sobre a cana-de-açúcar, e o item 95 foi certo: “O açúcar produzido nas folhas da cana-de-açúcar é transportado para o interior dos tubos crivados, o que aumenta sua concentração local e promove, por osmose do xilema para o floema, a entrada de água, que empurra a seiva elaborada do floema.” É a hipótese de Münch em uma frase. Em 2011, num texto sobre o outono, o floema apareceu pelo avesso: o texto contava que uma camada de cortiça se forma no pecíolo antes da queda da folha e bloqueia o fluxo, e por isso o açúcar se acumula na folha; o item 28, que disse que esse acúmulo “induz o aumento do fluxo de matéria orgânica através do floema”, foi errado, porque acúmulo é sinal de fluxo interrompido, não aumentado. O item 29 do mesmo bloco foi certo: a queda das folhas, defesa contra a seca fisiológica do inverno, deixa entrar luz e umidade no chão da mata e facilita o desenvolvimento dos musgos, que precisam de água no ambiente.
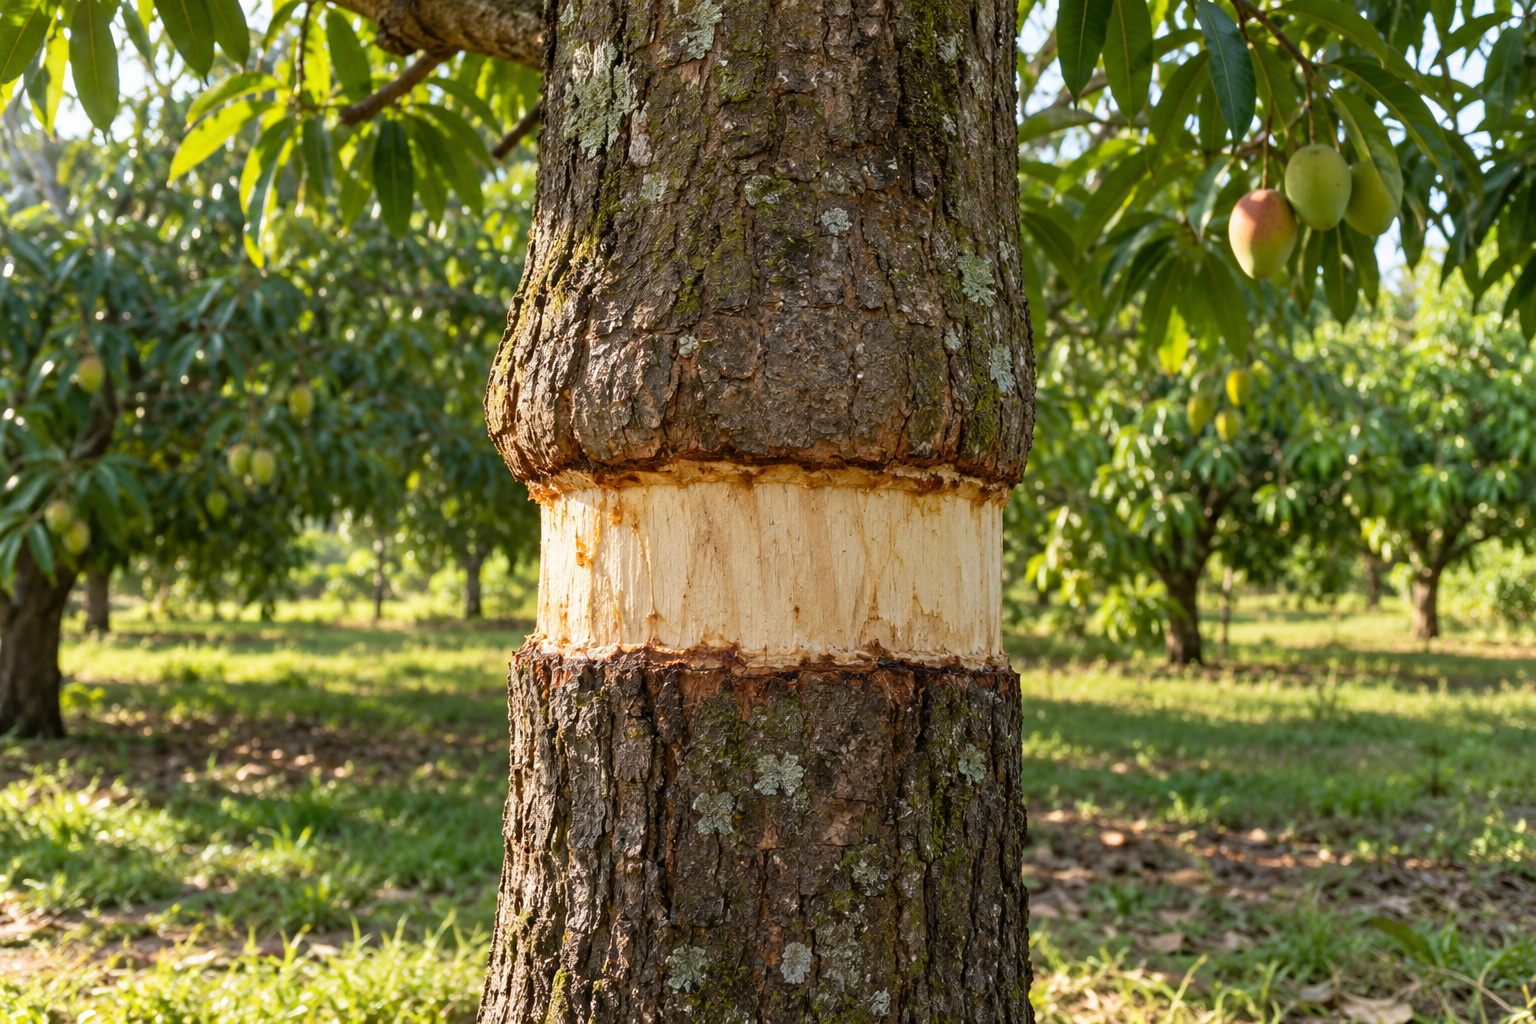
O anelamento. O experimento clássico que separa xilema de floema é o anelamento de Malpighi, descrito pelo anatomista italiano Marcello Malpighi no século XVII: retira-se da árvore um anel completo de casca, até o lenho, sem ferir o xilema. A casca leva consigo o floema, que fica logo por dentro dela; o xilema, no lenho, continua intacto. Resultado: as folhas acima do anel não murcham, porque a água continua subindo pelo xilema; a casca logo acima do anel incha, porque o açúcar que descia se acumula ali; e a parte abaixo do anel, inclusive a raiz, deixa de receber açúcar e, meses depois, morre, levando a árvore inteira junto. Se o anel for raso (só a casca externa, sem atingir o floema), nada acontece; se for muito profundo e cortar o xilema, as folhas murcham em horas. Pulgões e cigarrinhas confirmam o modelo de outro jeito: cravam o estilete num tubo crivado e a seiva jorra sob pressão, sem que o inseto precise sugar; o excesso é expelido como gotas doces.
Fluxo de pressão e anelamento. Na fonte, carregar sacarose puxa água do xilema e sobe a pressão; no dreno, descarregar baixa a pressão; a seiva corre da pressão alta para a baixa. Retirar um anel de casca corta o floema e poupa o xilema: as folhas seguem verdes, o açúcar se acumula acima do corte e a raiz morre de fome. Fora de escala. Diagrama autoral.
Água em excesso e em falta: hidrófitas, xerófitas e as pseudoxerófitas do Cerrado
Cada ambiente puxa a fisiologia da água numa direção. As hidrófitas, plantas de água (vitória-régia, aguapé, elódea), têm cutícula fina, estômatos na face superior das folhas flutuantes ou nenhum estômato nas submersas, tecidos cheios de ar (aerênquima) para flutuar e levar oxigênio à raiz, e xilema reduzido, porque não há o que puxar quando a água está em volta. As xerófitas, plantas de ambientes secos (cactos, plantas da Caatinga), fazem o contrário: cutícula espessa, poucos estômatos, muitas vezes afundados em criptas e protegidos por pelos, folhas reduzidas a espinhos ou transformadas em reservatórios, caule verde e suculento, metabolismo CAM, raízes muito extensas ou muito profundas. As plantas de clima temperado derrubam as folhas no inverno para não transpirar quando a água do solo congela, a “seca fisiológica” do item de 2011. As árvores do Cerrado têm cara de xerófita (folhas duras e coriáceas, casca grossa, tronco tortuoso), mas suas raízes alcançam água no subsolo o ano inteiro: são pseudoxerófitas, e as feições duras respondem mais ao solo pobre e ácido e ao fogo do que à falta de água. A casca grossa de súber protege ao mesmo tempo contra a perda de água e contra o fogo, o que a prova considerou certo em 2023 (PAS 2, item 54). Essa história, com o xilopódio e o regime de fogo, está em Cerrado.
Hormônios: cinco fichas que a prova troca de lugar
A planta não tem glândulas nem sistema nervoso, e mesmo assim coordena crescimento, curvatura, floração, amadurecimento e dormência. Faz isso com fitormônios (hormônios vegetais): substâncias orgânicas produzidas pela própria planta, em quantidades minúsculas, em um tecido, e que agem em outro, regulando crescimento e desenvolvimento. Não é preciso glândula para ser hormônio; o que define o hormônio é ser produzido em um lugar, agir em outro e atuar em concentração muito baixa. O efeito depende da concentração e do tecido: a mesma dose de auxina que alonga o caule inibe a raiz. Cinco grupos clássicos cobrem o que a escola e a prova pedem.
hormônio
onde se produz
o que faz
exemplo que a prova usa
auxina (AIA)
ápice do caule, folhas jovens, sementes em formação
alongamento celular; fototropismo e gravitropismo; dominância apical; formação de raízes; desenvolvimento do fruto; em excesso, inibe a raiz
tomateiro torto para a janela; poda que ramifica; estaquia; herbicida 2,4-D
giberelina
ápice do caule, sementes, folhas jovens
alongamento do caule (entre os nós); quebra de dormência e germinação; crescimento do fruto; floração em algumas
uva sem semente maior; semente que germina
citocinina
raiz, principalmente; frutos e sementes jovens
divisão celular; brotação das gemas laterais (contra a auxina); retarda o envelhecimento das folhas
raiz que “avisa” o caule para brotar; folha que não amarela
etileno
frutos amadurecendo, tecidos velhos, feridas
amadurecimento dos frutos climatéricos; queda de folhas, flores e frutos (abscisão); senescência
banana no saco com a maçã; câmara de climatização
ácido abscísico (ABA)
folhas e raízes sob estresse; sementes
o freio: dormência de sementes e gemas; fecha estômatos na falta de água
semente que espera a chuva; folha que fecha o estômato antes de murchar
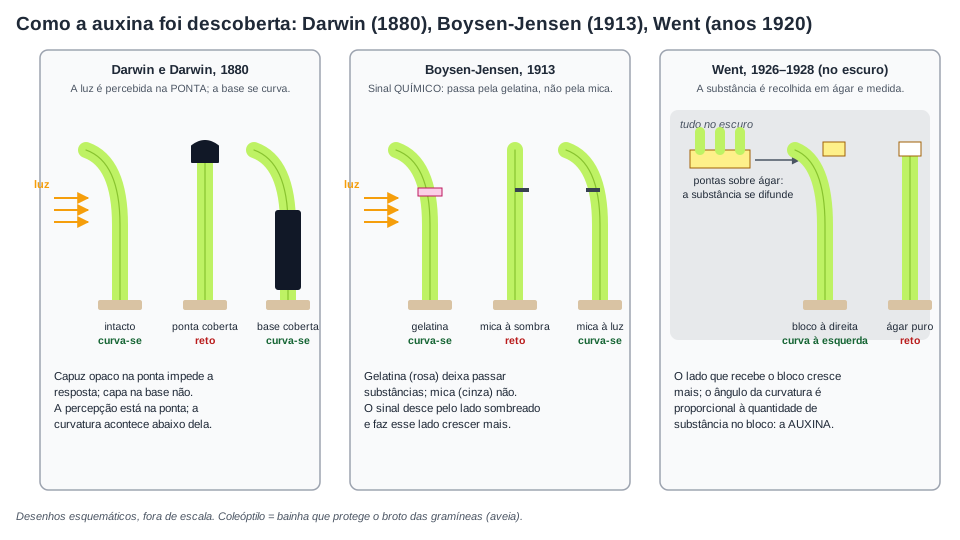
Auxina: a descoberta em três experimentos. Em 1880, Charles Darwin e seu filho Francis publicaram The Power of Movement in Plants, em que descreveram a curvatura de plântulas em direção à luz e mostraram, com coleóptilos de gramíneas (a bainha que protege o broto), que a luz é percebida na ponta: coleóptilo com a ponta coberta por um capuz opaco não se curva; coberto na base e com a ponta livre, curva-se. Em 1913, o dinamarquês Peter Boysen-Jensen cortou a ponta e a recolocou sobre um bloco de gelatina: a curvatura continuou, logo o sinal era uma substância química que atravessa a gelatina; separada por uma lâmina impermeável (mica) do lado sombreado, a curvatura cessava. Nos anos 1920, o holandês Frits Went (experimentos de 1926, tese publicada em 1928) cortou pontas de coleóptilo de aveia, pôs as pontas sobre blocos de ágar para que a substância se difundisse neles, e colocou um bloco de ágar, sem ponta nenhuma, sobre um lado de um coleóptilo decapitado mantido no escuro: o coleóptilo curvou-se para o lado oposto ao bloco, e o ângulo de curvatura era proporcional à quantidade de substância no bloco. A substância ganhou o nome de auxina (do grego auxein, crescer); a principal auxina natural é o ácido indolacético (AIA).
Três experimentos, três conclusões. Darwin: a ponta percebe a luz e a base se curva. Boysen-Jensen: o sinal é químico, atravessa gelatina e não atravessa mica, e desce pelo lado sombreado. Went: a substância pode ser recolhida em ágar e aplicada em outro coleóptilo, no escuro, e o lado que a recebe cresce mais. Diagrama autoral.
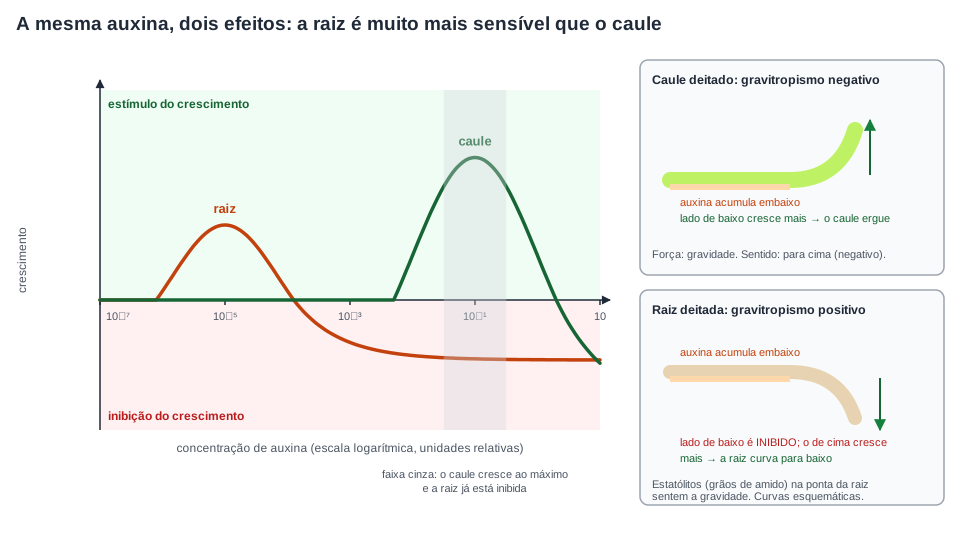
Como a auxina age: ela afrouxa a parede celular e permite que a célula, pressionada pelo turgor, se alongue. No fototropismo, a luz faz a auxina migrar para o lado sombreado do caule; esse lado cresce mais e o caule se curva para a luz (fototropismo positivo). No gravitropismo, a gravidade desloca a auxina para o lado de baixo de um caule deitado: no caule, mais auxina embaixo faz esse lado crescer mais e o caule se ergue (gravitropismo negativo); na raiz, a mesma concentração maior embaixo inibe o crescimento desse lado, o lado de cima cresce mais e a raiz se curva para baixo (gravitropismo positivo). A raiz percebe a gravidade por estatólitos, grãos de amido que se depositam no fundo de células da ponta da raiz. O gráfico da sensibilidade à auxina resume tudo: a concentração que estimula ao máximo o caule já inibe a raiz, e a raiz tem seu ótimo numa concentração muito menor. É o conteúdo do item 68 do PAS 2 de 2015, certo: “As respostas diferenciadas de crescimento da raiz e do caule à auxina são responsáveis pelo fenômeno conhecido como fototropismo, que é positivo para o caule e negativo para a raiz”.
A mesma substância, dois efeitos. A raiz responde a concentrações muito menores que o caule, e a dose que faz o caule crescer ao máximo já inibe a raiz. Por isso, num órgão deitado, a auxina acumulada embaixo ergue o caule e abaixa a raiz. Curvas esquemáticas. Diagrama autoral.
Quatro consequências práticas da auxina aparecem em itens. Dominância apical: a auxina produzida na gema apical desce pelo caule e inibe as gemas laterais; podar a ponta remove a fonte de auxina, as gemas de baixo brotam e a planta fica cheia. O item 95 do PAS 2 de 2014, apoiado numa figura de experimentos de poda, partiu do desenvolvimento de gemas laterais observado numa das plantas e concluiu que a poda regular leva ao desenvolvimento de ramos laterais, “facilitado pela ausência de auxina”: certo, porque remover o ápice remove a fonte do hormônio que segurava as gemas. Enraizamento: a auxina estimula a formação de raízes em estacas; os pós de enraizamento vendidos para estaquia são auxinas sintéticas. Fruto: a auxina produzida pelas sementes em formação estimula o crescimento da parede do ovário; sem fecundação, não há semente, não há auxina, e a flor cai; aplicar auxina em flores não fecundadas produz frutos sem semente (partenocarpia induzida). O item 68 do PAS 2 de 2016 disse exatamente isso, “as auxinas são fitormônios produzidos nas sementes e estão envolvidas na formação dos frutos por promoverem o desenvolvimento das paredes do ovário”, e foi certo. Herbicida: auxinas sintéticas em dose alta, como o 2,4-D, desorganizam o crescimento de plantas de folha larga e as matam, enquanto as gramíneas resistem; é por isso que são usadas contra ervas daninhas em gramados e lavouras de milho e cana. Em 2009, dois itens sobre um texto de revista trataram as “substâncias de crescimento”: citocininas e auxinas são “substâncias reguladoras de crescimento de vegetais” (item 85, certo) e sua distribuição desigual na planta se relaciona com “os movimentos de curvatura dos vegetais (tropismos)” (item 86, certo).
Giberelinas. Descobertas a partir de um fungo (Gibberella) que faz plantas de arroz crescerem demais e tombarem, as giberelinas alongam o caule, sobretudo os entrenós; plantas anãs de ervilha e de milho costumam ser mutantes que não produzem giberelina, e crescem até o tamanho normal se a recebem. Nas sementes, a giberelina produzida pelo embrião ao embeber manda as células de reserva produzir enzimas (amilases) que quebram o amido em açúcar para o embrião: é o sinal da germinação, e o antagonista direto do ácido abscísico. Na agricultura, aplicadas em uvas sem semente (que não têm o hormônio das sementes), aumentam o tamanho das bagas e afrouxam o cacho.
Citocininas. Descobertas em água de coco e em extratos de tecidos em divisão, estimulam a divisão celular (citocinese, daí o nome), produzidas principalmente nas raízes e transportadas pelo xilema. Opõem-se à auxina na gema lateral: a razão auxina/citocinina decide se a gema brota. Também retardam a senescência das folhas; folhas destacadas tratadas com citocinina ficam verdes por mais tempo. Na cultura de tecidos, a proporção entre auxina e citocinina no meio decide se o calo forma raízes ou brotos.
Etileno. O único hormônio gasoso (C₂H₄). Em 1901, o botânico russo Neljubov observou que ervilhas crescidas no laboratório iluminado a gás cresciam tortas e horizontais, e identificou o etileno do gás de iluminação como causa; em 1934, Gane provou que a própria fruta produz etileno. Seu efeito mais conhecido é o amadurecimento: nos frutos climatéricos (banana, maçã, abacate, tomate, manga, mamão, pera), o amadurecimento é um evento disparado por um pico de produção de etileno, acompanhado de pico de respiração; o fruto colhido verde amadurece sozinho e, exposto a etileno de fora, amadurece mais depressa. Nos frutos não climatéricos (laranja, uva, morango, abacaxi, melancia), não há esse pico, e o fruto colhido não amadurece mais, só envelhece. A banana no saco de papel com a maçã madura é o experimento doméstico: o etileno da maçã fica preso no saco e apressa a banana. É também a base das câmaras de climatização: a Embrapa estuda a temperatura, a concentração e o tempo de exposição ao etileno que uniformizam o amadurecimento de bananas colhidas verdes, e o uso de inibidores do etileno (como o 1-metilciclopropeno, 1-MCP, e os absorvedores de etileno) para prolongar a vida de frutos no armazenamento. O etileno também comanda a abscisão, a queda de folhas, flores e frutos, formando a camada de células que se solta na base do pecíolo. O item 70 do PAS 2 de 2016 vestiu o ácido abscísico com a ficha do etileno (“fitormônio gasoso responsável pelo amadurecimento dos frutos”) e foi errado; o nome do ABA vem de abscisão, mas quem comanda a abscisão é principalmente o etileno, e gasoso só o etileno é.
Ácido abscísico (ABA). É o hormônio do freio e do estresse. Mantém a dormência de sementes e de gemas, impedindo que germinem ou brotem fora de hora; sementes de muitas espécies só germinam quando a chuva, o frio ou a luz reduzem o ABA e a giberelina ganha. Sob falta de água, a raiz e a folha produzem ABA, que fecha os estômatos, como a seção dos estômatos mostrou. “Ativado pela luz, estimula o crescimento” é a ficha trocada que o item tipo C de 2017 ofereceu como distrator.
A ficha de um hormônio no nome de outro
Gasoso e amadurece: etileno, não ácido abscísico. Alonga, entorta para a luz e segura as gemas laterais: auxina, não giberelina nem etileno. Freia, faz a semente esperar e fecha estômatos: ácido abscísico, não “estimula o crescimento”. Divide células e faz brotar a gema lateral: citocinina. Quebra a dormência e germina: giberelina. A poda estimula as gemas laterais porque remove auxina; dizer que remove etileno, ou que a poda inibe as gemas, fecha o errado. Em 2017, o item 94 do PAS 2 (tipo C) mostrou coleóptilos iluminados de cima e de lado; a opção correta era a que atribuiu à auxina deslocada para o lado sem luz o alongamento desse lado e o fototropismo; as outras três punham giberelina “volátil que inibe a germinação”, etileno “que alonga” e ácido abscísico “que estimula o crescimento”.
Movimentos: tropismo tem direção, nastismo não
A planta se move, devagar e sem sair do lugar, de duas maneiras que a prova distingue pelo critério da direção do estímulo. Tropismo é um movimento de crescimento orientado pela direção do estímulo: o órgão cresce para o lado de onde vem o estímulo (positivo) ou para o lado oposto (negativo), e o movimento é permanente, porque é crescimento. Nastismo é um movimento que não depende da direção do estímulo e em geral é reversível, por mudança de turgor em células especializadas, não por crescimento. O fototropismo (caule positivo, raiz em geral negativa ou indiferente) e o gravitropismo, ou geotropismo (caule negativo, raiz positiva), são os dois tropismos da seção anterior, mediados pela auxina. O tigmotropismo é o crescimento em resposta ao toque: a gavinha do maracujá ou do chuchu, ao encostar num arame, cresce menos do lado do contato e mais do lado oposto, e se enrola no suporte. O quimiotropismo guia o tubo polínico, que cresce em direção a substâncias liberadas pelo óvulo. O hidrotropismo inclina a raiz para o solo mais úmido.
Nos nastismos, o exemplo clássico é a sensitiva ou dormideira (Mimosa pudica), que fecha os folíolos e abaixa as folhas em segundos ao toque, ao calor ou ao vento: é o seismonastismo (ou tigmonastismo), feito por perda rápida de água em células da base de cada folíolo (o pulvino), seja o toque de que lado for; meia hora depois a folha reabre. O nictinastismo é a abertura e o fechamento de folhas ou flores com o ciclo dia e noite: o feijão e o trevo abaixam as folhas ao anoitecer e as erguem de manhã; a onze-horas abre as flores só com sol. A planta carnívora dioneia fecha a armadilha ao toque de dois pelos sensíveis, também sem direção definida. A regra de decisão: se a resposta aponta para o lado do estímulo (ou para o lado contrário) e envolve crescimento, é tropismo; se a resposta é a mesma qualquer que seja o lado do estímulo e volta atrás, é nastismo. E um aviso de vocabulário: fototropismo (curvar-se para a luz) e fotoperiodismo (florescer conforme a duração do dia) só compartilham o prefixo; o primeiro é movimento, o segundo é calendário.
Fotoperiodismo e fitocromo: a planta mede a noite para florescer
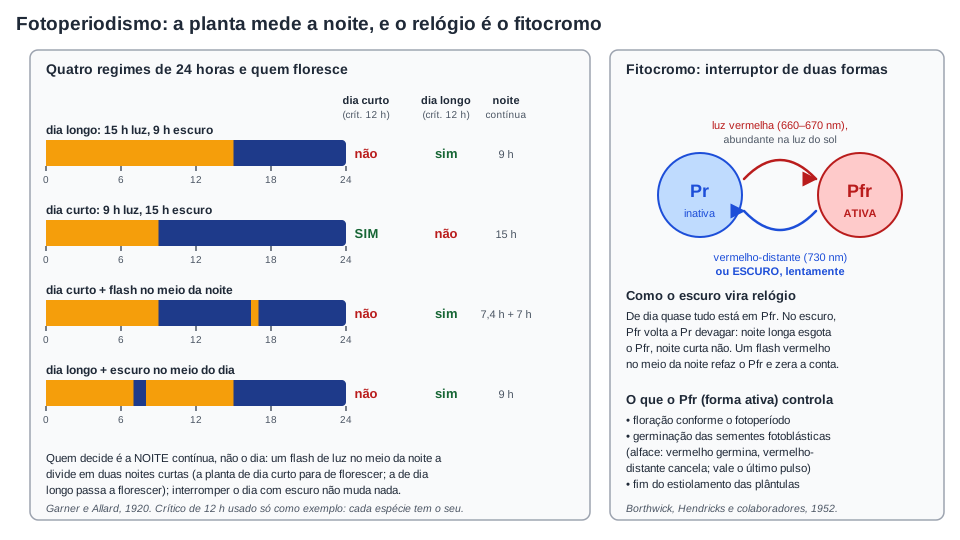
Muitas plantas florescem numa época fixa do ano, e o que lhes diz a época é a duração do dia e da noite, o fotoperíodo. O fenômeno foi descoberto em 1920 por W. W. Garner e H. A. Allard, do Departamento de Agricultura dos Estados Unidos, estudando uma variedade de tabaco que não florescia no verão e uma soja que florescia na mesma data independentemente de quando fosse plantada; eles mostraram, com estufas escurecidas, que a variável era a duração do dia. Três categorias saem daí. Plantas de dia curto florescem quando o período de luz fica abaixo de um valor máximo, o fotoperíodo crítico: crisântemo, flor-de-papagaio (bico-de-papagaio, a planta de Natal), morangueiro, café, muitas sojas. Plantas de dia longo florescem quando a luz supera um mínimo crítico: espinafre (cerca de 13 horas), alface, trigo, aveia, cevada, rabanete. Plantas neutras (indiferentes) florescem em qualquer fotoperíodo, decididas por idade ou tamanho: tomate, milho, pepino, feijão, arroz em muitas variedades. O fotoperíodo crítico é próprio de cada espécie e variedade, e nada tem a ver com 12 horas: uma planta de dia longo com crítico de 9 horas e uma de dia curto com crítico de 14 horas florescem ambas com 11 horas de luz.
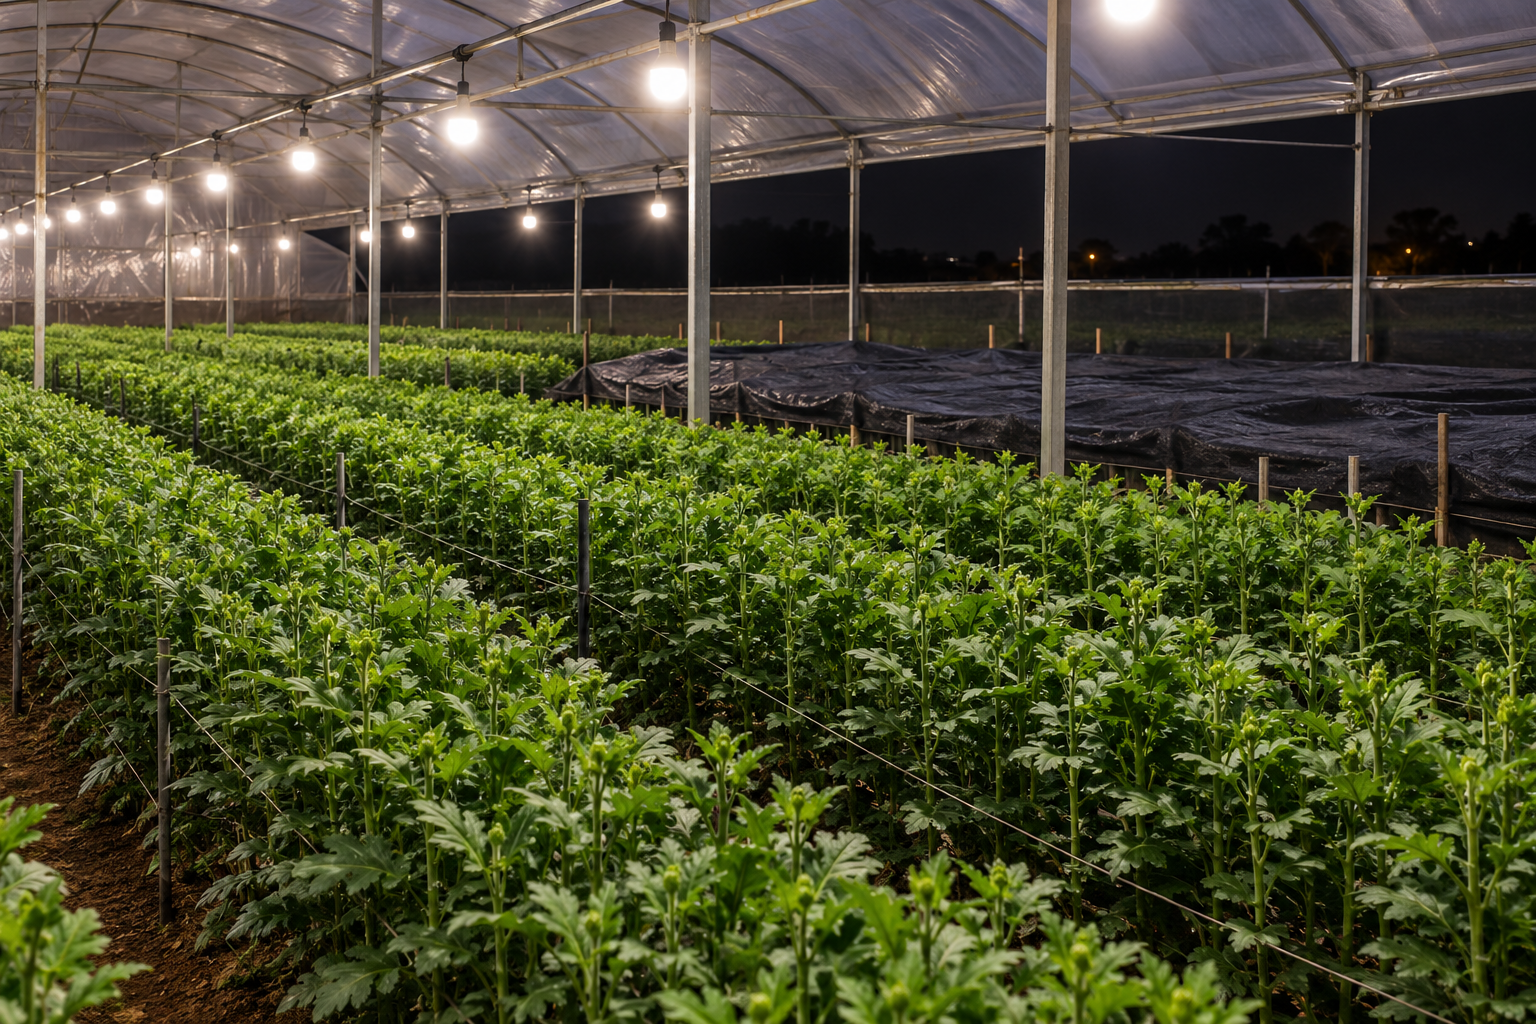
O nome engana. A planta não mede o dia; mede a noite. A prova clássica é a interrupção da noite: uma planta de dia curto mantida em dias curtos deixa de florescer se a noite longa for cortada por alguns minutos de luz no meio; uma planta de dia longo em dias curtos passa a florescer com a mesma interrupção. Interromper o dia com alguns minutos de escuro não muda nada. Por isso “planta de dia curto” é, com mais rigor, “planta de noite longa”. A percepção da luz é feita na folha, e o sinal viaja até a gema: uma única folha exposta ao fotoperíodo certo basta para a planta inteira florescer, e o estímulo passa por enxertia de uma planta induzida a outra não induzida. Produtores usam isso o ano todo: lâmpadas acesas à noite atrasam a floração do crisântemo até a data de venda; cobrir as plantas no fim da tarde a antecipa.
Fitocromo: o interruptor que lê a cor da luz
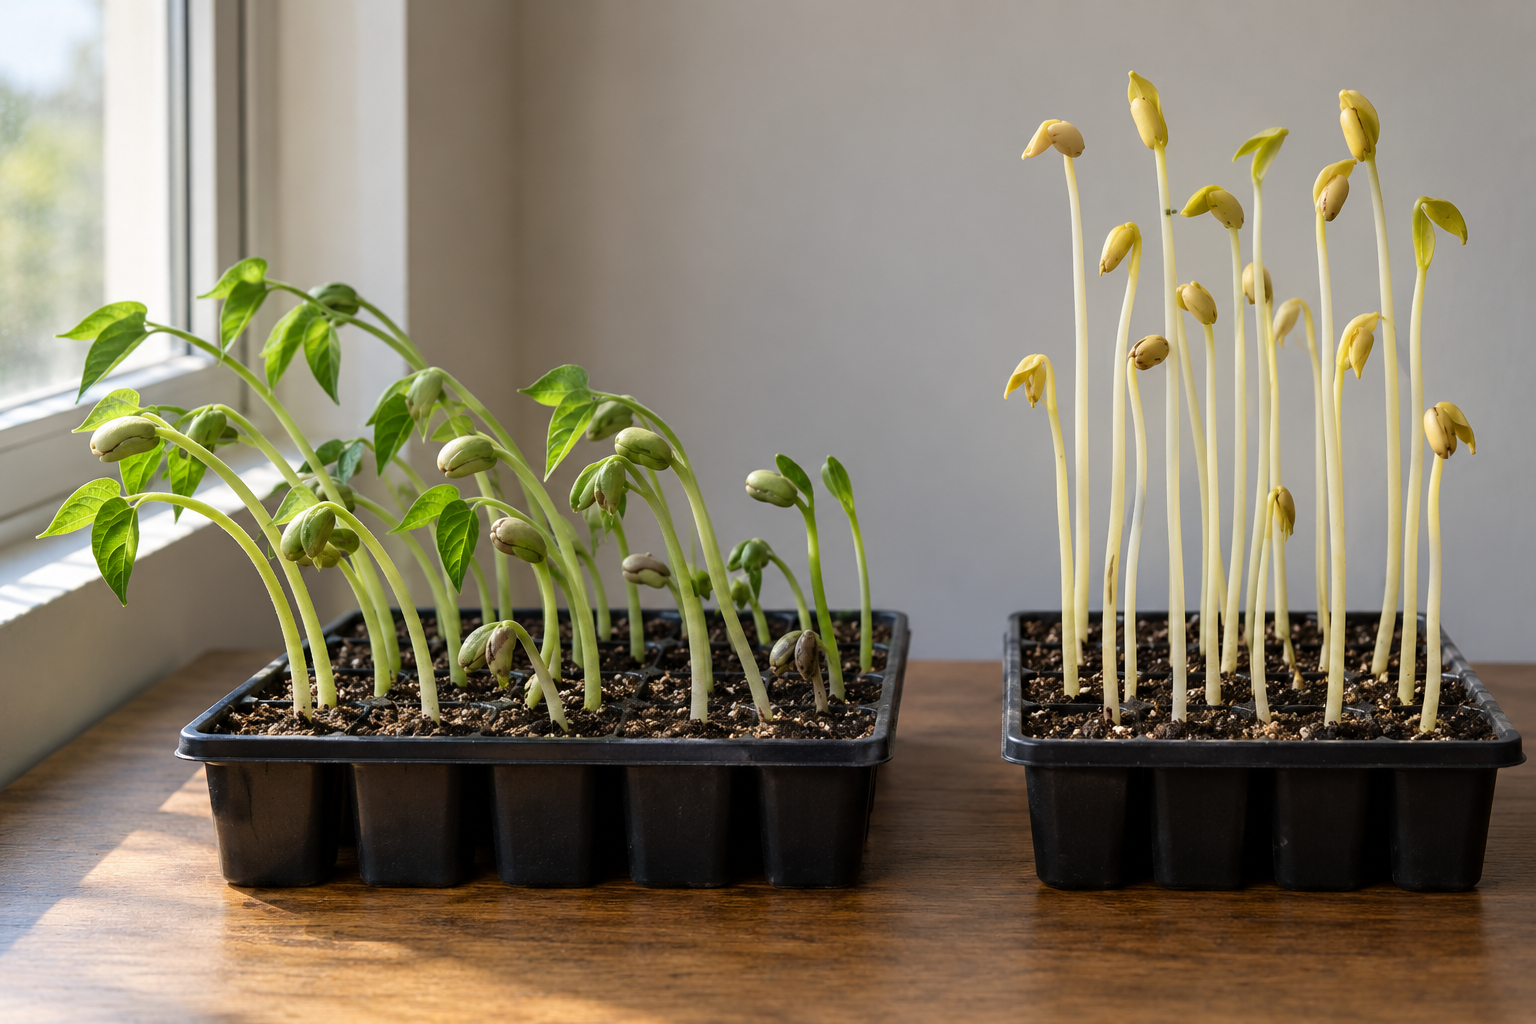
O pigmento que mede a noite é o fitocromo, uma proteína azulada que existe em duas formas interconversíveis. A forma Pr absorve luz vermelha (em torno de 660 a 670 nm) e se converte na forma Pfr; a forma Pfr absorve vermelho-distante (em torno de 730 nm) e volta a Pr. A luz do sol tem muito vermelho, e durante o dia a maior parte do fitocromo está na forma Pfr, a forma ativa. No escuro, o Pfr se converte lentamente de volta em Pr. O tempo que essa conversão leva é o relógio: uma noite longa esgota o Pfr, uma noite curta não. Em 1952, Harry Borthwick, Sterling Hendricks e colaboradores, também do Departamento de Agricultura dos Estados Unidos, demonstraram a reversibilidade com sementes de alface: um pulso de vermelho faz as sementes germinarem; um pulso de vermelho-distante logo depois cancela o efeito; vermelho de novo restaura; e o que decide é sempre o último pulso. O fitocromo governa também a germinação de sementes que precisam de luz (fotoblásticas positivas), o estiolamento (plântulas no escuro ficam compridas, finas e amareladas, até que a luz vermelha ative o Pfr e o crescimento normalize) e a resposta à sombra de outras plantas, cuja folhagem filtra o vermelho e deixa passar o vermelho-distante.
A planta mede a noite. Um flash de luz no meio de uma noite longa a transforma, para a planta, em duas noites curtas: a planta de dia curto deixa de florescer e a de dia longo passa a florescer. Interromper o dia com escuro não muda nada. O relógio é o fitocromo, que a luz vermelha converte na forma ativa Pfr e que o escuro e o vermelho-distante devolvem a Pr. Diagrama autoral.
Exemplo resolvido: quem floresce na estufa. Uma estufa recebe 11 horas de luz e 13 de escuro por dia. Nela estão espinafre (dia longo, crítico de 13 h), aveia (dia longo, crítico de 9 h), crisântemo (dia curto, crítico de 15 h), morangueiro (dia curto, crítico de 12 h) e tomate (neutro); os valores críticos são dados do exercício, não medidas de referência das espécies. Quem floresce? Regra: planta de dia longo floresce se luz ≥ crítico; planta de dia curto floresce se luz ≤ crítico; neutra floresce sempre. Espinafre: 11 < 13, não floresce. Aveia: 11 ≥ 9, floresce. Crisântemo: 11 ≤ 15, floresce. Morangueiro: 11 ≤ 12, floresce. Tomate: floresce. Se a estufa passasse a 13 h 30 min de luz, o espinafre passaria a florescer (13,5 ≥ 13), a aveia continuaria, o crisântemo continuaria (13,5 ≤ 15), mas o morangueiro pararia (13,5 > 12). Foi com uma tabela desse tipo e uma estufa de 11 horas que o PAS 2 de 2007 montou três itens; a conta é só comparar cada espécie com o próprio crítico, e o erro clássico é supor que “dia curto” significa menos de 12 horas.
Germinação e dormência: a semente espera, e não está morta
A semente madura e seca está em vida latente: metabolismo reduzido ao mínimo, mas não ausente; ela respira muito devagar, e por isso sementes guardadas perdem viabilidade com os anos. Germinar é retomar o metabolismo em ritmo pleno e fazer o embrião crescer até romper o tegumento. Quatro fatores externos governam a germinação. Água: a embebição incha a semente, rompe ou amolece o tegumento, ativa as enzimas e dissolve as reservas; é o primeiro passo, e sem ela nada começa. Oxigênio: a germinação é um período de respiração intensa, e sementes afogadas em água sem ar não germinam. Temperatura: cada espécie tem uma faixa, com ótimo em geral entre 20 e 30 °C para plantas tropicais; frio demais ou calor demais travam as enzimas. Luz: só para algumas espécies; sementes fotoblásticas positivas (alface, muitas gramíneas e ervas pequenas) exigem luz, pelo fitocromo; fotoblásticas negativas (algumas cebolas e cucurbitáceas) germinam melhor no escuro; a maioria é indiferente. Dizer que “toda semente precisa de luz para germinar” é errado: feijão, milho e a maioria das grandes sementes germinam enterradas e no escuro. Dentro da semente, a giberelina produzida pelo embrião ao embeber comanda a quebra das reservas e o ácido abscísico é o freio que a embebição e as condições certas precisam vencer.
Em 2023, o item 53 do PAS 2 afirmou que a entrada de água na semente “é necessária para a retomada das atividades metabólicas, que não ocorrem na semente seca, assim como para a dilatação da semente e rompimento da casca”: errado, porque a semente seca tem metabolismo mínimo, não nulo; o resto da frase está correto, e é a palavra “não ocorrem” que decide.
Dormência é um bloqueio interno: a semente viável, em condições externas favoráveis, não germina. Há dois tipos principais. Na dormência tegumentar, o tegumento é impermeável à água ou ao oxigênio, ou é duro demais para o embrião romper; a quebra é física (escarificação): atrito com areia, fogo, choque térmico, passagem pelo tubo digestivo de um animal, ataque de fungos no solo. Na dormência fisiológica, o embrião está travado por inibidores (ácido abscísico), e a quebra é um sinal: frio prolongado (estratificação, nas sementes de clima temperado), luz, lavagem dos inibidores pela chuva, ou simplesmente tempo. A dormência é uma vantagem: espalha a germinação no tempo e no espaço e impede que a semente germine numa chuva isolada no meio da seca. No Cerrado, sementes de tegumento impermeável de várias leguminosas têm a dormência quebrada pelo choque térmico do fogo, que fissura o tegumento e deixa a água entrar; o fogo não “dá vida” à semente, apenas remove a barreira. Mas nem toda semente do bioma precisa de fogo, e várias morrem com calor demais; a relação entre fogo e germinação no Cerrado, com os experimentos que a mediram, está em Cerrado.
Exemplo resolvido: a conta do viveiro. Um viveiro de restauração semeou 400 sementes de barbatimão, espécie de tegumento impermeável. Sem tratamento, 22 % germinaram. Num lote idêntico com choque térmico controlado, a taxa triplicou. Quantas sementes germinaram no segundo lote? Taxa com choque térmico: 3×22%=66%. Sementes germinadas: 0,66×400=264. Conferência pela biologia: o resultado é o esperado, porque o calor fissurou o tegumento e permitiu a embebição; o resultado seria suspeito se a taxa tivesse caído a zero (calor demais mata o embrião) ou passado de 100 %.
Como ler gráficos e esquemas de fisiologia vegetal
A prova de fisiologia vegetal é, em boa parte, prova de leitura de figura. Quatro figuras cobrem quase tudo.
A curva de luz (taxa em função da intensidade luminosa). Localize três coisas: o valor no escuro (negativo, é a respiração), o cruzamento com o zero (ponto de compensação) e o patamar (saturação). Se duas curvas aparecem, a que cruza o zero mais à esquerda é a de sombra; a que chega mais alto é a de sol. Se o enunciado dá a troca líquida, a bruta é a líquida mais a respiração. Se a curva mostra o oxigênio liberado em vez do CO₂ absorvido, a leitura é a mesma, porque as proporções dos gases são iguais.
A curva de 24 horas (troca de CO₂ ao longo do dia). Abaixo do zero, só respiração; os dois cruzamentos com o zero, de manhã e à tarde, são pontos de compensação; a área acima do zero menos a área abaixo é o carbono que a planta acumula no dia. Um aumento de CO₂ liberado quando a luz aumenta não acontece na folha, porque a fotossíntese consome o gás (o item 32 de 2013 cobrou isso).
Transpiração e absorção ao longo do dia. A curva de absorção pela raiz tem a mesma forma que a de transpiração, mas deslocada para mais tarde; o espaço entre elas de manhã e à tarde é o déficit que murcha a planta; à noite a absorção supera e repõe. Se o gráfico comparar dias, o dia mais quente, seco e ventoso tem a curva de transpiração mais alta; o dia nublado e úmido, a mais baixa.
Experimentos de auxina e de poda. Em esquemas de coleóptilos, pergunte: quem foi coberto, cortado, separado por mica ou por gelatina? Capuz na ponta impede a percepção; mica do lado sombreado impede a descida do sinal; gelatina não impede; ágar que esteve em contato com a ponta carrega auxina, e o lado que o recebe cresce mais, curvando o coleóptilo para o lado oposto. Em esquemas de poda, a planta controle (com ápice) tem gemas laterais dormentes; a planta decapitada ramifica; a decapitada com auxina aplicada no corte volta a não ramificar. Em gráficos de concentração de auxina, há sempre duas curvas, raiz e caule, e a da raiz está sempre à esquerda (mais sensível); na faixa em que o caule tem o máximo, a raiz está inibida.
Exemplo resolvido: medir o efeito da auxina. Em um experimento, 20 plântulas de feijão decapitadas receberam no corte pasta de lanolina pura, e outras 20, lanolina com auxina. Após uma semana, as gemas laterais do primeiro grupo cresceram em média 3,2 cm; as do segundo, 0,8 cm. Qual foi a redução percentual do crescimento das gemas laterais causada pela auxina, e o que o resultado mostra? Redução: 3,2−0,8=2,4 cm; em porcentagem do controle, 3,22,4=0,75, ou 75 %. A auxina aplicada no lugar do ápice removido restabeleceu a dominância apical: a gema apical inibe as laterais por meio da auxina, e não por sombreamento ou por consumo de nutrientes, porque o único fator que mudou entre os grupos foi a presença do hormônio. Conferência: o grupo com lanolina pura serve de controle do procedimento, mostrando que a pasta em si não inibe nada.
Os erros que a prova planta
Onze erros, com a correção e, quando houver, o item que os usou.
“A planta respira só à noite” ou “respira de dia e fotossintetiza à noite”. Respira sempre; fotossintetiza quando há luz; de dia faz as duas. O item 65 do PAS 1 de 2018 cobrou o acerto (“alimento consumido na respiração celular durante o dia e durante a noite”, certo).
“Fotossíntese e respiração ocorrem no mesmo local da célula”. Cloroplasto e mitocôndria. Item 34 de 2010, errado.
“A luz aumenta a liberação de CO₂ pela folha”. A fotossíntese consome CO₂; com luz a folha libera menos. Item 32 de 2013, errado.
“O balanço de O₂ é positivo porque as proporções dos gases são diferentes nas duas reações”. As proporções são iguais (6 e 6); o saldo positivo é de quantidade: a planta fotossintetiza mais do que respira. Item 66 do PAS 1 de 2018, errado.
“A raiz suga a água” ou “a seiva sobe por capilaridade”. A água entra por osmose e sobe puxada pela transpiração (coesão-tensão); a capilaridade dá poucos metros; a pressão da raiz só se nota em ar úmido (gutação).
“O estômato se abre para a planta respirar” e “estômatos sempre abertos”. Abre pela demanda de CO₂ e pela água disponível; fecha à noite e na seca. Item 74 de 2017, errado.
“As plantas eliminam água unicamente pelas folhas” e “a transpiração depende de por onde a planta absorve água”. Caules jovens, flores e frutos também transpiram; a intensidade depende do ar e dos estômatos. Itens 109 e 110 de 2008, ambos errados.
“Seiva bruta sobe no floema” ou “a seiva elaborada sempre desce”. Bruta no xilema, só para cima; elaborada no floema, da fonte ao dreno, em qualquer sentido. O acúmulo de açúcar na folha indica fluxo bloqueado, não aumentado (item 28 de 2011, errado); o mecanismo do fluxo foi descrito certo em 2013 (item 95).
“A planta não tem hormônio porque não tem glândula”. Hormônio é substância produzida num lugar e ativa em outro, em dose mínima; glândula não é requisito. Itens 85 e 86 de 2009, certos.
A ficha trocada. “Ácido abscísico gasoso que amadurece frutos” (item 70 de 2016, errado); “giberelina volátil que inibe germinação”, “etileno que alonga”, “abscísico que estimula crescimento” (distratores do item 94 de 2017); “a poda inibe as gemas laterais” ou “remove etileno” (a poda remove auxina e libera as gemas: item 95 de 2014, certo). “O fruto amadurece sozinho, sem hormônio” (o etileno comanda, e vem de dentro do fruto) e “o etileno é um inseticida” (é hormônio, não veneno) também aparecem.
“Fototropismo é fotoperiodismo”, “planta de dia curto floresce com menos de 12 horas”, “toda semente precisa de luz” e “a semente seca não tem metabolismo”. Movimento não é calendário; o crítico é de cada espécie e a planta mede a noite; só as fotoblásticas positivas exigem luz; a semente seca está em vida latente, com metabolismo mínimo (item 53 de 2023, errado).
Como a prova cobra a fisiologia vegetal
Nas provas do PAS 2 de 2007 a 2023, a fisiologia vegetal rendeu 35 itens, quase todos de julgamento Certo/Errado e um tipo C (2017); 22 deles, os que não dependem de figura ou tabela ausente, estão reproduzidos nesta página, mais 2 do Cerrado e 2 da 1ª etapa. Por tema: o balanço fotossíntese e respiração e as vias C₃, C₄ e CAM apareceram em 2007 (itens 50, 51 e 52), 2008 (73), 2010 (34), 2011 (27, 30, 33 e 34) e 2013 (31 e 32); a água na planta, em 2008 (109, 110 e 111), 2011 (28 e 29), 2013 (95) e 2017 (74); os hormônios, o fotoperiodismo e a semente, em 2007 (92, 93 e 94), 2009 (85 e 86), 2014 (92 a 95), 2015 (67 a 69), 2016 (68 e 70), 2017 (94), 2022 (86) e 2023 (53). Na 1ª etapa, o balanço da planta entrou em 2018 (itens 65 e 66). O metabolismo dominou a primeira metade da série; depois de 2017, o eixo da botânica na prova mudou para grupos, órgãos e Cerrado, e a fisiologia voltou pela semente em 2022 e 2023. O padrão de redação é constante: um texto-base de revista (o outono, árvores que bebem neblina, a cana, o plástico do caroço da manga, substâncias de crescimento) e itens que reescrevem um mecanismo com um termo trocado: o gás que a luz faz liberar, o local do processo, o hormônio que amadurece, o verbo da poda. O método de leitura é conferir cada substantivo e cada verbo contra a ficha: processo, organela, horário, hormônio, sentido do fluxo. Modalizadores honestos (“certas árvores”, “algumas espécies”, “pode”) costumam acompanhar itens certos; absolutizações (“unicamente”, “permanentemente”, “não ocorrem”) pedem que se procure o contraexemplo.
O essencial em meia página
Balanço. Fotossíntese no cloroplasto, só com luz; respiração na mitocôndria, sempre. Fotossíntese líquida = bruta − respiração. Ponto de compensação: líquida zero, os dois processos rodando. Curva de luz: negativa no escuro, cruza o zero no ponto de compensação, satura quando o CO₂ (ou a temperatura) passa a limitar (Blackman, 1905). Planta de sombra compensa cedo e satura cedo; planta de sol, o contrário. C₄ e CAM têm ponto de compensação de CO₂ baixo; CAM abre estômatos à noite. Proporções O₂/CO₂ iguais nos dois processos; saldo positivo é quantidade.
Nutrição. Massa vem do ar (CO₂) e da água; do solo vêm sais: N (proteínas, clorofila, como nitrato ou amônio), P (ATP, DNA, membranas), K (turgor e estômatos), Mg (clorofila), Ca (parede). Micronutrientes em dose ínfima, cofatores.
Água. Entra na raiz por osmose pelos pelos absorventes; vias apoplástica e simplástica; a estria de Caspary obriga a passar pela membrana da endoderme (seleção, transporte ativo). Sobe pelo xilema morto puxada pela transpiração: coesão-tensão (Dixon e Joly, 1894). Pressão da raiz e capilaridade são coadjuvantes; gutação é água líquida pelos hidatódios de madrugada. Estômato abre por turgor das células-guarda, com entrada de K⁺ e água; luz e CO₂ baixo abrem; escuro, CO₂ alto, falta de água (ABA) e calor fecham; aberto de dia e fechado à noite, exceto CAM. Transpiração sobe com luz, calor, ar seco e vento; absorção acompanha com atraso; murcha ao meio-dia é déficit temporário.
Floema. Células vivas (tubos crivados e companheiras); seiva elaborada da fonte ao dreno, em qualquer direção; fluxo de pressão (Münch, 1930): carregar açúcar na fonte puxa água do xilema e sobe a pressão; descarregar no dreno baixa. Anelamento (Malpighi): corta o floema, poupa o xilema; folhas verdes, casca incha acima, raiz morre.
Hormônios. Auxina (Darwin 1880, Boysen-Jensen 1913, Went anos 1920): alonga, fototropismo e gravitropismo, dominância apical, raízes em estacas, fruto, 2,4-D; raiz é mais sensível que o caule e é inibida pela dose que estimula o caule. Giberelina: alonga entrenós, germina (amilase), uva sem semente. Citocinina: divide células, brota gema lateral, retarda senescência. Etileno: gasoso, amadurece climatéricos (banana, maçã, abacate, tomate), abscisão; câmaras de climatização e 1-MCP. ABA: dormência, fecha estômatos, antagonista da giberelina.
Movimentos, calendário e semente. Tropismo tem direção e é crescimento (foto, gravi, tigmo); nastismo não tem direção e é turgor reversível (sensitiva, nictinastismo). Fotoperiodismo (Garner e Allard, 1920): dia curto floresce com luz ≤ crítico, dia longo com luz ≥ crítico, neutra sempre; a planta mede a noite contínua; fitocromo Pr (vermelho) ⇄ Pfr ativo (vermelho-distante e escuro revertem; Borthwick e Hendricks, 1952). Germinação: água, O₂, temperatura, luz em algumas; semente seca em vida latente, metabolismo mínimo; dormência tegumentar quebra por escarificação (fogo, animal), fisiológica por frio, luz ou lavagem do ABA.
Exercícios temporariamente indisponíveis
Não foi possível consultar o banco de questões. O conteúdo da aula continua disponível.
Flashcards temporariamente indisponíveis
Não foi possível consultar os cartões de revisão.
Transpiração vegetal - Biologia - Ensino Médio
Canal Futura · 10:40
Introdução. Em pouco mais de dez minutos, a aula do Canal Futura para o ensino médio apresenta a transpiração como a evaporação da água na superfície das folhas pelos estômatos e os fatores que a alteram. É o conteúdo das seções “Estômatos: o dilema de abrir para o CO₂ e perder água” e do gráfico de transpiração ao longo do dia; assista antes de ler e anote, para cada fator citado, se ele aumenta ou diminui a perda de água.
Fisiologia Vegetal - Aula 02 - Transporte de seivas
UNIVESP · 18:37
Aprofundamento. Aula da disciplina Fisiologia Vegetal da licenciatura em Biologia da Univesp (professor responsável Marcelo Tadeu Motokane), sobre o transporte das seivas bruta e elaborada. Cobre, em nível universitário introdutório, as seções “Da raiz ao xilema” (coesão-tensão) e “Floema: o açúcar vai da fonte ao dreno” (fluxo de pressão). Assista depois de ler as duas seções e compare o vocabulário: potencial hídrico, tensão, carregamento e descarregamento.
Amadurecimento de bananas: conheça o processo de climatização
Epagri TV · 9:03
Aplicação. Vídeo da Epagri (empresa de pesquisa agropecuária de Santa Catarina) sobre a climatização de bananas, o procedimento que induz e uniformiza o amadurecimento de frutos colhidos verdes com etileno em câmaras de temperatura controlada. É a ficha do etileno da seção “Hormônios: cinco fichas que a prova troca de lugar” aplicada na prática: observe a temperatura, o tempo de exposição e por que a banana responde ao gás (fruto climatérico).
Resumão do Vitão - Botânica - Hormônios Vegetais + Resolução de 5 exercícios
QUIBIO com Vitor Considera · 30:34
Resolução de questões. Depois de um resumo dos fitormônios, o professor resolve quatro questões sobre auxinas (dominância apical, tropismos, experimentos) e uma sobre os demais hormônios, com minutagem na descrição. Use depois das seções de hormônios e de leitura de gráficos: pause em cada enunciado, aplique a ficha de cada hormônio e só então compare com a resolução.
A planta integra obtenção de água, trocas gasosas, distribuição de açúcares e respostas ao ambiente.A curva de luz. No escuro só há respiração, por isso a troca líquida começa negativa. Cada curva cruza o zero no seu ponto de compensação e se achata na saturação, onde a luz deixa de ser o fator limitante. A planta de sombra respira menos e compensa com pouca luz, mas satura cedo; a planta de sol precisa de mais luz para compensar e aproveita o sol forte. Curvas esquemáticas, sem unidades reais. Diagrama autoral.O caminho da água. Ela entra na raiz por osmose, passa obrigatoriamente pela membrana das células da endoderme (a estria de Caspary bloqueia a via pelas paredes) e sobe pelo xilema morto puxada pela evaporação na folha. A coluna não se rompe porque as moléculas de água se atraem (coesão) e aderem às paredes do vaso. Pressão da raiz e capilaridade existem, mas não levam água ao alto de uma árvore. Fora de escala. Diagrama autoral.O estômato abre quando as células-guarda acumulam potássio e ganham água por osmose, e fecha quando o perdem. Luz e CO₂ baixo abrem; escuro, CO₂ alto, falta de água (via ácido abscísico) e calor fecham. As plantas CAM invertem o horário. Fora de escala. Diagrama autoral.Transpiração e absorção num dia de sol. A transpiração dispara quando os estômatos abrem e o ar aquece; a absorção pela raiz segue a mesma forma, mas atrasada, porque a raiz só repõe o que a folha já perdeu. Entre as duas curvas, de manhã até o meio da tarde, a folha perde mais do que recebe e murcha; à noite a absorção supera e a planta recupera o turgor. Curvas esquemáticas. Diagrama autoral.Fluxo de pressão e anelamento. Na fonte, carregar sacarose puxa água do xilema e sobe a pressão; no dreno, descarregar baixa a pressão; a seiva corre da pressão alta para a baixa. Retirar um anel de casca corta o floema e poupa o xilema: as folhas seguem verdes, o açúcar se acumula acima do corte e a raiz morre de fome. Fora de escala. Diagrama autoral.Três experimentos, três conclusões. Darwin: a ponta percebe a luz e a base se curva. Boysen-Jensen: o sinal é químico, atravessa gelatina e não atravessa mica, e desce pelo lado sombreado. Went: a substância pode ser recolhida em ágar e aplicada em outro coleóptilo, no escuro, e o lado que a recebe cresce mais, com curvatura proporcional à quantidade. Desenhos esquemáticos, fora de escala. Diagrama autoral.A mesma substância, dois efeitos. A raiz responde a concentrações muito menores que o caule, e a dose que faz o caule crescer ao máximo já inibe a raiz. Por isso, num órgão deitado, a auxina acumulada embaixo ergue o caule e abaixa a raiz. Curvas esquemáticas, sem unidades reais. Diagrama autoral.A planta mede a noite. Um flash de luz no meio de uma noite longa a transforma, para a planta, em duas noites curtas: a planta de dia curto deixa de florescer e a de dia longo passa a florescer. Interromper o dia com escuro não muda nada. O relógio é o fitocromo, que a luz vermelha converte na forma ativa Pfr e que o escuro e o vermelho-distante devolvem a Pr. O crítico de 12 horas é só um exemplo; cada espécie tem o seu. Diagrama autoral.O fototropismo envolve crescimento desigual do caule em resposta à luz, regulado por sinais internos.O etileno participa do amadurecimento de frutos climatéricos. A resposta não é idêntica em todos os tipos de fruto.A abertura estomática favorece entrada de CO₂ e perda de vapor de água. O controle depende das condições e da espécie.A entrada de água participa da retomada do crescimento. Viabilidade, dormência e outras condições também influenciam a germinação.A coesão-tensão ajuda a explicar a ascensão da água em plantas transpirando. O desenho simplifica a estrutura e não está em escala.Cada estômato é um poro entre duas células-guarda. Abertos, deixam entrar CO₂ e sair vapor; fechados, poupam água e param a fotossíntese.Fototropismo e estiolamento lado a lado: na luz lateral, a auxina migra para o lado sombreado e o caule se curva; no escuro, a plântula alonga, amarela e gasta as reservas.O anelamento corta o floema e poupa o xilema: as folhas seguem verdes, o açúcar se acumula acima do corte e a raiz, sem alimento, morre meses depois.O etileno da maçã madura fica preso no saco e apressa a banana, fruto climatérico. As bananas da fruteira, fora do saco, levam dias a mais.Gutação: em noites úmidas, a pressão da raiz empurra água líquida pelos hidatódios das pontas das folhas. Não é orvalho nem transpiração.Produção de crisântemo, planta de dia curto: a luz no meio da noite divide a noite longa e adia a floração; a lona preta alonga a noite e a antecipa. A planta mede a noite, não o dia.Semanas após o fogo: o choque térmico fissurou o tegumento impermeável e deixou a água entrar. O fogo não dá vida à semente; só remove a barreira que impedia a embebição.
Rota PAS 2
Botânica: histologia, morfologia e fisiologia vegetal · PAS 2
Fontes desta página
Os materiais abaixo contribuíram para a explicação e os exemplos deste assunto.
Rota PAS 2 — Botânica: histologia, morfologia e fisiologia vegetal · Fotossíntese e respiração: a planta faz as duas; A água na planta: da raiz ao estômato; Hormônios, flor e semente; Como a banca cobra; Banco de treino
Itens reais do PAS 2 de 2007 a 2023 reproduzidos verbatim; conceitos reorganizados por mecanismo; itens dependentes de texto-base ou figura não reproduzidos ficaram só na prosa.
Rota PAS 2 — Gabarito e resoluções da Parte III de Biologia · Banco de treino (T3, T17)
Gabaritos dos itens reais 2023/53 e 2016/70 reproduzidos no banco de treino.
Biologia EM1 — Capítulo 7: A energia na célula · O que limita a fotossíntese? Luz, gás carbônico, temperatura; O balanço de 24 horas e o ponto de compensação
Fatores limitantes (Blackman, 1905), curva de 24 horas, produtividade líquida e as três consequências do balanço.
Biologia EM1 — Bloco PAS do Capítulo 7 · Texto-base V (PAS 1 2018, itens 65 e 66)
Itens do balanço fotossíntese × respiração na planta, gravados pela página respiracao-celular e reusados aqui por GUID. Fatos históricos e fichas dos hormônios (Darwin e Darwin 1880, Boysen-Jensen 1913, formas Pr/Pfr do fitocromo, tropismos) conferidos fora do repositório em OpenStax Biology 2e, seções 30.5 e 30.6 (openstax.org/books/biology-2e), listado em links.json.