Vinte e nove renas soltas em 1944 em uma ilha sem predadores viraram 6 000 em 1963 e 42 em 1966. O que faz uma população crescer, estacionar, oscilar ou desabar, e como se lê cada um desses comportamentos em um gráfico ou em uma tabela?
O que você vai aprender
Definir população e descrevê-la por tamanho, densidade (bruta e ecológica), distribuição espacial (agregada, uniforme, aleatória), estrutura etária e razão sexual.
Estimar o tamanho de uma população por amostragem em parcelas e por marcação e recaptura (N ≈ M × C ÷ R), e dizer em que sentido a estimativa erra quando uma das premissas do método falha.
Calcular a variação de uma população pelo saldo de natalidade, mortalidade, imigração e emigração, e distinguir número absoluto de taxa per capita (r).
Distinguir crescimento exponencial (curva em J, potencial biótico) de crescimento logístico (curva em S, resistência do meio), e calcular o tamanho de uma população que dobra a intervalos regulares.
Localizar a capacidade de suporte (K) em um gráfico, em uma tabela ou em uma fórmula e explicar por que o acréscimo de indivíduos é máximo em K/2 e nulo em K.
Classificar fatores limitantes como dependentes ou independentes da densidade e explicar por que só os primeiros regulam o tamanho da população.
Ler um gráfico predador–presa (lince e lebre), identificar picos e o atraso entre as curvas, explicar por que o equilíbrio é dinâmico e apontar hipóteses alternativas que a série sozinha não descarta.
Comparar estrategistas r e K e reconhecer os três tipos de curva de sobrevivência (I, II e III), associando cada um a um modo de vida.
Interpretar pirâmides etárias (base larga, barras parecidas, base estreita), descrever as fases da transição demográfica e explicar a inércia demográfica com os dados do Brasil.
Aplicar os conceitos ao manejo de pesca (pirarucu em Mamirauá, rendimento máximo sustentável em K/2), a pragas e espécies invasoras sem inimigos naturais e à conservação de populações pequenas (efeito Allee, corredores).
Julgar itens sobre populações separando o que os dados mostram (o que subiu, o que desceu, onde está o patamar) do que eles não demonstram (a causa), e reconhecer as trocas clássicas: K/2 por K, taxa por número absoluto, potencial biótico por capacidade de suporte.
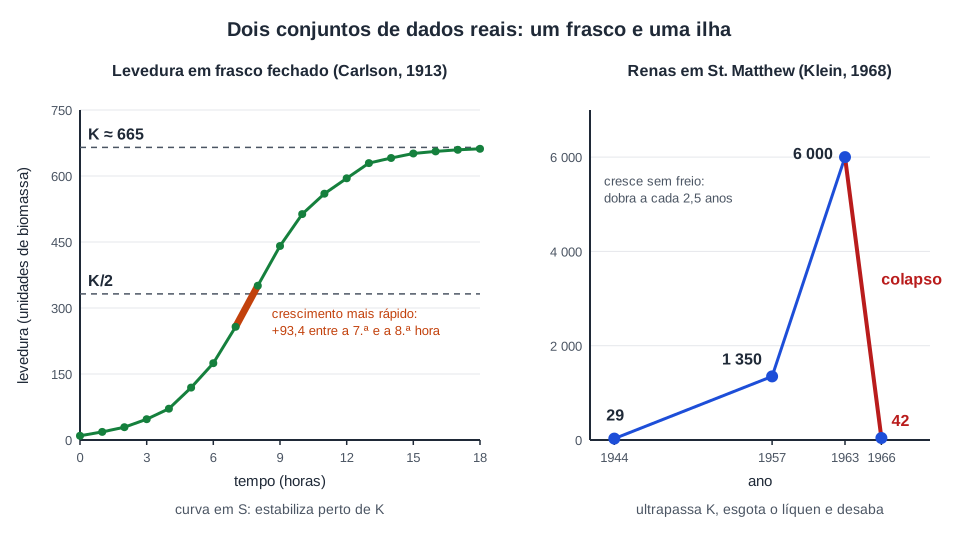
Em 1944, a Guarda Costeira dos Estados Unidos soltou 29 renas, 24 fêmeas e 5 machos, na ilha de St. Matthew, no mar de Bering. A ilha não tinha gente, lobos nem ursos, e estava coberta por um tapete de liquens acumulado ao longo de décadas. Em 1957, um biólogo contou 1 350 renas gordas. No verão de 1963 eram cerca de 6 000. Em 1966, quando David Klein voltou à ilha, encontrou 42: 41 fêmeas e um macho, entre milhares de esqueletos e um chão de líquen raspado até a rocha. Sem predador, sem caçador e sem doença conhecida, a população multiplicou-se por duzentos em dezenove anos e perdeu 99% dos indivíduos em um único inverno.
As quatro contagens contêm o assunto inteiro desta página. De 29 a 6 000, a população cresceu como cresce qualquer população que encontra recurso de sobra: multiplicando. O colapso mostra o que acontece quando o recurso acaba. E o que faltou na ilha, um freio que agisse aos poucos, é o que mantém a maior parte das populações naturais oscilando por décadas sem explodir nem sumir. Para ler essa história é preciso saber contar uma população, saber por quais portas o número muda, reconhecer as duas curvas de crescimento, a curva em J e a curva em S, e localizar nelas a capacidade de suporte.
A página segue essa ordem: o que é uma população e como se mede; as quatro taxas; o crescimento sem freio e com freio; o que freia; as oscilações de predador e presa; as estratégias de vida e as curvas de sobrevivência; as pirâmides etárias e a população humana; e três aplicações, a pesca manejada do pirarucu, as pragas e espécies invasoras e a conservação de populações pequenas. Os nomes das relações entre espécies (predação, competição, parasitismo, mutualismo) e o controle biológico estão em relações ecológicas; a fronteira entre população, comunidade e ecossistema, em níveis de organização ecológica; as pirâmides de energia, biomassa e números, que não são as pirâmides etárias daqui, em pirâmides ecológicas.
População é uma espécie, um lugar e uma data
População é o conjunto dos indivíduos de uma mesma espécie que vivem em uma mesma área, em um mesmo período. As três partes da definição importam. “As capivaras” não são uma população; “as capivaras da orla do Lago Paranoá em 2026” são. Mudou a área ou a data, mudou a população de que se fala, e uma queda no número de capivaras da orla pode ser apenas a mudança de parte delas para um córrego vizinho.
Cinco medidas descrevem uma população.
Tamanho (N): o número de indivíduos.
Densidade: o número de indivíduos por unidade de área ou de volume. Lobos-guarás por 100 km², pequizeiros por hectare, células de levedura por mililitro, bactérias por grama de solo.
Distribuição espacial: o modo como os indivíduos se espalham pela área.
Estrutura etária: quantos indivíduos há em cada faixa de idade.
Razão sexual: a proporção entre machos e fêmeas.
Tamanho e densidade não dizem a mesma coisa. Cem preás em 2 hectares têm densidade de 50 por hectare; os mesmos cem em 10 hectares, de 10 por hectare. O tamanho é igual, mas a disputa por capim, a facilidade de um parasita passar de um animal a outro e a chance de um predador encontrar presa são muito diferentes. É a densidade, e não o tamanho, que entra nos mecanismos que freiam o crescimento.
Exemplo resolvido (densidade). Um levantamento encontrou 120 pequizeiros em uma área de cerrado de 8 hectares. A densidade é 120÷8=15 pequizeiros por hectare. Se 3 dos 8 hectares são mata de galeria, onde o pequizeiro não cresce, a densidade calculada só sobre a área em que a espécie de fato vive é 120÷5=24 por hectare. A primeira conta é a densidade bruta (sobre a área total); a segunda, a densidade ecológica (sobre o habitat efetivamente ocupado). Conferência: 15×8=120 e 24×5=120. As duas contas estão certas; elas respondem a perguntas diferentes, e um texto de prova precisa dizer qual área usou.
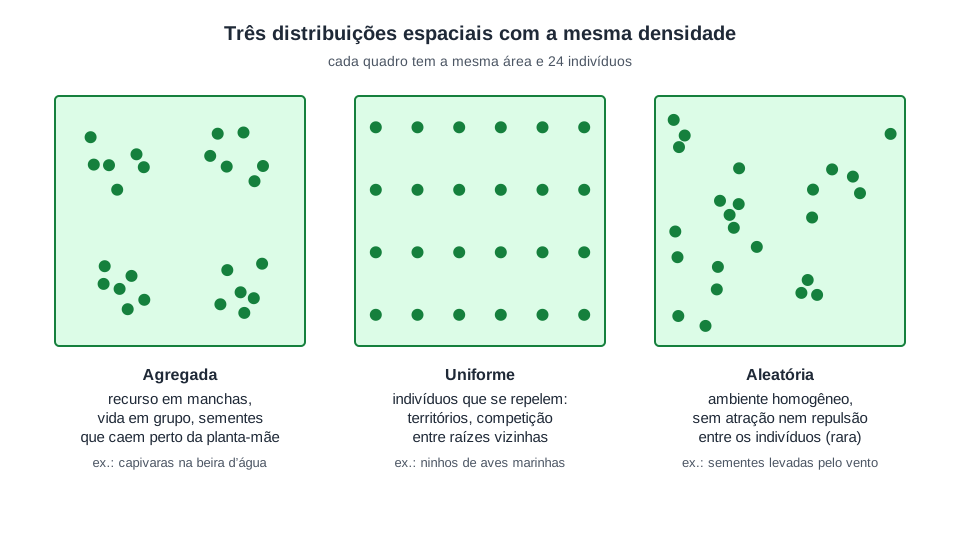
A densidade é uma média, e a média esconde a distribuição. Os ecólogos reconhecem três padrões.
Três distribuições espaciais com a mesma densidade (24 indivíduos por quadro). A agregada é a mais comum na natureza, porque os recursos vêm em manchas e muitas espécies vivem em grupo; a uniforme aparece quando os indivíduos se repelem (territórios, competição entre raízes); a aleatória exige ambiente homogêneo e indivíduos que não se atraem nem se evitam. A densidade média não distingue as três. Diagrama autoral.
Agregada (ou agrupada): os indivíduos formam grupos. É o padrão mais comum, porque água, alimento e abrigo vêm em manchas, porque sementes caem perto da planta-mãe e porque muitos animais vivem em bandos, cardumes e colônias. Capivaras na beira d’água, buritis em uma vereda, cupinzeiros onde o solo permite.
Uniforme: os indivíduos ficam a distâncias parecidas uns dos outros. Resulta de repulsão: aves marinhas que defendem o espaço do ninho, animais territoriais, plantas cujas raízes disputam a água do mesmo solo.
Aleatória: a posição de um indivíduo não depende da dos outros. É rara, porque exige um ambiente homogêneo e nenhuma atração ou repulsão; aproxima-se dela uma planta de sementes levadas pelo vento em um campo uniforme.
A distribuição decide como se amostra. Em uma população agregada, uma parcela que cai sobre um grupo conta muitos indivíduos, e a parcela vizinha, nenhum. Poucas parcelas dão, nesse caso, uma estimativa ruim.
Tamanho, densidade e distribuição
Tamanho (N) é o número de indivíduos; densidade é N dividido pela área ou pelo volume; distribuição é o arranjo no espaço (agregada, uniforme ou aleatória). Duas populações com a mesma densidade média podem estar distribuídas de modos diferentes, e uma mesma população muda de densidade se a área considerada muda. Antes de comparar dois levantamentos, confira se a área, a época e o método são os mesmos.
Como se conta o que não fica parado: censo, parcelas e marcação–recaptura
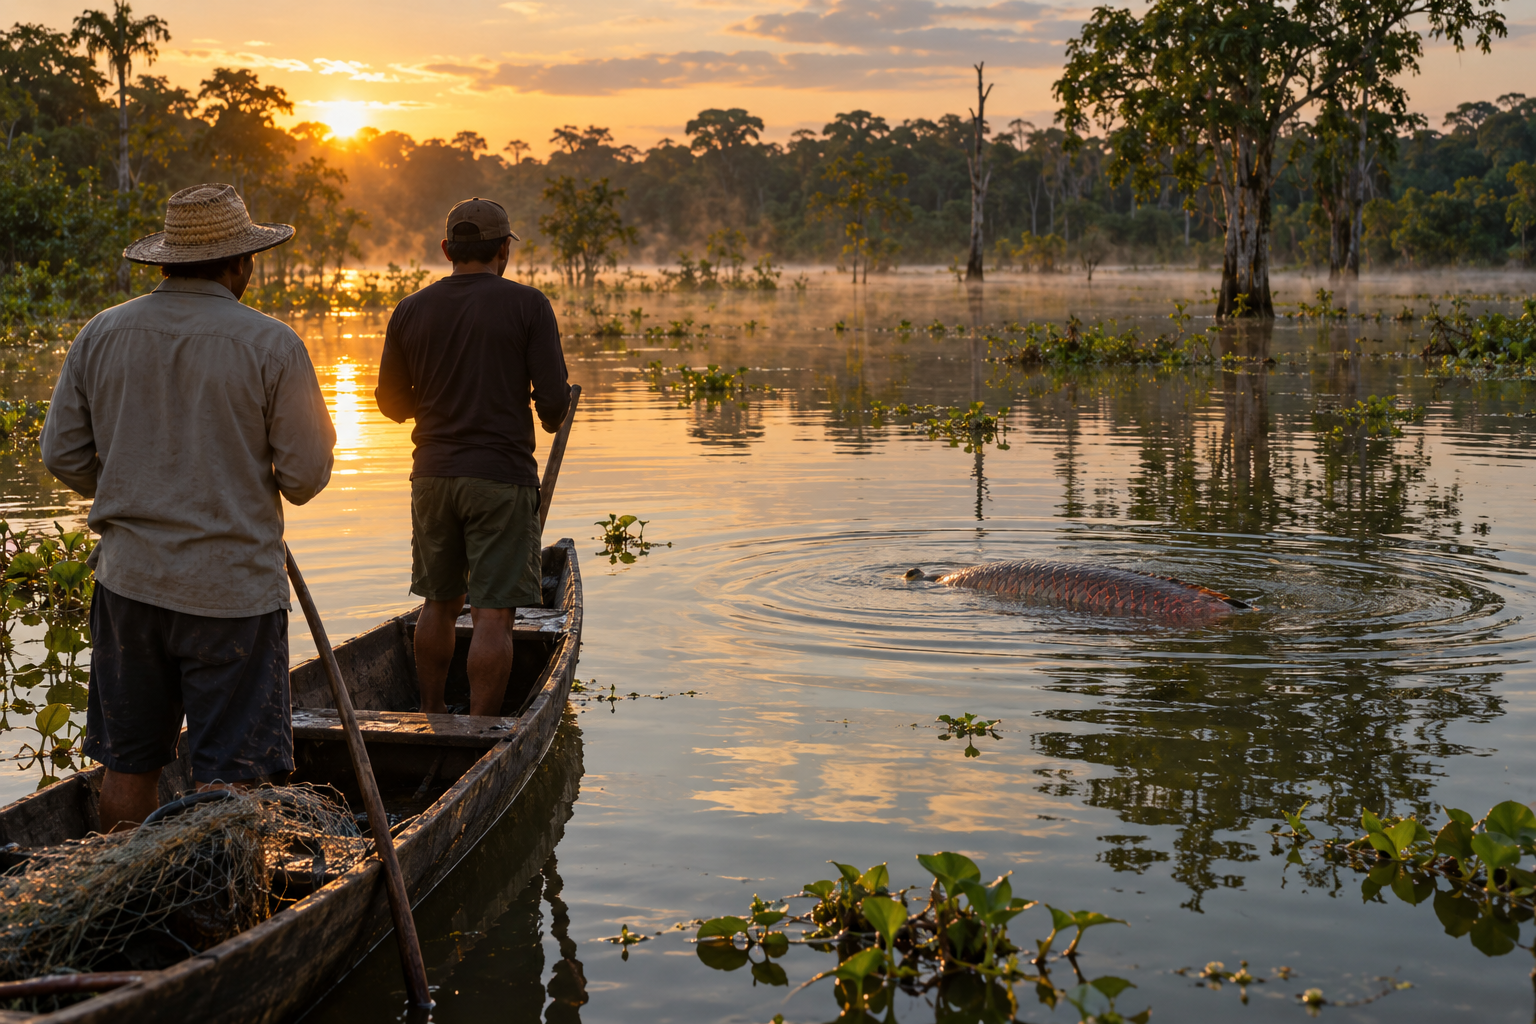
Contar todos os indivíduos, um censo, só é possível quando eles são grandes, visíveis e ficam em área delimitada. Klein contou as renas de St. Matthew em uma ilha sem árvores. Na Reserva Mamirauá, no Amazonas, os pescadores contam pirarucus de um jeito que só funciona com esse peixe: o pirarucu respira ar e precisa subir à superfície, e contadores treinados registram, em intervalos de 20 minutos, as subidas em cada trecho de lago. Para quase todo o resto, estima-se.
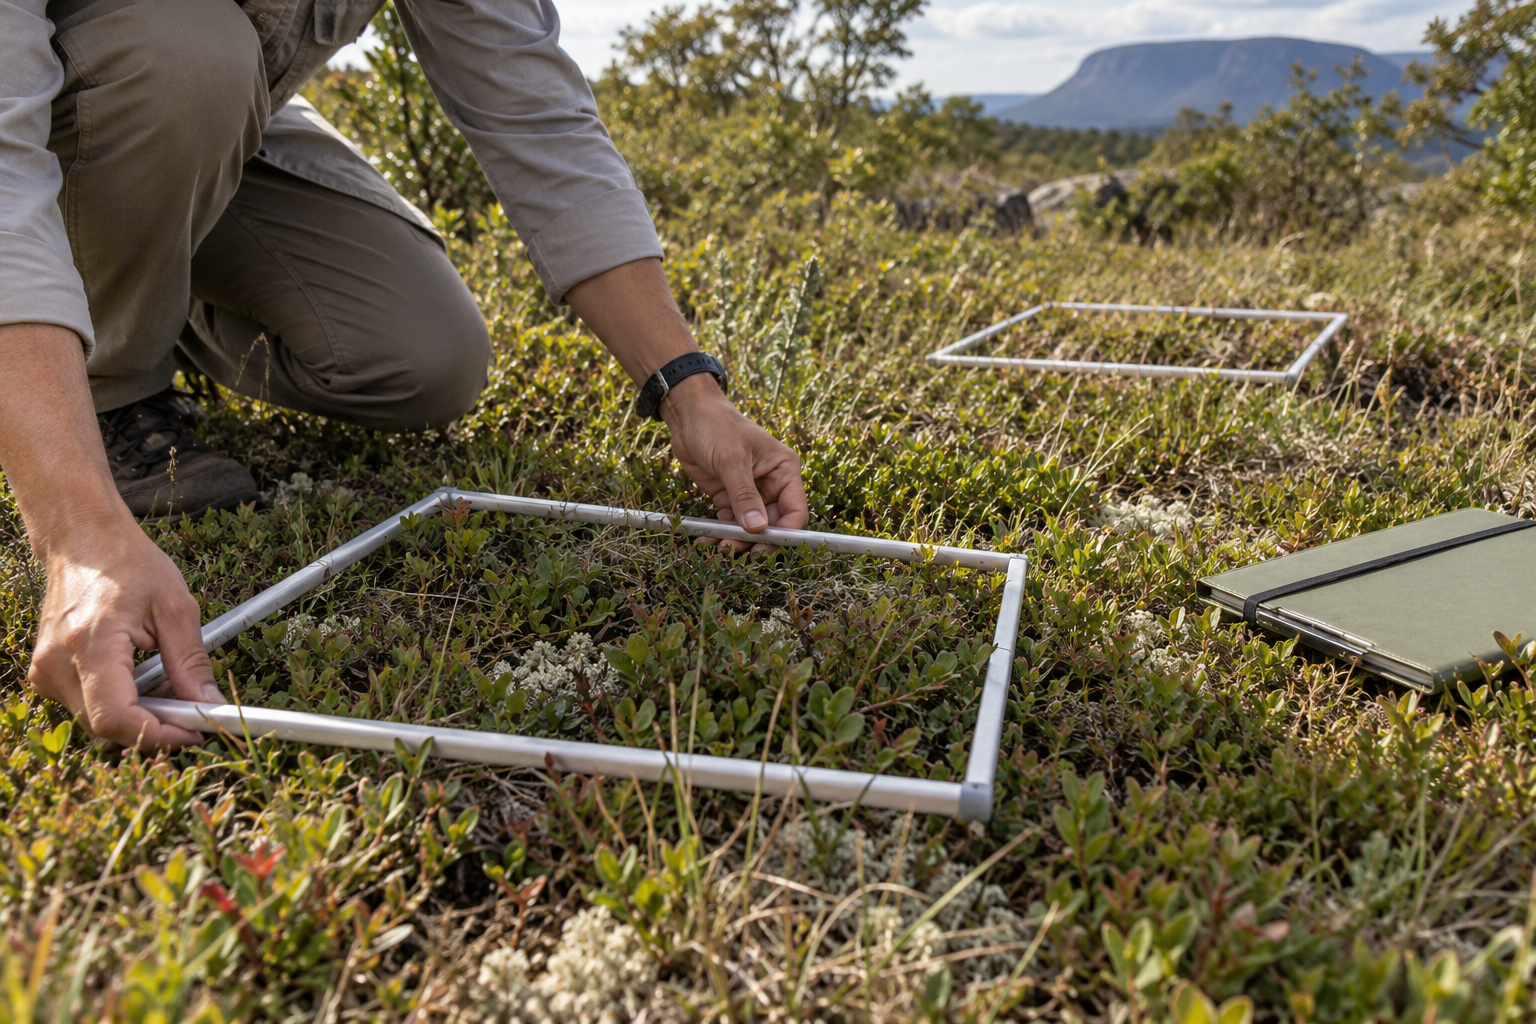
Amostragem por parcelas. Para organismos que não saem do lugar (plantas, cupinzeiros, cracas em um costão), delimita-se um número de parcelas de área conhecida, sorteadas dentro da área de estudo, conta-se o que há em cada uma e estende-se a densidade média à área toda.
Exemplo resolvido (parcelas). Em um campo de 2 hectares (20 000 m²), um grupo sorteia 10 parcelas de 10 m × 10 m e conta, nelas, 46 indivíduos de uma espécie de arbusto. A área amostrada é 10×100=1000 m². A densidade média é 46÷1000=0,046 arbusto por m². A estimativa para o campo é 0,046×20000=920 arbustos. Conferência por proporção: a amostra cobre 1/20 do campo, e 46×20=920. O que a conta supõe: que as parcelas foram sorteadas (e não escolhidas onde havia mais arbustos) e que 10 parcelas bastam para representar o campo. Se os arbustos estão agregados, a estimativa muda muito de um sorteio para outro, e a saída é aumentar o número de parcelas.
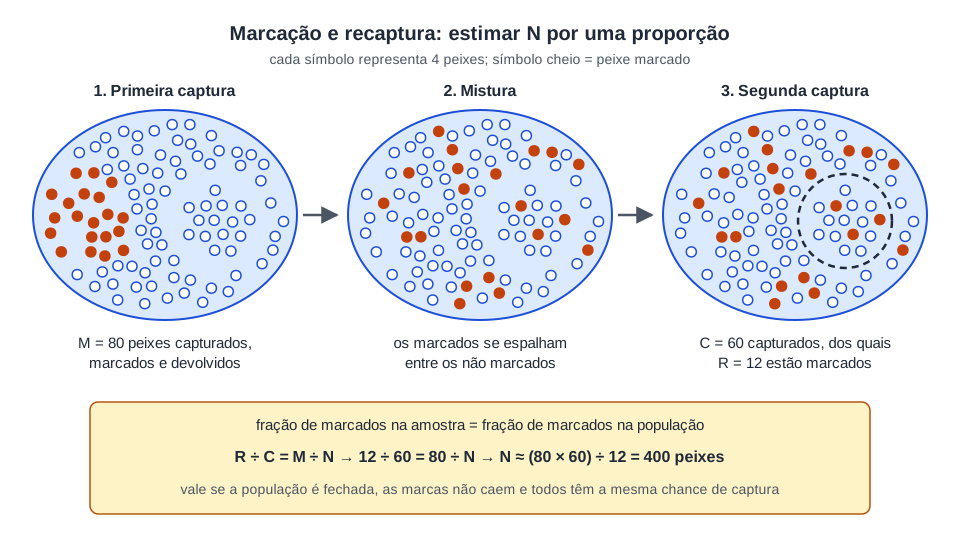
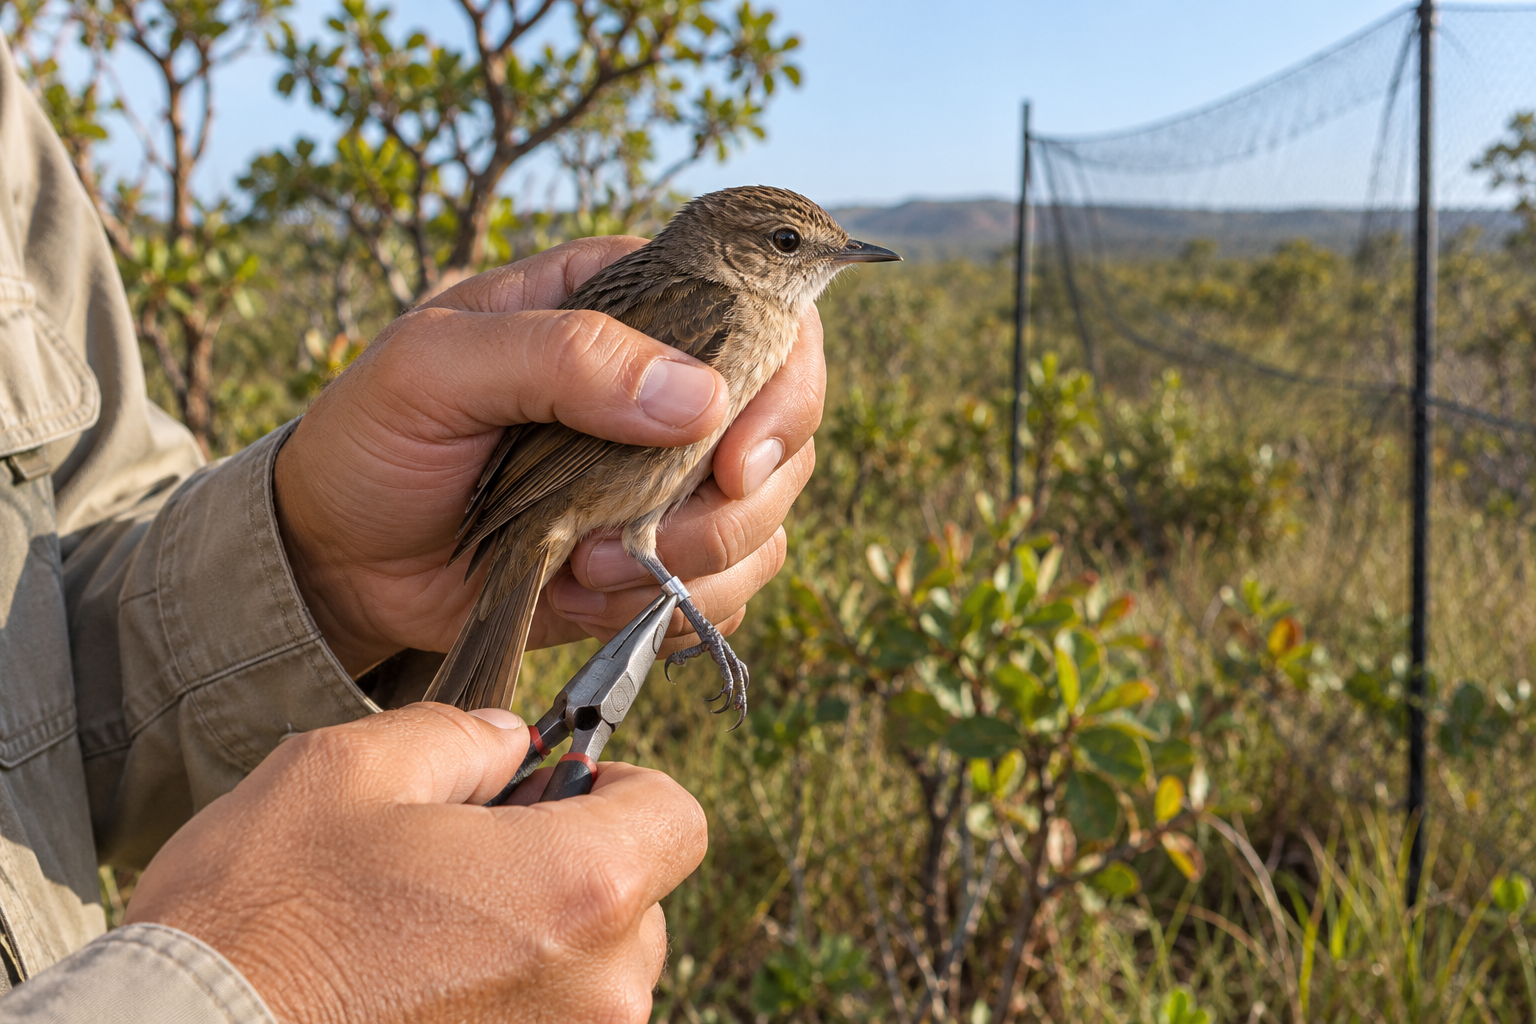
Marcação e recaptura. Para animais que se movem e se escondem, o método clássico usa uma proporção. Captura-se uma primeira amostra, marcam-se todos os indivíduos (anilha, brinco, tinta) e eles são soltos. Depois de um tempo suficiente para que se misturem aos demais, captura-se uma segunda amostra e conta-se quantos dela estão marcados. Se os marcados se misturaram bem, a fração de marcados na segunda amostra é igual à fração de marcados na população inteira:
CR=NM⇒N≈RM×C
em que M é o número de marcados na primeira captura, C é o total capturado na segunda e R é o número de recapturados (marcados que reapareceram na segunda). A estimativa é conhecida como índice de Lincoln–Petersen.
Marcação e recaptura. Se os 80 marcados se misturam à população, a fração de marcados na segunda amostra (12 em 60, ou 20%) é a fração de marcados na lagoa: 80 são 20% de 400. A estimativa só vale se, entre as duas capturas, a população não ganhou nem perdeu indivíduos, as marcas não caíram e marcados e não marcados têm a mesma chance de ser capturados. Diagrama autoral.
Exemplo resolvido (marcação e recaptura). Em uma lagoa, 80 lambaris são capturados, marcados e soltos. Uma semana depois, capturam-se 60 lambaris, dos quais 12 têm a marca. Então N≈(80×60)÷12=400 lambaris. Conferência: 12 em 60 são 20% de marcados na segunda amostra; 80 em 400 também são 20%. A conta fecha porque é uma regra de três.
O método só vale sob quatro condições, e cada uma, quando falha, empurra a estimativa para um lado previsível.
condição
o que acontece se falhar
população fechada entre as duas capturas (sem nascimentos, mortes, entradas ou saídas)
chegam indivíduos sem marca (nascidos ou imigrantes): R diminui em proporção e N é superestimado em relação à população do dia da marcação
as marcas não caem nem se apagam
marcados passam por não marcados: R diminui e N é superestimado
a marca não altera a sobrevivência
se marcados morrem mais (marca vistosa, que atrai predador), R diminui e N é superestimado
marcados e não marcados têm a mesma chance de captura
animal que aprende a evitar a armadilha reduz R (superestima); animal que volta pela isca aumenta R (subestima)
Repare na lógica: R está no denominador. Tudo o que faz reaparecerem menos marcados do que deveria aumenta a estimativa.
Quando nem isso é possível, usam-se índices: pegadas, fezes, cantos, registros de armadilha fotográfica, animais atropelados, peles vendidas. Um índice acompanha a população, mas não é a população.
Índice não é contagem, e esforço não é crescimento
O número de registros depende do tamanho da população e do esforço de quem registra. Se um parque dobra o número de armadilhas fotográficas e registra o dobro de onças, a população não dobrou. As peles de lince compradas por uma companhia de comércio dependem de quantos caçadores havia e do preço da pele naquele ano. Antes de aceitar “a população aumentou”, confira se a área, o método e o esforço de amostragem foram os mesmos nas duas datas.
Só há quatro portas para o número mudar
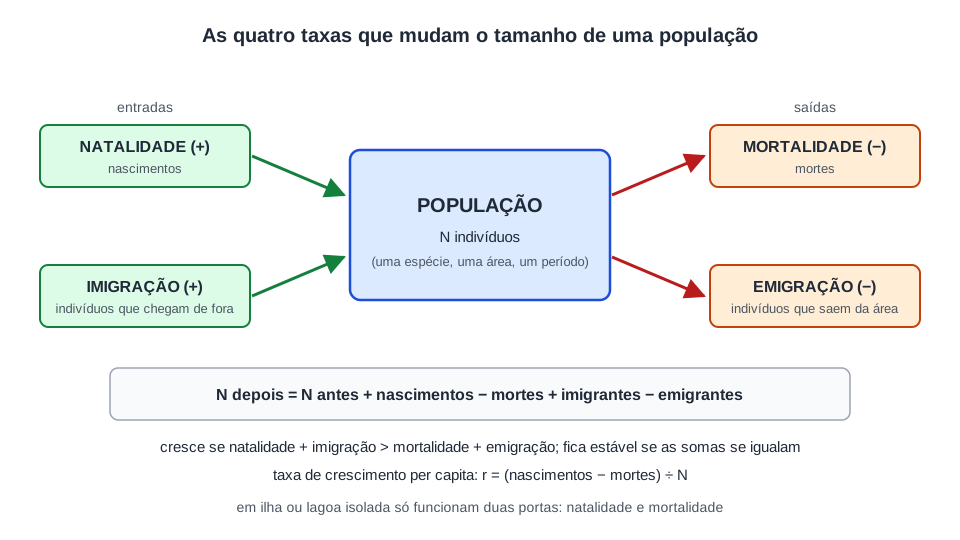
O tamanho de uma população muda por quatro processos, e só por eles. Dois acrescentam indivíduos: a natalidade (nascimentos) e a imigração (chegada de indivíduos de fora). Dois retiram: a mortalidade (mortes) e a emigração (saída de indivíduos para fora da área).
As quatro taxas. A população cresce enquanto a soma das entradas (natalidade e imigração) supera a soma das saídas (mortalidade e emigração). Em uma população isolada, como as renas de St. Matthew, só duas portas funcionam, e o saldo é nascimentos menos mortes. Diagrama autoral.
A equação é uma soma, mas impõe um hábito: sempre que alguém diz que uma população “cresceu” ou “sumiu”, perguntar por qual porta. Uma queda por mortalidade (uma epidemia, um inverno) e uma queda por emigração (as aves foram embora) são histórias diferentes, com previsões diferentes para o ano seguinte e medidas de manejo diferentes.
Exemplo resolvido (o saldo das quatro taxas). Uma população de capivaras de um parque (valores hipotéticos) tinha 200 indivíduos no início do primeiro ano.
ano
nascimentos
mortes
imigrantes
emigrantes
1
60
30
10
20
2
70
45
15
10
Ano 1: 200+60−30+10−20=220. Ano 2: 220+70−45+15−10=250. Do primeiro para o segundo ano, as mortes subiram de 30 para 45, e mesmo assim a população cresceu mais (30 indivíduos, contra 20), porque nascimentos e imigração subiram e a emigração caiu. Conferência pelo saldo: entradas do ano 2, 70+15=85; saídas, 45+10=55; diferença, 30. Uma população pode crescer em um período em que sua mortalidade aumenta, desde que a soma de natalidade e imigração continue acima da soma de mortalidade e emigração. Quem decide é o balanço das quatro, nunca uma taxa isolada.
Número absoluto e taxa. Para comparar populações, o número bruto de nascimentos diz pouco. Uma população de 50 indivíduos com 20 nascimentos por ano e outra de 400 com 80 nascimentos têm, respectivamente, 20÷50=0,40 e 80÷400=0,20 nascimento por indivíduo por ano. A segunda tem mais nascimentos; a primeira tem o dobro da taxa de natalidade. É a taxa, por indivíduo, que prevê a velocidade do crescimento. Em demografia humana, as taxas costumam vir por mil habitantes.
A diferença entre a taxa de natalidade e a taxa de mortalidade, quando não há migração, é a taxa de crescimento per capita, que os ecólogos chamam de r:
r=Nnascimentos−mortes
No ano 1 das capivaras, r=(60−30)÷200=0,15 por ano; no ano 2, r=(70−45)÷220≈0,11. Se r é positivo, a população cresce; se é zero, fica estável; se é negativo, encolhe. O sinal diz o sentido, e o valor diz a velocidade.
As quatro taxas e o sinal de r
Natalidade e imigração aumentam N; mortalidade e emigração diminuem. A população cresce quando natalidade + imigração > mortalidade + emigração, fica estável quando as duas somas se igualam e encolhe quando a segunda é maior. A taxa de crescimento per capitar é (nascimentos − mortes) por indivíduo por unidade de tempo.
Os dois itens mais diretos que o PAS já fez sobre o tema vieram em 2017, pendurados em um texto sobre o manejo da pesca do pirarucu na Reserva Mamirauá, que informava um aumento de aproximadamente 447% no estoque da espécie nas áreas manejadas desde 1999. O item 93 afirmava que “natalidade e mortalidade são aspectos populacionais relevantes para o estudo da taxa de incremento da população de pirarucus”: certo, é a definição da taxa. O item 91 dizia que o texto descreve um exemplo de que, “mesmo havendo ações do ser humano sobre recursos naturais, é possível manter a população da espécie no ambiente”: certo, porque a pesca é uma mortalidade a mais, e a população se mantém enquanto a retirada fica abaixo do que ela repõe. O mecanismo desse manejo está mais adiante, na seção sobre a pesca.
Estável não quer dizer parado
Uma população com o mesmo número de indivíduos em dois anos seguidos pode ter trocado boa parte deles. Estabilidade numérica significa entradas iguais a saídas, e não ausência de nascimentos e mortes. O item que descreve uma população estável como aquela em que “não há nascimentos nem mortes” está errado.
Sem freio, a curva é um J: potencial biótico e crescimento exponencial
Uma bactéria que se divide a cada 20 minutos passa por 30 divisões em 10 horas. A partir de uma única célula, o número segue 1, 2, 4, 8, 16, e depois de 30 duplicações chega a 230, cerca de um bilhão. Com a mesma regra mantida por menos de dois dias, a massa de bactérias passaria da massa da Terra. Nenhuma garrafa de leite esquecida fora da geladeira faz isso, e a razão está na próxima seção. Mas o começo da curva é real.
Esse é o crescimento exponencial: a população é multiplicada por um mesmo fator a cada intervalo de tempo. A variação por unidade de tempo é proporcional ao tamanho da população,
ΔN≈r×N
e por isso o gráfico de N contra o tempo se encurva para cima, na forma de um J. Com r constante, quanto mais indivíduos há, mais indivíduos se acrescentam por intervalo: a mesma taxa de 10% dá 10 indivíduos novos em uma população de 100 e 100 em uma de 1 000.
O potencial biótico é a capacidade máxima de crescimento de uma espécie em condições ideais, com alimento, espaço e parceiros sobrando e sem predadores nem doenças. É uma característica da espécie, determinada pela idade da primeira reprodução, pelo número de filhotes por vez e pelo intervalo entre as reproduções. O potencial biótico de uma bactéria é enorme; o de um elefante, pequeno. Ele não muda quando a oferta de alimento muda: o que muda é o quanto dele o ambiente deixa a população realizar.
Quando o crescimento é dado por um tempo de duplicação T, a conta sai por potências de 2:
N=N0×2t/T
Exemplo resolvido (crescimento exponencial com dados reais). As renas de St. Matthew passaram de 29 (1944) para cerca de 6 000 (1963). O fator de multiplicação é 6000÷29≈207. Como 27=128 e 28=256, foram entre sete e oito duplicações, cerca de 7,7. Em 19 anos, isso dá uma duplicação a cada dois anos e meio, aproximadamente (19÷7,7≈2,5). Conferência pela contagem intermediária: de 1944 a 1957 passaram-se 13 anos, cerca de cinco duplicações, e 29×25=928; Klein registrou 1 350 em 1957, a mesma ordem de grandeza. A população não seguiu uma exponencial perfeita, mas a leitura “dobra a cada dois ou três anos” descreve bem as duas primeiras décadas.
O J aparece na natureza sempre que uma população encontra recurso de sobra e poucos inimigos: uma espécie recém-chegada a um lugar onde nada a come nem disputa com ela, bactérias nas primeiras horas em um alimento, algas depois de uma descarga de nutrientes em um lago, a população humana entre 1800 e 1970. A função que descreve a curva é a mesma da Matemática; as contas com potências e logaritmos estão em função exponencial.
Crescimento exponencial (curva em J)
A população é multiplicada por um fator constante a cada intervalo: ΔN≈rN, ou N=N0×2t/T quando se conhece o tempo de duplicação. O acréscimo por intervalo cresce com o tamanho da população. Só ocorre enquanto recursos e espaço não limitam, e por isso descreve fases iniciais, não histórias inteiras. O potencial biótico é o valor máximo de r que a espécie alcança em condições ideais.
Com freio, a curva vira um S: resistência do meio e capacidade de suporte
O J sempre acaba. Os próprios indivíduos, ao ficarem mais numerosos, mudam o ambiente em que vivem: comem o que havia, ocupam os abrigos, transmitem parasitas uns aos outros, atraem predadores. O conjunto dos fatores que impedem uma população de crescer segundo o seu potencial biótico chama-se resistência do meio (ou resistência ambiental): falta de alimento e de espaço, competição, predação, parasitismo, doenças, clima desfavorável.
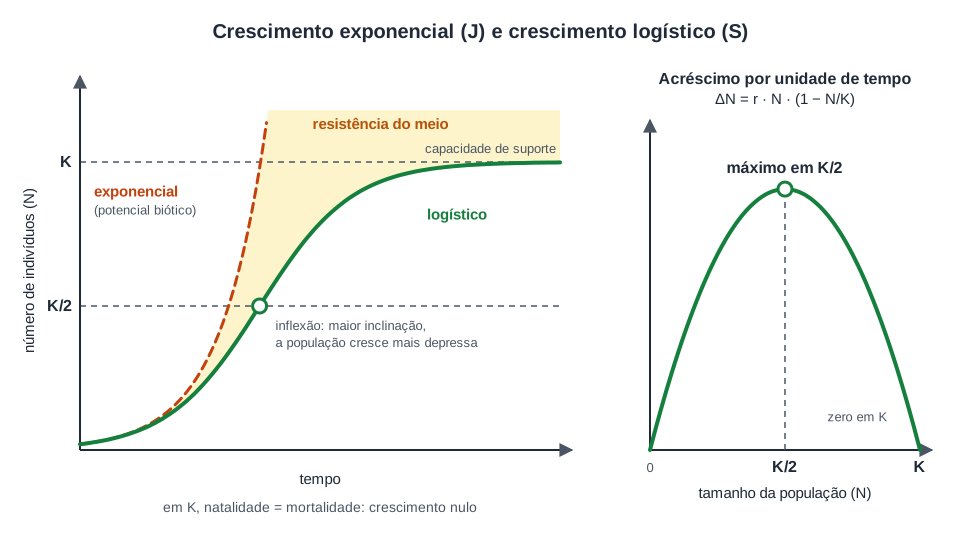
Chama-se capacidade de suporte (K) o número máximo de indivíduos de uma população que o ambiente consegue sustentar de modo continuado com os recursos que tem. Enquanto N é pequeno diante de K, a população cresce quase exponencialmente. Conforme N se aproxima de K, os nascimentos por indivíduo caem e as mortes por indivíduo sobem, até que as duas taxas se igualam, r chega a zero e a população se estabiliza em torno de K. O gráfico deixa de ser um J e vira um S: é o crescimento logístico.
ΔN≈r×N×(1−KN)
O fator entre parênteses é a fração da capacidade de suporte ainda livre. Vale quase 1 quando N é pequeno (e a equação se reduz à exponencial) e vale zero quando N=K (crescimento nulo).
À esquerda, as duas curvas de crescimento. A distância entre o J (o que a espécie faria sem limite) e o S (o que o ambiente permite) é a resistência do meio. À direita, o acréscimo por unidade de tempo em função do tamanho: máximo em K/2, nulo em K. Na metade da capacidade de suporte a população não para de crescer; é onde cresce mais depressa. Diagrama autoral.
A curva em S tem uma propriedade que engana quase todo mundo. Pergunte onde a população ganha mais indivíduos por unidade de tempo. No começo, cada indivíduo se reproduz no ritmo máximo, mas há poucos indivíduos. No fim, há muitos, mas quase nenhum recurso livre. O produto dos dois fatores é máximo no meio, em N=K/2, o ponto em que a curva deixa de acelerar e começa a desacelerar (o ponto de inflexão). Uma tabela com r=0,4 por ano e K=1000 mostra isso.
N
fração livre (1−N/K)
acréscimo no ano ΔN=0,4×N×(1−N/K)
100
0,90
36
250
0,75
75
500
0,50
100
750
0,25
75
900
0,10
36
1 000
0
0
O acréscimo é simétrico em torno de K/2: 250 e 750 rendem o mesmo, 100 e 900 também. E é preciso separar duas grandezas fáceis de trocar: a taxa per capita (por indivíduo) é máxima no início e só cai; o acréscimo absoluto (indivíduos por ano) sobe até K/2 e depois cai.
Em K/2 a população não para; é onde ela cresce mais
“A população para de crescer ao atingir a metade da capacidade de suporte” confunde o ponto de inflexão com o de estabilização. Em K/2 a curva tem a maior inclinação. A população só para de crescer em K. O erro simétrico é dizer que o crescimento é máximo “quando a população atinge a capacidade de suporte”. Em K o crescimento é nulo, porque natalidade e mortalidade se igualam.
Dados reais: a levedura de Carlson. Em 1913, Tor Carlson mediu de hora em hora a quantidade de levedura em uma cultura fechada, com açúcar e sem reposição. A tabela, retomada por Raymond Pearl em 1927, tornou-se o exemplo clássico de curva em S medida.
hora
0
2
4
6
7
8
9
10
12
14
16
18
levedura (unidades de biomassa)
9,6
29,0
71,1
174,6
257,3
350,7
441,0
513,3
594,8
640,8
655,9
661,8
Dois conjuntos de dados reais. À esquerda, a levedura de Carlson (1913): quase exponencial até a 6.ª hora, crescimento mais rápido entre a 7.ª e a 8.ª hora (de 257,3 a 350,7, perto de K/2) e estabilização em torno de 660 unidades. À direita, as renas de St. Matthew (Klein, 1968): quatro contagens ligadas por segmentos, não uma curva contínua. A população passou muito da capacidade de suporte, destruiu o líquen e caiu a 42. Diagrama autoral com os dados das fontes citadas.
Exemplo resolvido (ler a curva em S na tabela). Onde está K? As últimas medidas (655,9; 661,8) quase não mudam: a população se estabiliza em torno de 660 a 665 unidades. Onde o crescimento foi mais rápido? Calcule o ganho por hora nos intervalos de uma hora da tabela: da hora 6 para a 7, 257,3−174,6=82,7; da 7 para a 8, 350,7−257,3=93,4; da 8 para a 9, 441,0−350,7=90,3; da 9 para a 10, 72,3. O máximo está entre a 7.ª e a 8.ª hora, quando a população passava por cerca de 300 unidades. Conferência com o modelo: K/2≈665÷2≈332, valor que a população cruza justamente entre 257,3 e 350,7. O que a tabela não diz é a causa: que o açúcar acabou e que o álcool produzido pela própria levedura se acumulou no frasco vem de outras medidas, não da curva.
O PAS de 2025 trouxe a curva em S dentro de um item de Matemática (1.ª etapa, item 91). O enunciado dava a população do bodião-de-noronha como P(t)=1+15e−0,15t8000, com t em anos, e afirmava que “a população para de crescer no momento em que atinge 4.000 indivíduos”. A leitura biológica resolve o item. Quando t cresce, e−0,15t vai a zero e P se aproxima de 8 000: a capacidade de suporte é K=8000. A população inicial é P(0)=8000÷16=500. Os 4 000 do item são K/2, o ponto em que a população cresce mais depressa: com r=0,15, o acréscimo ali é de cerca de 0,15×4000×0,5=300 indivíduos por ano, contra 0,15×500×(1−500/8000)≈70 no início. Item errado. O próprio comando dava ln15=2,7, que permite localizar a inflexão no tempo: P=4000 quando 15e−0,15t=1, isto é, t=2,7÷0,15=18 anos.
Crescimento logístico (curva em S) e capacidade de suporte
ΔN≈rN(1−N/K). A capacidade de suporteK é o tamanho que o ambiente sustenta de forma continuada; nela, natalidade e mortalidade se igualam e o crescimento é nulo. O acréscimo absoluto é máximo em N=K/2 (inflexão). A resistência do meio é a diferença entre o que a espécie cresceria pelo potencial biótico e o que de fato cresce. Exponencial e logística são modelos: populações reais oscilam em torno de K, ultrapassam-no e caem, e têm um K que muda com a estação e com o que a própria população faz ao ambiente.
A capacidade de suporte muda com o recurso, e pode ser derrubada
A capacidade de suporte não é um número gravado no lugar. Ela depende do alimento, da água, dos abrigos, e muda quando eles mudam.
A prova do PAS de 2011 (1.ª etapa, item 76) mostrou isso com uma tabela. O texto apresentava o gaivotão (Larus dominicanus), ave do litoral que vai do Rio Grande do Sul ao Espírito Santo, “predador e necrófago, com marcada tendência oportunista”, e um estudo de 2005 que contou, mês a mês, os gaivotões do litoral paulista e os restos de pesca de camarão deixados pelos barcos.
mês
jan
fev
mar
abr
mai
jun
jul
ago
set
out
nov
dez
gaivotões
580
1 070
230
125
80
250
100
50
100
250
500
850
restos de pesca
850
680
240
0
0
100
510
400
600
1 000
1 010
450
A leitura: os quatro meses de mais gaivotões (novembro, dezembro, janeiro e fevereiro, com 500 aves ou mais) são meses de muito resto (450 unidades ou mais), e os dois meses sem resto algum (abril e maio) estão entre os de menos aves (125 e 80). A correspondência não é perfeita. De julho a outubro há bastante resto (de 400 a 1 000 unidades) e poucas aves (de 50 a 250); em dezembro e fevereiro o número de aves é alto com menos restos do que em novembro. O conjunto sugere que a abundância responde ao alimento com atraso e que outros fatores também atuam. O item, do tipo C, pedia a opção correta, e ela era a que dizia que a abundância de gaivotões “depende de abundante disponibilidade de recursos alimentares”. As três erradas eram absolutas, e o texto não sustenta nenhuma delas: fatores climáticos “não influenciam” (a tabela nem traz dado de clima), a população “só existe” no litoral paulista por causa da pesca (a espécie vai do Rio Grande do Sul ao Espírito Santo), a dieta é “exclusivamente” de camarões (o gaivotão come de tudo, até lixo).
O que os restos de pesca fazem com a população de gaivotões, um lixão a céu aberto faz com a de gaivotas ou urubus de uma cidade: mais alimento significa menos resistência do meio e uma capacidade de suporte mais alta. A população cresce e se estabiliza em um patamar superior ao de antes.
O alimento não mexe no potencial biótico
Quando a oferta de alimento aumenta e a população cresce, o que mudou foi a resistência do meio, que diminuiu, e a capacidade de suporte, que subiu. O potencial biótico é da espécie e continua o mesmo. Também não desaparece a competição entre os indivíduos: ela afrouxa e volta a apertar quando a população se aproxima do novo K.
Ultrapassagem e colapso. A levedura chegou a K e ficou. As renas de St. Matthew não. Uma população de herbívoros grandes, sem predador, com um alimento que se renova devagar (liquens crescem milímetros por ano), pode passar muito de K antes que a mortalidade a alcance. Em 1963, as 6 000 renas viviam de um estoque de líquen acumulado em décadas, não da produção anual. Quando o estoque acabou e veio um inverno rigoroso, a mortalidade chegou de uma vez. Klein encontrou, além dos esqueletos, um solo sem líquen: a capacidade de suporte da ilha depois de 1964 era muito menor que antes de 1944. Uma população que ultrapassa muito a capacidade de suporte não se acomoda em K; ela pode derrubar K e cair abaixo dele.
Entre o patamar bem-comportado da levedura e o colapso das renas ficam as populações reais, que oscilam em torno de uma capacidade de suporte que também oscila, com a estação, com a chuva do ano, com o que os vizinhos fazem.
O que freia: fatores que dependem da densidade e fatores que não dependem
Os fatores da resistência do meio dividem-se em dois grupos, e a diferença entre eles explica por que algumas populações se estabilizam e outras despencam.
dependentes da densidade
independentes da densidade
como agem
o efeito por indivíduo aumenta quando a população fica mais densa
atingem a mesma fração da população, seja ela densa ou rala
exemplos
competição por alimento, água, abrigo e território; parasitas e doenças transmissíveis; predação (o predador se concentra onde a presa abunda); acúmulo de resíduos tóxicos
geada, seca, enchente, incêndio, vendaval, erupção, aplicação de inseticida
natureza
bióticos, em geral: são relações entre organismos
abióticos, em geral: são eventos físicos ou químicos
papel
regulam: apertam quando a população sobe e afrouxam quando ela cai, puxando-a de volta para perto de K
reduzem, mas não regulam: não respondem ao tamanho da população
Os fatores dependentes da densidade funcionam como um termostato sem ninguém no comando. Mais preás, menos capim por preá, mais carrapatos passando de um para outro, mais facilidade para a jaguatirica: a natalidade por indivíduo cai, a mortalidade por indivíduo sobe. Menos preás, e tudo afrouxa. Os independentes da densidade são golpes: uma geada mata metade dos insetos de um campo, sejam mil ou um milhão.
Os dois tipos podem agir juntos. O inverno de 1963–64 em St. Matthew foi independente da densidade: teria sido duro com 500 renas também. A fome que o inverno encontrou era dependente: 6 000 renas já tinham raspado o líquen. A queda foi a combinação.
De Malthus a Verhulst, passando por Darwin
A ideia de que uma população cresce “em progressão geométrica” enquanto o alimento cresce “em progressão aritmética” é do inglês Thomas Malthus, no Ensaio sobre o princípio da população, de 1798. Malthus falava de gente e de miséria. Foi lendo Malthus que Darwin, em 1838, percebeu que a disputa entre indivíduos de uma população que cresce mais do que o ambiente comporta favorece os que deixam mais descendentes, a base da seleção natural. No mesmo ano de 1838, o matemático belga Pierre-François Verhulst escreveu a equação da curva em S; o nome “logística” ele lhe deu em um trabalho de 1845. A equação ficou esquecida por oitenta anos, até Raymond Pearl e Lowell Reed a redescobrirem em 1920, ao ajustá-la à população dos Estados Unidos; depois Pearl a aplicou à levedura de Carlson.
Predador e presa: duas curvas que oscilam com atraso
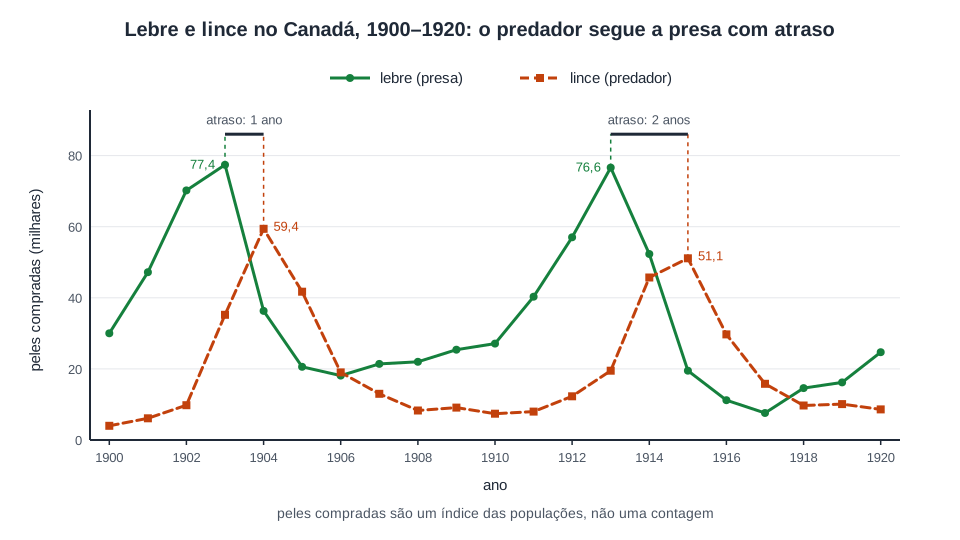
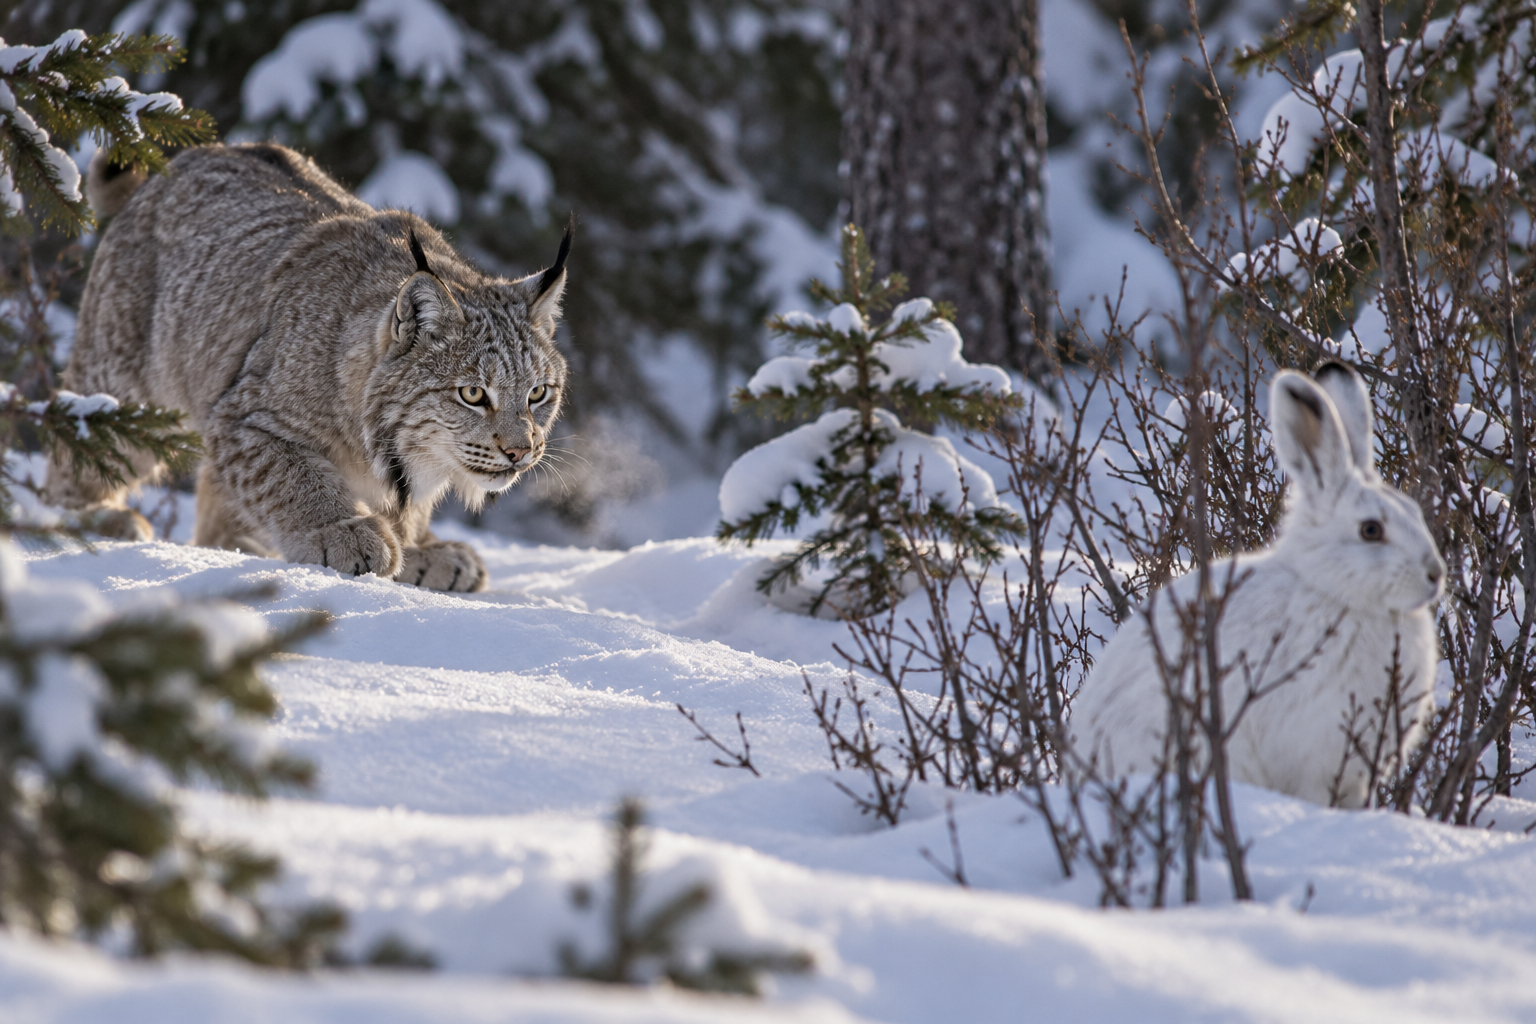
A Companhia da Baía de Hudson comprou peles no Canadá por mais de dois séculos e anotou tudo. Nos anos 1930, o ecólogo D. A. MacLulich reuniu os registros de compra de peles de lebre-americana (Lepus americanus) e de lince-do-canadá (Lynx canadensis) e encontrou um padrão que se repete ao longo de quase um século de registros: as duas populações oscilam, com picos a cada nove ou dez anos, e o pico do lince vem um ou dois anos depois do pico da lebre.
ano
1900
1902
1903
1904
1905
1906
1908
1910
1912
1913
1914
1915
1916
1917
1920
lebre (mil peles)
30,0
70,2
77,4
36,3
20,6
18,1
22,0
27,1
57,0
76,6
52,3
19,5
11,2
7,6
24,7
lince (mil peles)
4,0
9,8
35,2
59,4
41,7
19,0
8,3
7,4
12,3
19,5
45,7
51,1
29,7
15,8
8,6
Peles de lebre-americana e de lince-do-canadá compradas pela Companhia da Baía de Hudson, de 1900 a 1920 (tabulação de Odum, 1953, a partir de MacLulich, 1937). Os picos da presa (1903 e 1913) precedem os do predador (1904 e 1915) em um a dois anos. O número de peles é um índice do tamanho das populações, não uma contagem. Diagrama autoral com os dados das fontes citadas.
A leitura mais direta do gráfico é um ciclo de quatro tempos. Muitas lebres alimentam muitos linces, e a população do predador cresce. Muitos linces aumentam a mortalidade das lebres, que caem. Com poucas lebres, os linces passam fome, reproduzem-se menos e caem. Com poucos linces, as lebres se recuperam, e o ciclo recomeça. O atraso tem explicação: o predador não responde à abundância da presa no mesmo instante, porque transformar alimento em filhotes leva tempo, e sua população continua subindo por inércia um pouco depois de a presa começar a cair. Nos anos 1920, Alfred Lotka e Vito Volterra escreveram, cada um por seu lado, as equações que produzem essa oscilação.
Três consequências saem dessa figura.
Equilíbrio é oscilação, não número parado. Nenhuma das duas populações fica constante, e nenhuma delas some. Em Ecologia, populações em equilíbrio são populações que oscilam em torno de valores que se mantêm por décadas. Uma população que nunca variasse seria o caso estranho.
O predador não extermina a presa nem é o “vilão” dela. A predação é um fator dependente da densidade: pesa mais quando a presa abunda e alivia quando ela escasseia. O predador segura a população da presa antes que ela destrua o próprio alimento. Retirá-lo não dá paz à presa; entrega-a a um freio mais brusco, a fome. St. Matthew foi esse experimento, feito sem querer.
A curva mostra uma correlação com atraso, não a causa. A série, sozinha, não decide por que a lebre cai. Os ecólogos que estudaram o caso levantaram outras hipóteses: nos anos de muitas lebres, os arbustos de que elas dependem no inverno ficam desfolhados e de pior qualidade, e a lebre cairia por fome, com ou sem lince, levando o lince atrás; ciclos climáticos de cerca de dez anos afetariam as duas populações; e o próprio registro depende do número de caçadores e do preço da pele. Experimentos feitos no Yukon, no Canadá, a partir dos anos 1980, cercando áreas para excluir predadores e acrescentando alimento, mostraram que predação e alimento agem juntos: excluir os predadores dobrou a densidade de lebres, acrescentar alimento a triplicou, e as duas coisas juntas a multiplicaram por cerca de onze, bem mais do que a soma dos dois efeitos isolados (Krebs e colaboradores, 1995). A resposta que os dados sustentam é “predação, principalmente, mas não só”.
Há um caso famoso que ensina a mesma cautela. No planalto de Kaibab, no Arizona, pumas, lobos e coiotes foram eliminados a partir de 1906, e a população de veados, estimada em cerca de 4 000, teria chegado a 100 000 por volta de 1924 antes de cair por fome. Durante décadas o gráfico foi apresentado como prova de que retirar predadores faz a presa explodir e colapsar. Em 1970, Graeme Caughley mostrou que os 100 000 eram estimativas grosseiras, feitas por métodos diferentes, e que na mesma época milhares de ovelhas e bois tinham sido retirados do planalto: o crescimento dos veados podia vir tanto da recuperação do pasto quanto da falta de predadores. Em 2006, Dan Binkley e colaboradores dataram os álamos do planalto, árvore cujos brotos os veados comem, e encontraram muito poucos nascidos nos anos 1920, sinal de que havia veados demais naquela década. O aumento foi real; o número de 100 000 e a parte de cada causa continuam em discussão. O caso serve hoje de lição de método, e não de prova: um gráfico limpo demais pede que se procurem os dados originais.
O PAS de 2005 (1.ª etapa, item 141) partiu de um trecho de Darwin, em A origem das espécies, segundo o qual “o que determina o número médio de indivíduos de uma espécie não é a dificuldade em obter alimentos, mas a facilidade com que esses indivíduos se tornam presas de outros animais”. O item concluía que “uma boa alternativa para a conservação de espécies ameaçadas de extinção é a completa eliminação de seus predadores”. Errado: sem o predador, a população da presa cresce até esbarrar no alimento, e esse freio costuma ser mais brusco. O texto de Darwin descreve a predação como reguladora, não como ameaça a eliminar. Em 2015, um item discursivo da mesma etapa (item 54) pediu que o candidato nomeasse a relação mostrada em uma tira e citasse a consequência dela para o crescimento populacional; a nomeação das relações está em relações ecológicas, e a consequência é a desta seção.
"Sem o predador, a presa vive em paz"
A frase acerta os primeiros anos (a presa cresce) e erra o resto. Sem predador, outro fator dependente da densidade assume o freio: o alimento, as doenças, a competição. Se o alimento se renova devagar, a população ultrapassa a capacidade de suporte e desaba. Em toda proposta de proteger uma espécie eliminando quem a come, pergunte que fator vai segurar a população depois.
Muitos filhotes baratos ou poucos filhotes caros: estrategistas r e K
As espécies não chegam ao mesmo número de descendentes pelo mesmo caminho. Uma ostra libera milhões de ovos e não cuida de nenhum; uma elefanta tem um filhote a cada quatro ou cinco anos e o acompanha por uma década. Os dois nomes vêm das duas letras da equação logística.
estrategistas r
estrategistas K
aposta
crescer depressa quando há recurso
manter-se perto da capacidade de suporte
tamanho do corpo
pequeno
grande
maturidade sexual
cedo
tarde
filhotes por reprodução
muitos, pequenos
poucos, grandes
cuidado parental
pouco ou nenhum
prolongado
mortalidade dos jovens
muito alta
baixa
tempo de vida
curto
longo
tamanho da população
varia muito, com explosões e quedas
relativamente estável, perto de K
ambiente típico
instável, recém-aberto, imprevisível
estável, ocupado, competitivo
exemplos
bactérias, insetos, ratos, plantas daninhas, ostras, muitos peixes
elefantes, baleias, onças, grandes primatas, araras
A classificação é um eixo com dois extremos, não duas gavetas. A tartaruga marinha põe centenas de ovos e não cuida de nenhum, como um estrategista r, mas demora décadas para se reproduzir e vive muito, como um estrategista K. Uma árvore de floresta produz milhares de sementes e vive séculos. O uso certo do quadro é comparativo: entre duas espécies, qual está mais para um lado e qual para o outro.
A diferença aparece em outro gráfico, a curva de sobrevivência: parte-se de um grupo de indivíduos nascidos na mesma época e registra-se quantos continuam vivos a cada idade. O eixo vertical costuma estar em escala logarítmica (1 000, 100, 10, 1), para que perdas proporcionais iguais apareçam como quedas iguais.
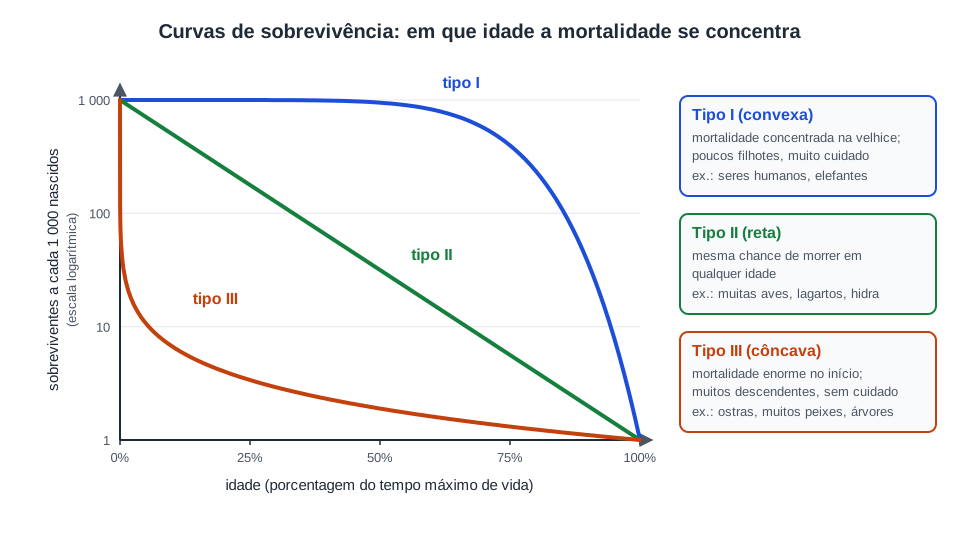
Os três tipos de curva de sobrevivência, com o eixo vertical em escala logarítmica. Tipo I: a mortalidade se concentra na velhice (poucos filhotes, muito cuidado). Tipo II: a chance de morrer é aproximadamente a mesma em qualquer idade, e a curva é uma reta. Tipo III: a mortalidade se concentra no início da vida (muitos descendentes, pouco cuidado), e quem passa da fase jovem tende a viver muito. Diagrama autoral.
Tipo I (convexa): quase todos sobrevivem à juventude e à vida adulta, e a mortalidade se concentra na velhice. Seres humanos em países com saneamento e vacinas, elefantes, baleias. É a curva dos estrategistas K.
Tipo II (reta, na escala logarítmica): a probabilidade de morrer é aproximadamente a mesma em qualquer idade. Muitas aves, lagartos, pequenos mamíferos, a hidra.
Tipo III (côncava): a mortalidade é enorme no início da vida, e os poucos que passam dessa fase têm boa chance de viver muito. Ostras, a maior parte dos peixes e dos invertebrados marinhos, plantas que produzem muitas sementes. É a curva dos estrategistas r.
A estratégia tem consequência prática. Uma espécie de estratégia K repõe os indivíduos perdidos devagar: se a caça ou a pesca aumentam a mortalidade dos adultos, a natalidade baixa não compensa, e a população demora décadas para se recuperar. É por isso que baleias, elefantes, grandes felinos e araras aparecem tanto nas listas de espécies ameaçadas. Uma espécie de estratégia r repõe depressa, e é entre elas que estão quase todas as pragas.
Pirâmide etária: a população separada por idade e sexo
A estrutura etária é a distribuição dos indivíduos por faixas de idade, e a razão sexual, a proporção entre machos e fêmeas. As duas juntas dizem algo que o tamanho não diz: quantos indivíduos estão, ou vão estar, em idade de se reproduzir. O gráfico que as resume é a pirâmide etária: barras horizontais empilhadas, uma por faixa de idade, com os mais jovens na base, homens (ou machos) de um lado e mulheres (ou fêmeas) do outro.
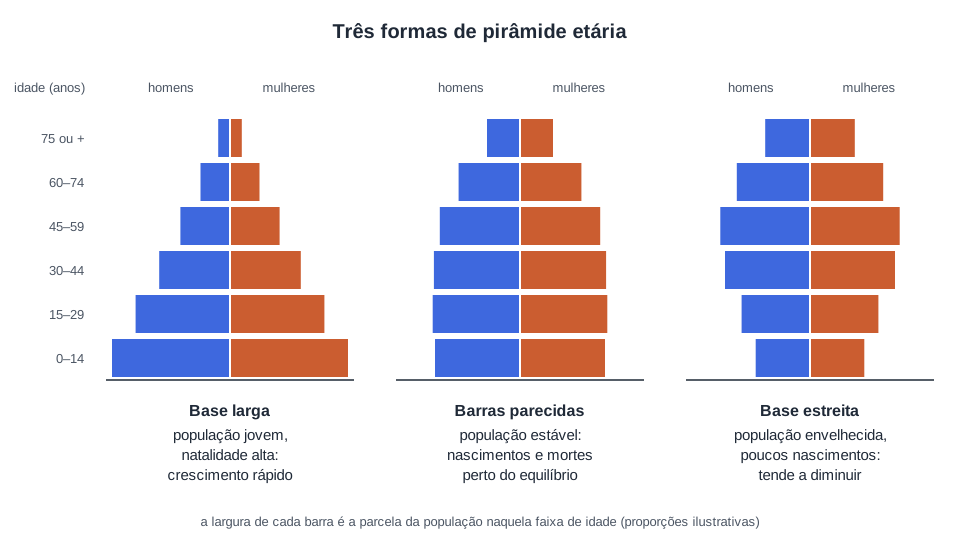
Três formas de pirâmide etária. Base larga: muitos jovens entrarão em idade reprodutiva, e a população tende a crescer mesmo que cada casal passe a ter menos filhos. Barras parecidas: nascimentos e mortes próximos do equilíbrio. Base estreita: menos jovens que adultos, população que envelhece e tende a diminuir. Diagrama autoral, com proporções ilustrativas.
Base larga (triângulo): cada geração é maior que a anterior. Natalidade alta, população jovem, crescimento rápido.
Barras parecidas (sino ou coluna): as gerações têm tamanhos próximos. População estável.
Base estreita (urna): nascem menos indivíduos do que nasciam. População envelhecida, que tende a diminuir.
A pirâmide permite prever. Uma população com muitos jovens continua a crescer por algum tempo mesmo depois que a fecundidade cai, porque as gerações numerosas ainda vão chegar à idade de ter filhos: é a inércia demográfica. Em populações de animais vale o mesmo. Uma população de peixes da qual a pesca retirou os adultos grandes pode ter muitos indivíduos e poucos reprodutores. E a razão sexual pode limitar a natalidade tanto quanto o tamanho: as 42 renas que sobraram em St. Matthew eram 41 fêmeas e um macho.
Pirâmide etária não é pirâmide ecológica
A pirâmide etária descreve uma população, por idade e sexo. As pirâmides de energia, de biomassa e de números descrevem uma comunidade, por nível trófico, e têm regras próprias (a de energia nunca se inverte). Um item que fale em “base da pirâmide” exige conferir de qual das duas se trata. As ecológicas estão em pirâmides ecológicas.
A população humana em uma página. A população mundial cresceu devagar por milênios, chegou a 1 bilhão por volta de 1800, a 2 bilhões por volta de 1930, a 4 bilhões em 1974 e a 8 bilhões em novembro de 2022. É um J. Mas a curva já mudou de concavidade: a projeção da ONU (World Population Prospects 2024) é de um pico em torno de 10,3 bilhões em meados da década de 2080, seguido de queda lenta, e em 63 países, entre eles China, Japão, Alemanha e Rússia, a população já parou de crescer.
O que freou o J humano não foi o que freou as renas. Foi a transição demográfica, uma sequência que quase todos os países percorreram ou percorrem.
fase
natalidade
mortalidade
crescimento
pirâmide
1. pré-transição
alta
alta
lento
base larga, topo muito estreito
2. queda da mortalidade (saneamento, vacinas, alimento)
alta
cai
acelerado
base larga
3. queda da natalidade (urbanização, escolaridade, contracepção)
cai
baixa
desacelera
base se estreita
4. pós-transição
baixa
baixa
próximo de zero, ou negativo
barras parecidas ou urna
O crescimento rápido da fase 2 vem da distância entre as duas taxas: a mortalidade cai primeiro, a natalidade demora a acompanhar. Em linguagem das quatro portas, a explosão populacional não foi causada por mais nascimentos por mulher, e sim por menos mortes.
O Brasil está adiantado nessa sequência. O Censo de 2022 contou 203,1 milhões de pessoas; a projeção do IBGE (revisão de 2024) indica um pico de 220,4 milhões em 2041 e queda depois disso. A razão está na fecundidade, que caiu de 2,32 filhos por mulher em 2000 para 1,57 em 2023. Como a fecundidade de reposição, a que mantém a população estável no longo prazo, é de cerca de 2,1 filhos por mulher, o país está abaixo dela desde os anos 2000. A população ainda cresce pela inércia demográfica: há muitas mulheres em idade de ter filhos, nascidas quando a fecundidade era maior. A pirâmide mostra a mudança: a idade mediana dos brasileiros passou de 29 anos, em 2010, para 35, em 2022, e a parcela com 65 anos ou mais foi de 7,4% para 10,9%.
O que muda quando a pirâmide vira urna
Uma população que envelhece tem menos pessoas em idade de trabalhar para cada aposentado, mais demanda por serviços de saúde e menos por vagas em escolas. É um problema de planejamento, com data marcada pela própria pirâmide: quem terá 65 anos em 2060 já nasceu. A afirmação oposta, de que o planeta “não aguenta” certo número de pessoas, também precisa de números: a pressão sobre água, solo e clima depende de quanto cada pessoa consome, e as diferenças de consumo entre países são maiores que as de população. A capacidade de suporte, para a espécie humana, não é um número fixo; depende da tecnologia e do padrão de consumo.
Pescar sem acabar com o peixe: o pirarucu de Mamirauá
A pesca é uma mortalidade acrescentada às que a população já tem. O PAS de 2006 (1.ª etapa, item 20) definiu o caso-limite: “é conhecida como predatória a pesca que torna a taxa de mortalidade de uma espécie maior que a de natalidade”. Com mortalidade acima da natalidade, r é negativo e a população diminui enquanto a pesca for mantida. O item pedia o gráfico correspondente entre quatro: número de indivíduos constante, crescente em linha reta, decrescente em curva que se aproxima do eixo do tempo, ou oscilante. A resposta era a curva decrescente, e a forma tem razão de ser: se uma fração constante da população se perde a cada ano, a perda absoluta diminui à medida que restam menos indivíduos. É uma exponencial com r negativo.
A curva em S mostra por que existe uma pesca que não é predatória. O que se pode retirar de uma população, ano após ano, sem reduzi-la, é o que ela produz naquele ano, o acréscimo ΔN. Esse acréscimo é máximo em K/2. Uma população mantida perto da metade da capacidade de suporte é a que mais repõe, e a maior retirada anual que ela sustenta é chamada de rendimento máximo sustentável. Uma população mantida em K está estável, mas não produz excedente: qualquer retirada a reduz. Uma população muito abaixo de K/2 produz pouco, porque há poucos reprodutores.
Exemplo resolvido (quanto se pode pescar). Um estoque de peixes segue a curva logística com K=20000 e r=0,2 por ano. Com N=10000 (isto é, K/2), o acréscimo anual é 0,2×10000×0,5=1000 peixes. Com N=18000, é 0,2×18000×0,1=360. Com N=2000, é 0,2×2000×0,9=360. Uma cooperativa que retire 1 000 peixes por ano de um estoque de 10 000 o mantém estável; a mesma retirada aplicada a um estoque de 2 000 tira mais do que ele repõe (360) e o derruba ano após ano. Conferência: os dois tamanhos simétricos em torno de K/2 (2 000 e 18 000) rendem o mesmo, como a parábola prevê.
O manejo do pirarucu (Arapaima gigas) na Reserva Mamirauá, que o PAS de 2017 usou como texto-base, aplica essas ideias com regras simples. Cada regra corresponde a um conceito desta página.
regra do manejo
o que ela faz, em termos populacionais
contagem anual dos pirarucus pelos próprios pescadores, nas subidas do peixe para respirar
censo: sem conhecer N não há como definir retirada
cota autorizada pelo Ibama de, no máximo, 30% dos adultos contados
mantém a mortalidade por pesca abaixo do que a população repõe; 70% dos adultos ficam para se reproduzir
proibição de capturar peixes com menos de 1,5 m
protege os jovens até que se reproduzam: preserva a estrutura etária
defeso (pesca fechada no período reprodutivo e de cuidado com os filhotes)
protege a natalidade
vigilância dos lagos pelas comunidades
reduz a pesca ilegal, uma mortalidade não contada
O resultado relatado no texto da prova foi um aumento de aproximadamente 447% no estoque natural da espécie nas áreas manejadas desde 1999, com aumento da renda dos pescadores; o Instituto Mamirauá informa hoje um aumento de cerca de 620%. Uma população que cresce enquanto é pescada só é possível se a retirada ficar abaixo do acréscimo anual.
Quando a conta não é respeitada
O contraexemplo mais conhecido é o do bacalhau da Terra Nova, no Canadá: depois de décadas de capturas acima do que o estoque repunha, a população desabou, e em 1992 o governo canadense fechou a pesca. Manter um estoque em K/2 é simples no papel e difícil no mar: N é estimado com erro, K muda com a temperatura da água e com o alimento, e uma cota calculada para um ano bom se torna pesca predatória em um ano ruim. Por isso o manejo de Mamirauá refaz a contagem todos os anos e define a cota como fração do que foi contado, e não como um número fixo.
Praga e invasora: populações que perderam o freio
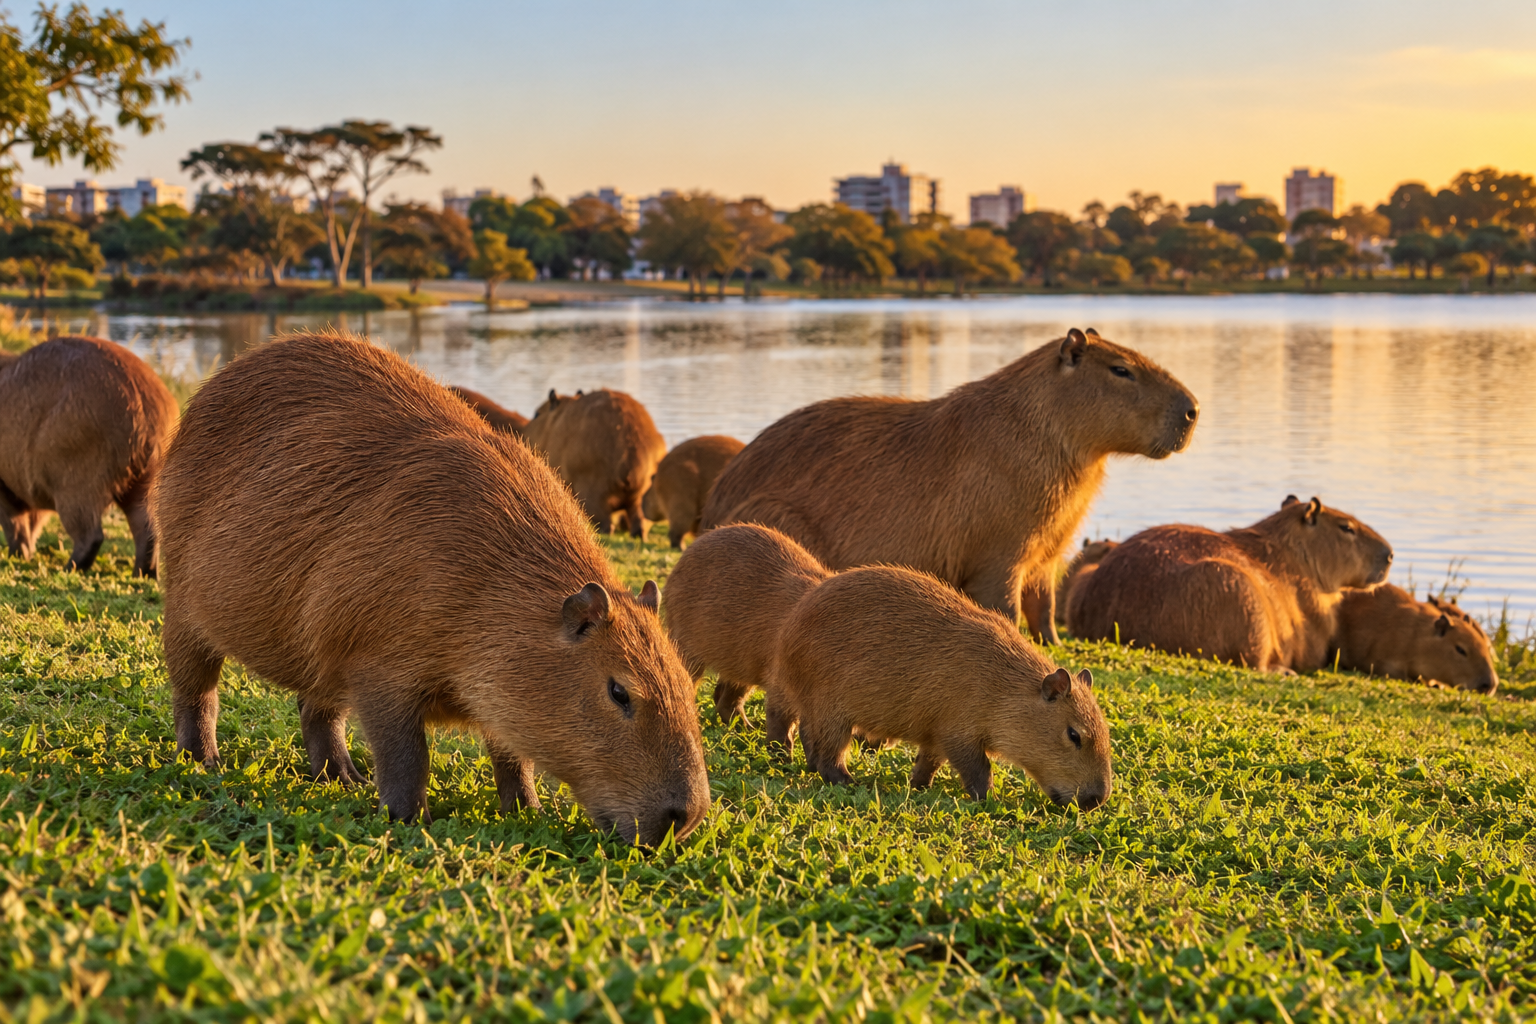
“Praga” é um juízo humano sobre uma população que só está fazendo o que qualquer população faz quando encontra capacidade de suporte alta e resistência do meio baixa. Uma lavoura é exatamente isso para um inseto que come aquela planta: alimento concentrado, em área enorme, com poucos inimigos naturais. Não é a origem que faz a praga. A lagarta-do-cartucho, principal praga do milho no Brasil, é nativa das Américas. A capivara é nativa, e em margens urbanas de rios e lagos, sem onças e com gramados irrigados, forma populações densas que sustentam o carrapato-estrela, transmissor da febre maculosa.
O raciocínio populacional explica um efeito conhecido de quem trabalha com lavoura. Um inseticida de amplo espectro mata a praga e os predadores dela. Os dois caem (o inseticida é um fator independente da densidade), mas a praga, estrategista r, com geração curta e alimento de sobra, se recupera antes do predador, que depende de haver presa para se reproduzir. Semanas depois, a população da praga está maior que antes da aplicação, sem o freio que tinha. É a ressurgência. O uso de inimigos naturais para segurar essas populações, o controle biológico, é assunto da página de relações ecológicas.
Uma espécie invasora é o mesmo fenômeno com outra origem. Uma espécie levada para fora de sua área natural de distribuição quase sempre morre ou fica restrita ao lugar onde foi posta. Quando se estabelece, chega muitas vezes sem os predadores, parasitas e competidores que a mantinham em número baixo na terra de origem. Com resistência do meio reduzida, a população cresce perto do potencial biótico e pode atingir tamanhos maiores que os da região de onde veio.
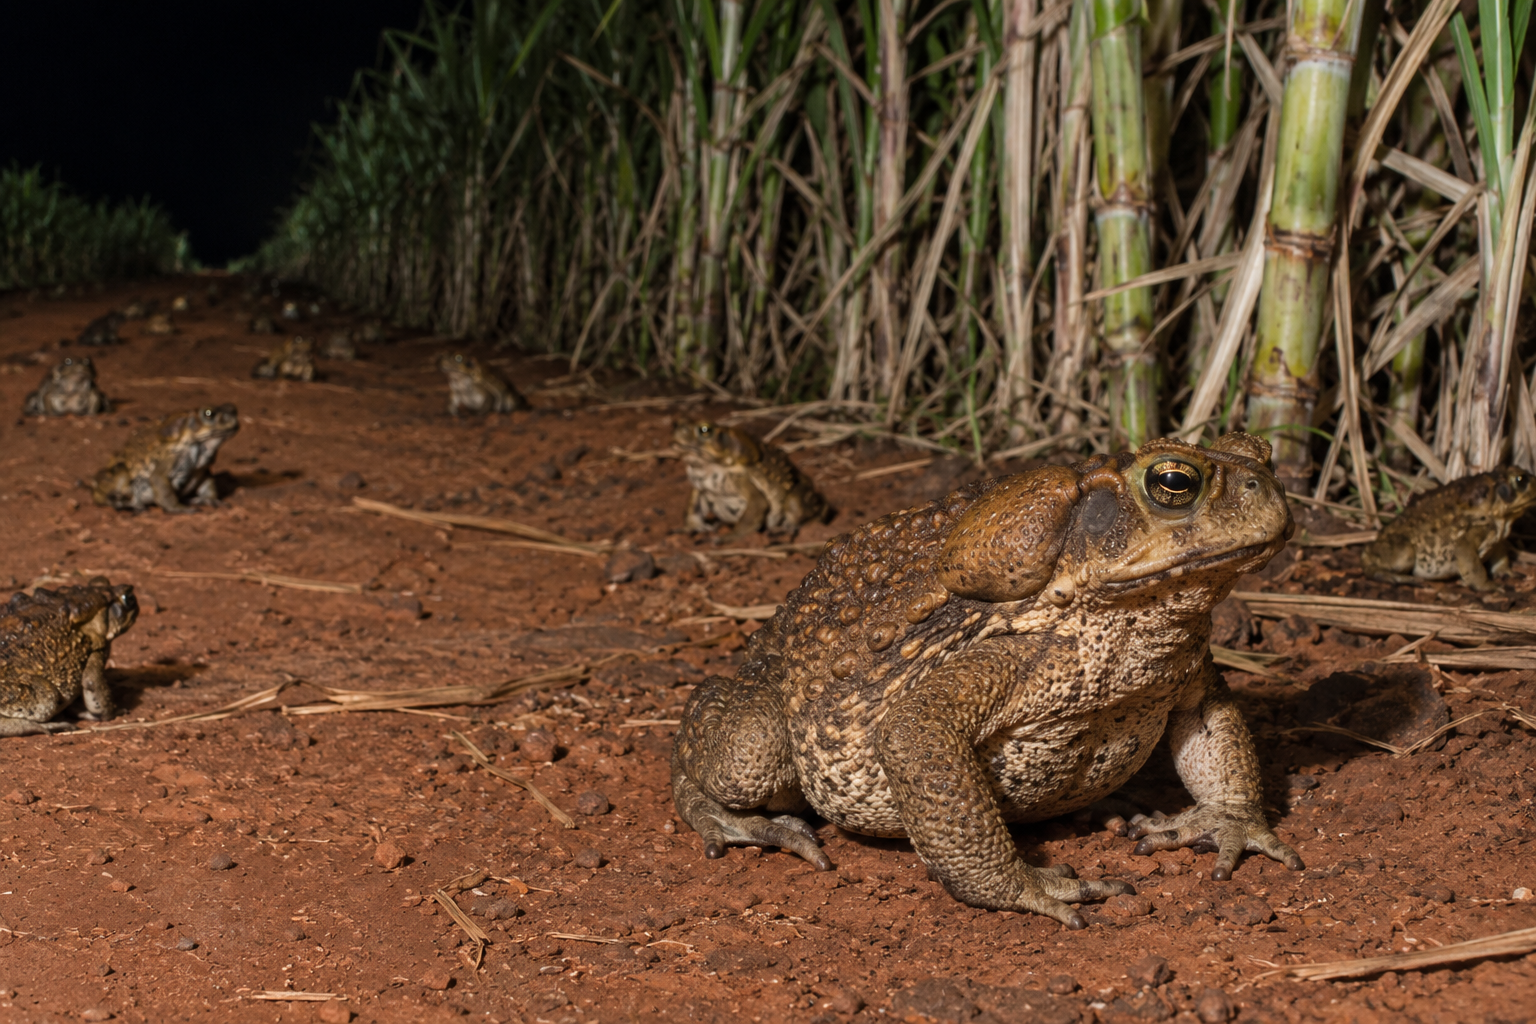
Sapo-cururu na Austrália. Em 1935, 101 sapos-cururus (Rhinella marina), nativos das Américas, foram levados a Queensland para controlar besouros da cana-de-açúcar; cerca de 2 400 descendentes foram soltos. Os besouros continuaram lá. Os sapos, sem predadores capazes de tolerar a sua toxina, espalharam-se por mais de um milhão de quilômetros quadrados e hoje são estimados em mais de 200 milhões.
Tucunaré em reservatórios. Predador amazônico introduzido em lagos e represas de outras bacias, entre eles o Lago Paranoá, reduz as populações de peixes pequenos nativos, que não o reconhecem como predador.
Capim-gordura e braquiária no Cerrado. Gramíneas africanas trazidas como pasto, estabelecidas em áreas protegidas, formam tapetes densos que sombreiam as gramíneas nativas e acumulam palha que alimenta um fogo mais intenso.
Nem toda espécie exótica vira invasora: café, soja e boi são exóticos no Brasil e dependem de cultivo e manejo. Só é invasora a que se estabelece sem ajuda, se espalha e causa impacto medido. Do ponto de vista desta página, a pergunta que separa os casos é a de sempre: que fator dependente da densidade segura essa população no lugar novo? Se a resposta for “nenhum, por enquanto”, a curva esperada é um J. O PAS de 2011 (1.ª etapa, itens 68 a 74) trabalhou o tema a partir de um texto sobre a água de lastro dos navios, e o de 2023 (item 59) julgou errada a ideia de usar a água de lastro para introduzir espécies exóticas como estratégia de equilíbrio; os impactos das invasões estão em impactos ambientais e biodiversidade.
Populações pequenas correm riscos que as grandes não correm
No outro extremo estão as populações que ficaram pequenas demais. Para elas, a capacidade de suporte deixa de ser o problema, e aparecem riscos que não existem em populações de milhares.
Acaso demográfico. Em uma população de 10 000, a proporção de machos e fêmeas e o número de filhotes por ano ficam perto da média. Em uma de 20, uma sequência de nascimentos de um só sexo ou dois anos ruins de reprodução bastam para comprometer a geração seguinte.
Dificuldade de encontrar parceiros e de viver em grupo. Abaixo de certa densidade, a taxa de crescimento per capita cai em vez de subir: os indivíduos não se encontram para acasalar, o bando não se defende de predadores, a planta não recebe pólen. É o efeito Allee, o contrário do que a curva logística prevê para populações ralas.
Perda de variabilidade genética. Com poucos reprodutores, o cruzamento entre parentes se torna frequente e alelos se perdem ao acaso de uma geração para outra. Os mecanismos estão em genética de populações.
Catástrofes. Um incêndio, uma seca ou uma epidemia (fatores independentes da densidade) que retirariam uma fração de uma população grande podem eliminar uma pequena por inteiro.
Chama-se população mínima viável o tamanho abaixo do qual a probabilidade de extinção nas décadas seguintes se torna alta. Ela não é um número universal: depende da espécie, da estratégia de vida e do ambiente.
A fragmentação do habitat agrava tudo isso, porque divide uma população grande em várias pequenas e fecha duas das quatro portas: sem imigração e emigração entre os fragmentos, cada um fica entregue ao próprio acaso. Os corredores ecológicos reabrem essas portas.
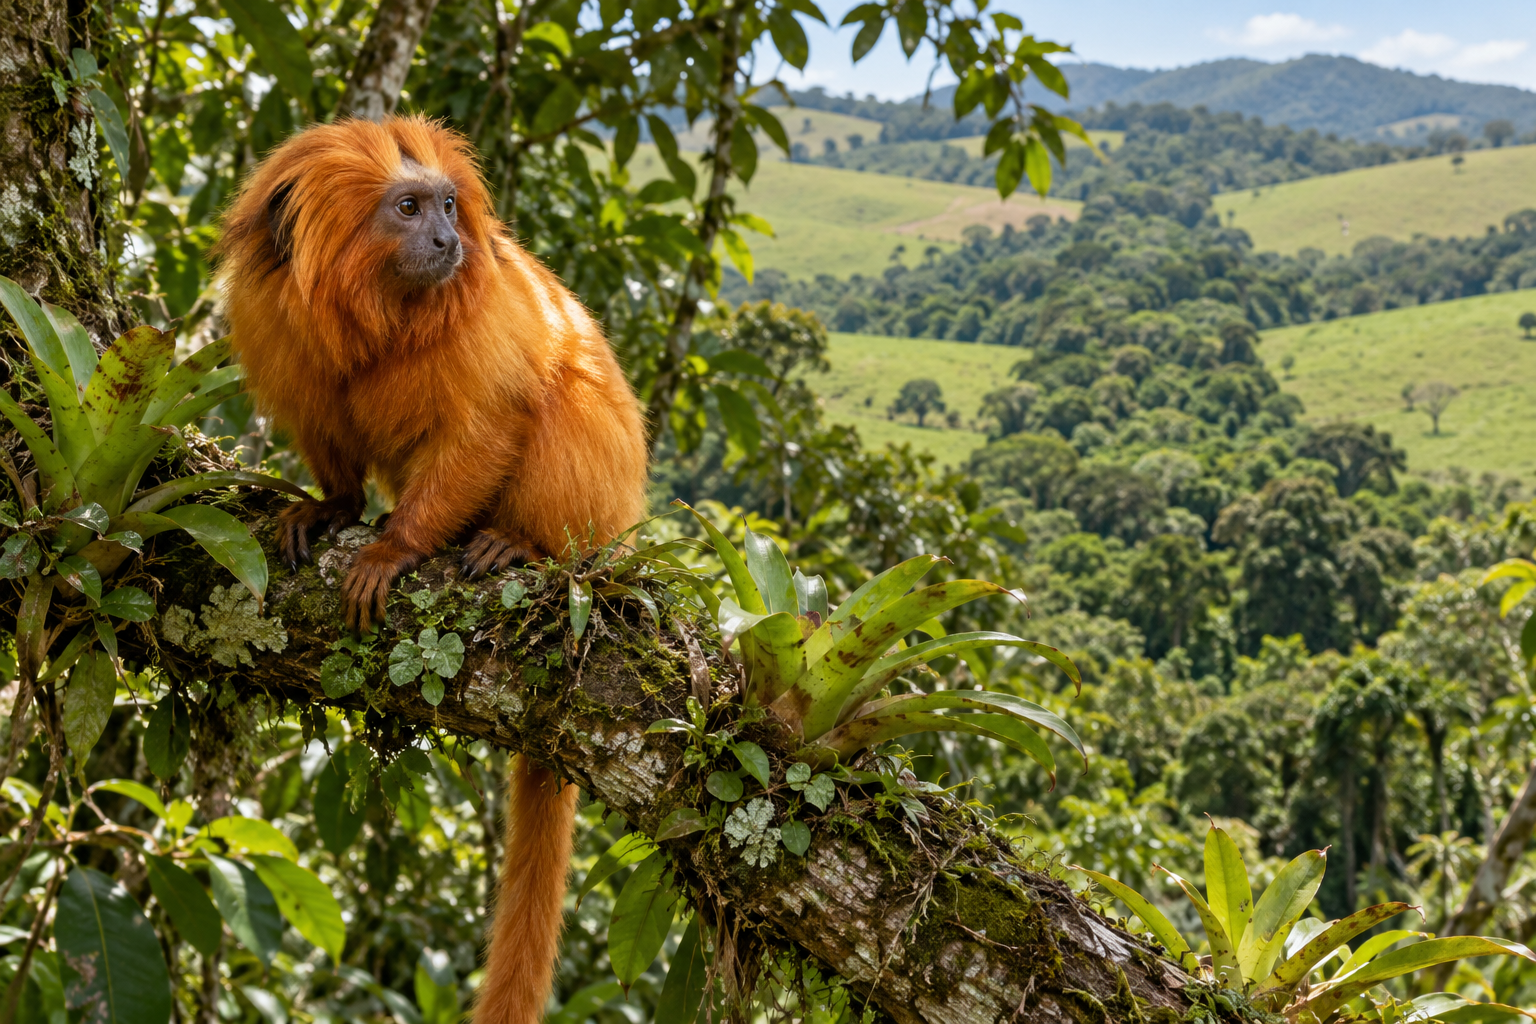
O caso brasileiro mais conhecido é o do mico-leão-dourado, que vive só em fragmentos de Mata Atlântica do interior do estado do Rio de Janeiro. Nos anos 1970 restavam cerca de 200 animais na natureza. Com a reintrodução de micos nascidos em zoológicos a partir de 1984, a proteção de fragmentos e o plantio de corredores entre eles, a população chegou a cerca de 3 700 em 2014. Entre 2017 e 2018, um surto de febre amarela reduziu-a a cerca de 2 500, e o censo divulgado em 2023 pela Associação Mico-Leão-Dourado estimou 4 800. A história tem as peças desta página: uma população pequena e fragmentada, um golpe que não dependia do manejo (a epidemia) e uma recuperação que só foi possível porque havia indivíduos e floresta conectada para repor as perdas.
Como ler um gráfico ou uma tabela de população
Itens de dinâmica populacional quase sempre trazem um gráfico, uma tabela ou uma fórmula. Seis perguntas, nesta ordem, resolvem a maior parte deles.
O que está nos eixos, e em que unidade? Indivíduos, densidade, biomassa, peles compradas, porcentagem de sobreviventes. Um índice não é uma contagem. Uma escala logarítmica transforma exponencial em reta.
Qual população, em que área e em que período? Uma queda em uma lagoa pode ser emigração para a lagoa vizinha.
Altura ou inclinação? A altura da curva é o tamanho da população; a inclinação é a velocidade de crescimento. “Maior população” e “maior crescimento” são pontos diferentes da curva em S: K e K/2.
Onde está o patamar? Se a curva se estabiliza, o patamar é a capacidade de suporte, e a metade dele marca o crescimento mais rápido.
Por qual porta? Se o número mudou, foi por nascimentos, mortes, imigração ou emigração. Se o texto não diz, a causa não está nos dados.
O que os dados mostram e o que eles não mostram? Um gráfico registra o que aconteceu. A causa (predação, fome, clima) exige outra evidência. Duas curvas que oscilam juntas, com atraso, são compatíveis com mais de uma explicação.
Exemplo resolvido (julgar itens a partir de uma tabela). Em um açude recém-formado foram soltos 50 peixes de uma espécie, e a população foi estimada todo ano, pelo mesmo método (valores hipotéticos).
ano
0
1
2
3
4
5
6
7
8
peixes
50
100
195
370
640
910
1 090
1 170
1 195
Julgue: (I) “Nos dois primeiros anos, o crescimento foi aproximadamente exponencial.” (II) “A população cresceu mais depressa no último ano, quando era maior.” (III) “A capacidade de suporte do açude para a espécie é de cerca de 1 200 peixes.” (IV) “A tabela demonstra que a falta de alimento estabilizou a população.”
Resolução. (I) Certo: 50, 100, 195 é dobrar a cada ano, quase exatamente. (II) Errado: os ganhos anuais são 50, 95, 175, 270, 270, 180, 80 e 25; o maior ganho está entre os anos 3 e 5, quando a população passava por 600, e o do último ano é o menor de todos. (III) Certo: os últimos valores (1 170 e 1 195) quase não mudam, e o patamar fica perto de 1 200. (IV) Errado: a tabela mostra que a população se estabilizou, não por quê. Alimento, espaço, parasitas e predadores são candidatos, e nenhum deles foi medido. Conferência: metade de 1 200 é 600, justamente o tamanho em torno do qual os ganhos anuais foram máximos (370 a 910).
Treze erros clássicos sobre populações
Confundir tamanho com densidade. Mais indivíduos não é mais densidade se a área também aumentou.
Julgar por uma taxa só. “A mortalidade aumentou, logo a população diminuiu” ignora as outras três portas.
Trocar número absoluto por taxa. A população com mais nascimentos pode ter a menor taxa de natalidade.
K/2 no lugar de K, ou o contrário. Em K/2 o crescimento é máximo; em K é nulo. O item 91 do PAS 1 de 2025 trocou um pelo outro.
Crescimento per capita por crescimento absoluto. O primeiro é máximo no início da curva em S; o segundo, no meio.
Achar que mais alimento aumenta o potencial biótico. Aumenta a capacidade de suporte e reduz a resistência do meio; o potencial é da espécie.
Chamar de independente da densidade o que se intensifica com a população. Competição, parasitas e predação são dependentes; geada, seca e fogo são independentes.
Tratar equilíbrio como imobilidade. Populações em equilíbrio oscilam.
Eliminar o predador para proteger a presa. O item 141 do PAS 1 de 2005 propôs isso e estava errado.
Ler causa onde só há curva. O gráfico mostra o que aconteceu; o porquê pede outra evidência.
Supor que a espécie exótica é contida de imediato. Sem inimigos naturais, a resistência do meio é menor, e a população pode passar dos tamanhos da região de origem.
Confundir pirâmide etária com pirâmide ecológica, e curva de sobrevivência com curva de crescimento.
Aceitar absolutos. “Só existe”, “exclusivamente”, “não influenciam”, “imediatamente”: no item 76 do PAS 1 de 2011, as três opções erradas eram desse tipo.
Como a prova cobra. No PAS, a dinâmica populacional aparece presa a um texto ou a uma tabela de ambiente: um trecho de Darwin sobre o que determina o número de indivíduos de uma espécie (2005, item 141), a pesca predatória e a curva de declínio (2006, item 20, tipo C com gráficos), a tabela do gaivotão e dos restos de pesca (2011, item 76, tipo C), o manejo do pirarucu em Mamirauá (2017, itens 91 e 93) e a consequência populacional de uma relação ecológica em item discursivo (2015, item 54). Na prova de 2025, o tema veio como Matemática: o modelo logístico do bodião-de-noronha (item 91). Em 2017, o mesmo texto do pirarucu sustentou um item de progressão geométrica sobre a queda e a recuperação de um estoque (item 90). Em nenhum desses itens a prova pediu que se deduzisse uma equação de crescimento: pediu a leitura do que sobe, do que desce e de onde a curva está.
O essencial em meia página
População: indivíduos de uma espécie, em uma área, em um período. Descreve-se por tamanho (N), densidade (N por área ou volume), distribuição espacial (agregada, uniforme, aleatória), estrutura etária e razão sexual.
Medir: censo quando dá; parcelas (densidade média × área total); marcação e recaptura, N≈M×C÷R, válida para população fechada, marcas que não caem e mesma chance de captura. Índice (pegadas, peles) não é contagem.
Quatro taxas: natalidade e imigração somam; mortalidade e emigração subtraem. Cresce se as entradas superam as saídas, ainda que a mortalidade aumente (PAS 1 2017, itens 91 e 93, certos). Taxa per capita: r = (nascimentos − mortes) ÷ N.
Curva em J: potencial biótico, ΔN≈rN, N=N0×2t/T. Só enquanto o recurso sobra (renas: de 29 a 6 000 em 19 anos).
Curva em S: resistência do meio, ΔN≈rN(1−N/K). Estabiliza em K, onde natalidade = mortalidade. Crescimento absoluto máximo em K/2 (PAS 1 2025, item 91: “para de crescer em 4.000”, errado, com K=8000).
K muda: mais alimento, maior K e menor resistência do meio, com o mesmo potencial biótico (gaivotão, PAS 1 2011, item 76). Ultrapassar K pode derrubá-lo (renas: 6 000 em 1963, 42 em 1966).
Freios: dependentes da densidade (competição, parasitas, doenças, predação) regulam; independentes (geada, seca, fogo, inseticida) reduzem sem regular.
Predador e presa: oscilam com atraso, o pico do predador depois do da presa (lebre 1903 e 1913; lince 1904 e 1915). Equilíbrio é dinâmico. Eliminar o predador não conserva a presa (PAS 1 2005, item 141, errado).
Estratégias:r (muitos filhotes, sem cuidado, curva de sobrevivência do tipo III) e K (poucos filhotes, cuidado longo, tipo I); tipo II é mortalidade constante. Estrategistas K se recuperam devagar.
Pirâmide etária: base larga, crescimento; barras parecidas, estabilidade; base estreita, declínio. Transição demográfica: a mortalidade cai antes da natalidade. Brasil: 203,1 milhões em 2022, pico projetado de 220,4 milhões em 2041, fecundidade de 1,57 em 2023.
Aplicações: pesca predatória é mortalidade maior que natalidade (PAS 1 2006, item 20); a retirada sustentável é o acréscimo anual, máximo em K/2; Mamirauá: contagem, cota de até 30% dos adultos, tamanho mínimo de 1,5 m, defeso. Praga e invasora são populações com K alto e freio fraco. População pequena: acaso, efeito Allee, perda genética, catástrofes; corredores reabrem a imigração.
Não foi possível consultar o banco de questões. O conteúdo da aula continua disponível.
Flashcards temporariamente indisponíveis
Não foi possível consultar os cartões de revisão.
Dinâmica Populacional - Aula 02 - Módulo VIII: Ecologia | Prof. Gui
Prof. Guilherme Goulart - Biologia · 17:16
Introdução. Em 17 minutos, a aula define população e densidade, apresenta natalidade, mortalidade, imigração e emigração e chega ao gráfico que o autor chama de mais importante: a curva do potencial biótico contra a curva real, separadas pela resistência do meio. É o conteúdo das seções “População é uma espécie, um lugar e uma data”, “Só há quatro portas para o número mudar” e “Com freio, a curva vira um S”. Assista antes de ler.
Ciclos de predador-presa | Ecologia | Biologia | Khan Academy
Khan Academy Brasil · 6:15
Aprofundamento. O vídeo, narrado em português do Brasil, trata do efeito das interações entre espécies sobre o tamanho das populações e mostra como predador e presa influenciam os padrões de crescimento e declínio um do outro. É a seção “Predador e presa: duas curvas que oscilam com atraso”: depois de assistir, volte à tabela de lince e lebre e localize os picos de 1903–1904 e de 1913–1915.
Transição Demográfica: Entenda o Gráfico e as Quatro Fases AULA COMPLETA| Diego Sperle (Demografia)
Ventifacto · 13:03
Aplicação à população humana. A aula percorre as fases da transição demográfica, mostra como a pirâmide etária registra a história de um país e discute o envelhecimento da população brasileira. É a segunda metade da seção “Pirâmide etária: a população separada por idade e sexo”, com o olhar da Geografia: repare que a explosão populacional vem da queda da mortalidade antes da queda da natalidade.
DINÂMICA DE POPULAÇÕES NA PROVA ENEM PPL 2019 - QUESTÃO 13 - lista 31
BIOLOGIA NA VEIA COM PROF. GIAN BRITO · 5:40
Resolução de questão. Em pouco menos de seis minutos, o professor resolve uma questão de Ecologia do ENEM PPL 2019 sobre dinâmica de populações. Use como treino do protocolo da seção “Como ler um gráfico ou uma tabela de população”: pause no enunciado, decida a resposta e só então acompanhe a resolução.
Uma contagem registra o tamanho populacional naquele momento; acompanhar a dinâmica exige observar entradas, saídas, nascimentos e mortes.Três distribuições espaciais com a mesma densidade (24 indivíduos por quadro). A agregada é a mais comum, porque os recursos vêm em manchas e muitas espécies vivem em grupo; a uniforme aparece quando os indivíduos se repelem (territórios, competição entre raízes); a aleatória exige ambiente homogêneo e indivíduos que não se atraem nem se evitam. A densidade média não distingue as três, e é por isso que poucas parcelas dão estimativa ruim em uma população agregada. Diagrama autoral.Marcação e recaptura. Se os 80 marcados se misturam à população, a fração de marcados na segunda amostra (12 em 60, ou 20%) é a fração de marcados na lagoa: N≈M×C÷R=80×60÷12=400. A estimativa só vale se, entre as duas capturas, a população não ganhou nem perdeu indivíduos, as marcas não caíram e marcados e não marcados têm a mesma chance de captura. Como R está no denominador, tudo o que reduz os recapturados superestima N. Diagrama autoral.As quatro taxas. A população cresce enquanto a soma das entradas (natalidade e imigração) supera a soma das saídas (mortalidade e emigração), ainda que a mortalidade aumente. A taxa de crescimento per capita é r = (nascimentos − mortes) ÷ N. Em uma população isolada, como a de uma ilha, só duas portas funcionam. Diagrama autoral.À esquerda, as duas curvas de crescimento: a exponencial (o que a espécie faria sem limite, ΔN≈rN) e a logística (o que o ambiente permite, ΔN≈rN(1−N/K)). A distância entre elas é a resistência do meio. À direita, o acréscimo por unidade de tempo em função do tamanho: máximo em K/2, nulo em K. Na metade da capacidade de suporte a população não para de crescer; é onde cresce mais depressa (PAS 1 2025, item 91). Diagrama autoral.Dois conjuntos de dados reais. À esquerda, a levedura de Carlson (1913): quase exponencial até a 6.ª hora, crescimento mais rápido entre a 7.ª e a 8.ª hora (de 257,3 a 350,7, perto de K/2) e estabilização em torno de 660 unidades. À direita, as renas de St. Matthew (Klein, 1968): quatro contagens ligadas por segmentos, não uma curva contínua. A população passou muito da capacidade de suporte, esgotou o líquen e caiu de 6 000 para 42. Diagrama autoral com os dados das fontes citadas.Peles de lebre-americana e de lince-do-canadá compradas pela Companhia da Baía de Hudson, de 1900 a 1920 (tabulação de Odum, 1953, a partir de MacLulich, 1937). Os picos da presa (1903 e 1913) precedem os do predador (1904 e 1915) em um a dois anos: a população do predador responde com atraso à abundância da presa. Nenhuma das duas fica constante e nenhuma desaparece: é o que equilíbrio quer dizer em Ecologia. O número de peles é um índice das populações, não uma contagem. Diagrama autoral com os dados das fontes citadas.Os três tipos de curva de sobrevivência, com o eixo vertical em escala logarítmica. Tipo I: a mortalidade se concentra na velhice (poucos filhotes, muito cuidado; estrategistas K). Tipo II: a chance de morrer é aproximadamente a mesma em qualquer idade, e a curva é uma reta. Tipo III: a mortalidade se concentra no início da vida (muitos descendentes, pouco cuidado; estrategistas r). Diagrama autoral.Três formas de pirâmide etária. Base larga: muitos jovens entrarão em idade reprodutiva, e a população tende a crescer mesmo que cada casal passe a ter menos filhos (inércia demográfica). Barras parecidas: nascimentos e mortes próximos do equilíbrio. Base estreita: menos jovens que adultos, população que envelhece e tende a diminuir. Não confundir com pirâmides ecológicas, que descrevem uma comunidade por nível trófico. Diagrama autoral, com proporções ilustrativas.A disponibilidade de água e alimento pode modificar a capacidade de suporte; ela não é uma propriedade fixa do ambiente.Densidade relaciona o número de indivíduos à área ou ao volume. Comparações exigem delimitações e métodos compatíveis.Nascimentos acrescentam indivíduos à população. Seu efeito precisa ser combinado com mortes e movimentos de migração.Diferenças de área ou esforço de amostragem podem alterar as contagens observadas sem indicar crescimento populacional real.A saída de indivíduos pode reduzir uma população local sem representar mortalidade ou redução de toda a população regional.Marcar para contar. Se M aves são marcadas e, em uma segunda captura de C aves, R têm anilha, a população é estimada por N≈M×C÷R. A conta supõe população fechada, marcas que não caem e mesma chance de captura para todos. Imagem ilustrativa.O pirarucu respira ar e precisa subir à superfície. Em Mamirauá, contadores treinados registram essas subidas para estimar quantos adultos há em cada lago; a cota de pesca é de, no máximo, 30% dos adultos contados. Imagem ilustrativa.Levado à Austrália em 1935 para controlar besouros da cana, o sapo-cururu não encontrou predadores capazes de tolerar sua toxina e se espalhou por mais de um milhão de quilômetros quadrados. Uma espécie que chega sem inimigos naturais cresce perto do potencial biótico. Imagem ilustrativa.Sem onças e com gramado irrigado o ano todo, a capivara encontra capacidade de suporte alta e resistência do meio baixa. Uma espécie nativa também forma populações densas quando perde os freios; é assim que surgem as pragas. Imagem ilustrativa.Lince e lebre oscilam em ciclos de nove a dez anos, e o pico do predador vem um a dois anos depois do pico da presa. Nenhuma das duas populações fica constante e nenhuma desaparece: equilíbrio, em Ecologia, é essa oscilação. Imagem ilustrativa.Cerca de 200 micos-leões-dourados restavam nos anos 1970; o censo de 2023 estimou 4 800. Corredores de floresta entre fragmentos reabrem a imigração e a emigração, as duas portas que a fragmentação fecha para populações pequenas. Imagem ilustrativa.Em frasco fechado, a levedura cresce quase exponencialmente, desacelera e para: o açúcar acaba e o álcool se acumula. Na série de Carlson (1913), o maior ganho por hora ocorreu perto da metade do patamar final, e não no início nem no fim. Imagem ilustrativa.
Rota PAS 1
Ecologia I: relações, cadeias e teias · PAS 1
Fontes desta página
Os materiais abaixo contribuíram para a explicação e os exemplos deste assunto.
Rota PAS 1 — Ecologia I: relações, cadeias e teias · Antes de começar: dez minutos de aquecimento; Dinâmica populacional: o que segura o crescimento (quatro taxas, potencial biótico, resistência ambiental, capacidade de suporte, K/2; itens PAS 1 2017/91 e 93 com o texto-base de Mamirauá, 2011/76); Leia como na prova (modelo logístico do bodião, PAS 1 2025/91); Como a banca cobra este capítulo; exercícios 10 a 12 e 15; Banco de treino (itens sobre espécie exótica, lixão, duplicação e modelo logístico)
Recorte por assunto: só a dinâmica de populações. Relações ecológicas, níveis de organização, cadeias e teias e pirâmides ecológicas têm páginas próprias. A página acrescenta, ausentes do capítulo, distribuição espacial, amostragem por parcelas, marcação e recaptura, estrategistas r e K, curvas de sobrevivência, pirâmides etárias e conservação de populações pequenas.
Biologia EM1 — Capítulo 11: Ecologia III — relações, populações e sucessão · Abertura (renas de St. Matthew, Klein 1968); Contar uma população: quem entra, quem sai; Crescer sem limite, crescer com limite (levedura de Carlson, capacidade de suporte, fatores dependentes e independentes da densidade, Malthus, Verhulst e Pearl); Predador e presa: o equilíbrio que oscila (série lince–lebre, hipóteses alternativas, Kaibab); A população humana, em uma página (ONU WPP 2024, IBGE 2024); trechos de Controle biológico e de Exótica, estabelecida, invasora usados como aplicação (sapo-cururu, tucunaré, capim-gordura, capivara e lagarta-do-cartucho)
Fonte dos dados reais usados na página: contagens de renas, tabela de levedura, série de peles de lince e lebre e projeções demográficas. As respostas conferidas estão em utils/material/biologia/EM1/livro/capitulos/resp11.tex.
Biologia EM1 — bloco PAS do Capítulo 11 · Texto-base I (PAS 1 2025, item 91); Texto-base VIII (PAS 1 2011, item 76, texto e tabela do gaivotão); Texto-base XII (PAS 1 2005, item 141, trecho de Darwin); Texto-base XIII (PAS 1 2006, item 20, gráficos redesenhados e descritos); gabarito comentado
Fonte dos itens reais reproduzidos por inteiro com seus textos-base e gabaritos. O gabarito do item 2005/141 é o preliminar, único disponível no acervo. Os dados do manejo do pirarucu (cota de até 30% dos adultos contados, tamanho mínimo de 1,5 m, defeso), do Censo 2022 (idade mediana, parcela com 65 anos ou mais) e do mico-leão-dourado foram conferidos em páginas do Instituto Mamirauá, do IBGE e da Associação Mico-Leão-Dourado em 2/10/2026.