Dois pais sem a doença têm um filho com anemia falciforme, e o médico diz que a chance de o próximo também ter é de 25 %. De onde sai esse número, por que ele não muda depois do primeiro filho, e como a mesma conta explica o gato sem pelo que pula uma geração e o daltonismo que passa do avô ao neto?
O que você vai aprender
Usar com precisão gene, alelo, locus, homozigoto, heterozigoto, dominante, recessivo, genótipo, fenótipo, linhagem pura, gerações P, F1 e F2 e cruzamento-teste, e distinguir dominante de frequente e portador de doente.
Enunciar a primeira lei de Mendel, montar o quadro de Punnett de um gene (Aa × Aa, Aa × aa, AA × aa) e obter as proporções 1:2:1 e 3:1, relacionando a segregação dos alelos à separação dos homólogos na meiose I.
Aplicar as regras do produto e da soma, a independência das gestações e a mudança de denominador (probabilidade condicional) para calcular probabilidades de um ou vários filhos, inclusive 'pelo menos um' pelo complementar.
Enunciar a segunda lei de Mendel, resolver cruzamentos di-híbridos (9:3:3:1) e tri-híbridos pelo método do produto, e calcular o número de gametas (2^n), genótipos (3^n) e fenótipos de um heterozigoto múltiplo.
Reconhecer quando a segregação independente falha (genes ligados no mesmo cromossomo) e explicar o papel do crossing-over na recombinação.
Distinguir dominância completa, dominância incompleta e codominância pelas proporções e pelo fenótipo do heterozigoto, e resolver cruzamentos com alelos múltiplos (pelagem de coelhos, sistema ABO) e com o sistema Rh.
Explicar a aglutinação e a compatibilidade nas transfusões de hemácias no sistema ABO e a doença hemolítica do recém-nascido por incompatibilidade Rh, com a função da imunoglobulina anti-D.
Reconhecer genes letais (proporção 2:1), pleiotropia, epistasia (9:3:4) e herança poligênica (distribuição contínua) e julgar itens sobre o papel do ambiente no fenótipo.
Explicar a determinação cromossômica do sexo (XY e ZW, sexo homogamético e heterogamético) e resolver cruzamentos de herança recessiva ligada ao X (daltonismo, hemofilia A, Duchenne), aplicando as regras: o menino afetado herdou da mãe, o pai não passa X ao filho, o homem afetado passa X a todas as filhas.
Distinguir herança ligada ao X, restrita ao Y (holândrica), influenciada pelo sexo e limitada ao sexo, e explicar a inativação do X em mulheres heterozigotas.
Ler heredogramas com os símbolos padronizados, decidir entre dominante e recessivo e entre autossômico e ligado ao X pelas regras de exclusão, deduzir genótipos e calcular probabilidades em cadeia, inclusive com a marcação de três dígitos dos itens numéricos do PAS.
Explicar o efeito da consanguinidade sobre doenças recessivas raras e o papel do aconselhamento genético e da triagem neonatal (teste do pezinho), com linguagem técnica e respeitosa.
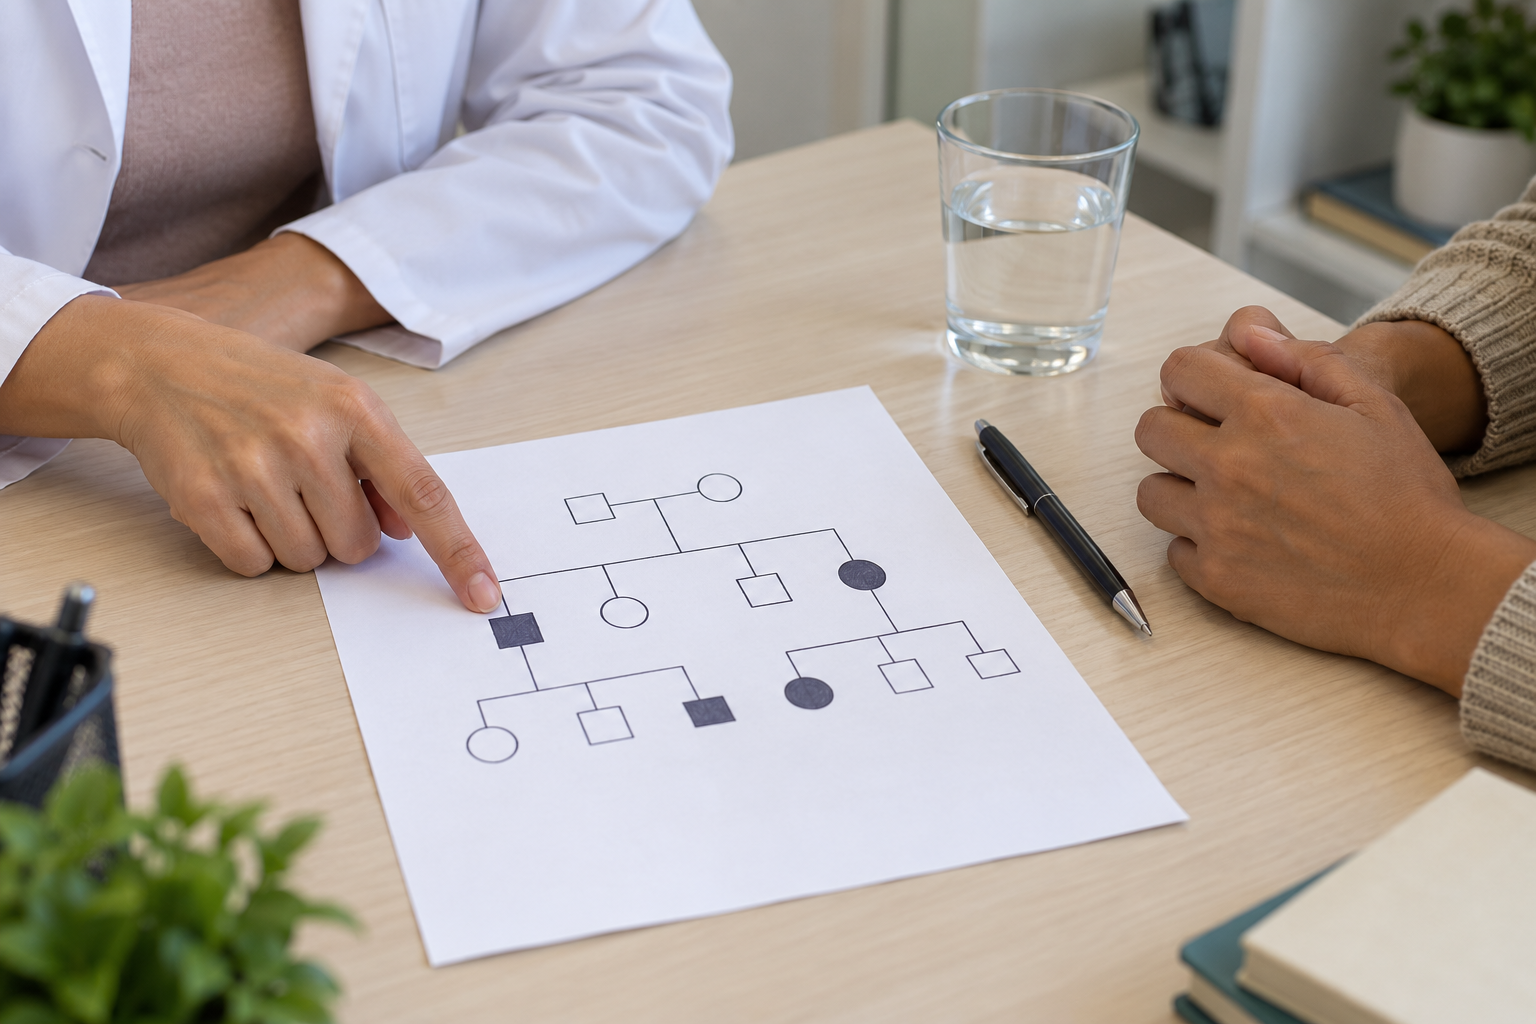
Um casal sem nenhuma doença recebe, no teste do pezinho do primeiro filho, o diagnóstico de anemia falciforme. Os dois fazem a eletroforese de hemoglobina e descobrem o que não sabiam: cada um carrega, em dose simples, o mesmo alelo. O médico diz que a chance de o próximo filho nascer com a doença é de 25 %, e que esse número não muda por causa do primeiro. A duas quadras dali, um criador cruza um gato Sphynx, sem pelo, com um gato comum: todos os filhotes nascem peludos, e, quando dois deles cruzam entre si, um em cada quatro netos nasce sem pelo, igual ao avô. Numa terceira família, o daltonismo aparece no avô, não aparece na filha e volta no neto, e quase só nos homens. As três cenas são a mesma conta. Em cada gestação, cada genitor entrega ao filho um só dos seus dois alelos, sorteado ao acaso, e a criança volta a ter dois. Quem sabe quais alelos cada um tem, e como o sorteio funciona, prevê as proporções antes de os filhos nascerem.
Essa conta foi feita pela primeira vez por um monge que contou ervilhas durante oito anos, e é o que esta página ensina. Começa por Mendel e pelo motivo de a ervilha ter funcionado; fixa o vocabulário que decide metade dos itens de prova (alelo, homozigoto, dominante, fenótipo); monta a primeira lei com o quadro de Punnett e a segunda com dois sorteios independentes; transforma proporções em probabilidades, inclusive quando o enunciado muda o denominador; percorre os casos em que o heterozigoto não copia o dominante (dominância incompleta, codominância, grupos sanguíneos ABO e Rh), os genes letais, a interação entre genes e a herança de muitos genes; explica por que o daltonismo e a hemofilia atingem mais homens; e termina nos heredogramas, nas probabilidades em cadeia e nos erros que os itens plantam. O que acontece com os cromossomos na meiose, a base física de todo o sorteio, está em mitose e meiose; como um gene vira proteína e como uma letra trocada cria um alelo novo, em DNA, RNA e síntese proteica e em mutações; a frequência dos alelos numa população inteira, em genética de populações.
Um monge, sete caracteres e uma conta que ninguém tinha feito
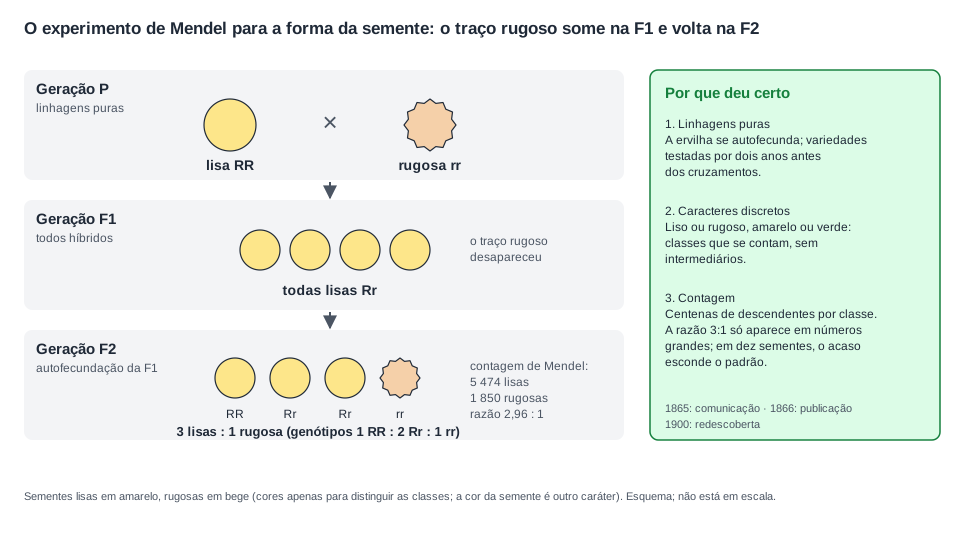
Gregor Mendel apresentou seus resultados em duas sessões da Sociedade de História Natural de Brünn, em 8 de fevereiro e 8 de março de 1865, e o texto saiu impresso nos anais da sociedade em 1866. Ele cruzou variedades de ervilha (Pisum sativum) que diferiam em um caráter de cada vez e contou os descendentes. Sete caracteres entraram no estudo: forma da semente (lisa ou rugosa), cor da semente (amarela ou verde), cor da flor (púrpura ou branca), forma da vagem, cor da vagem, posição da flor e altura da planta. Em todos eles o resultado teve a mesma forma. A primeira geração de híbridos mostrava só um dos dois traços; na geração seguinte, obtida por autofecundação dos híbridos, o traço que havia sumido voltava, e voltava numa proporção fixa. Para a forma da semente, Mendel contou 5 474 sementes lisas e 1 850 rugosas, uma razão de 2,96 para 1. Para a cor da flor, 705 plantas de flor púrpura e 224 de flor branca, 3,15 para 1. Sete caracteres, sete razões perto de 3:1.
Três escolhas explicam por que deu certo onde outros tinham falhado. Primeiro, a ervilha se autofecunda e tem flor fechada, o que permite manter linhagens puras: plantas que, cruzadas entre si por gerações, só produzem descendentes iguais a elas. Mendel passou dois anos só confirmando que suas variedades eram puras antes de cruzar qualquer coisa. Segundo, ele escolheu caracteres discretos, do tipo “ou isto ou aquilo”, em vez de caracteres contínuos como o peso da semente, que não se separam em classes. Terceiro, e foi o que ninguém fazia, ele contou os descendentes de cada classe e tratou os números como dados, em vez de descrever a aparência geral da prole. A razão 3:1 só aparece para quem conta centenas de indivíduos; em dez sementes ela se esconde no acaso.
Mendel não sabia o que eram genes nem cromossomos. Chamou de “fatores” as unidades que passavam de pais para filhos e postulou que cada planta tinha dois fatores para cada caráter, que os dois se separavam na formação das células reprodutivas e que o encontro deles na fecundação era um sorteio. O trabalho ficou sem repercussão por cerca de 35 anos. Em 1900, três botânicos chegaram a resultados equivalentes de modo independente e encontraram o artigo de Mendel ao procurar a literatura: Hugo de Vries, Carl Correns e Erich von Tschermak. Entre 1902 e 1904, Walter Sutton e Theodor Boveri mostraram que os cromossomos se comportavam na meiose exatamente como os fatores de Mendel deviam se comportar: vêm em pares, os pares se separam na formação dos gametas e cada gameta recebe um membro de cada par. É a teoria cromossômica da herança, e é por ela que a primeira lei tem uma base física, descrita em mitose e meiose. Em 1909 Thomas Hunt Morgan começou a trabalhar com a mosca Drosophila melanogaster, e em 1910 publicou o caso de um macho de olhos brancos cuja herança seguia o cromossomo X; esse e os trabalhos seguintes, que mostraram os genes enfileirados ao longo do cromossomo e trocando de lugar no crossing-over, deram a ele o Nobel de 1933.
O desenho do experimento de Mendel para a forma da semente. O traço rugoso some na F1 e volta na F2, em um quarto das sementes. Os números são os que Mendel publicou: 5 474 lisas e 1 850 rugosas. Diagrama autoral.
O vocabulário que decide metade dos itens
Boa parte dos itens de genética não pede conta nenhuma: pede que você saiba, com precisão, o que cada palavra quer dizer. O quadro abaixo é a lista mínima.
termo
significado
exemplo
gene
trecho de DNA com a receita de um produto (uma proteína ou um RNA)
o gene da cadeia beta da hemoglobina
locus (plural loci)
o endereço do gene no cromossomo
o gene da beta-globina fica no cromossomo 11
alelo
cada versão de um mesmo gene
os alelos A e S da beta-globina; R e r da forma da semente
homozigoto
os dois alelos iguais
RR, rr, SS
heterozigoto
os dois alelos diferentes
Rr, AS
dominante
alelo que se expressa no heterozigoto; escrito com maiúscula
R (semente lisa)
recessivo
alelo que só se expressa em homozigose; minúscula
r (semente rugosa)
genótipo
o par de alelos que o indivíduo carrega
Rr
fenótipo
a característica observável, física, fisiológica ou comportamental
semente lisa; olhos castanhos; grupo sanguíneo A
linhagem pura
indivíduos homozigotos que, cruzados entre si, só dão descendentes iguais
RR × RR → só RR
geração P, F1, F2
parental; primeira filial; segunda filial (F1 × F1 ou autofecundação da F1)
P: RR × rr; F1: Rr; F2: 1 RR : 2 Rr : 1 rr
cruzamento-teste
cruzamento com o homozigoto recessivo para descobrir o genótipo de um dominante
R? × rr
retrocruzamento
cruzamento de um híbrido com um dos genitores (ou com um indivíduo do genótipo parental)
Rr × RR ou Rr × rr
Fenótipo é tudo o que se observa, e resulta do genótipo e do ambiente
O fenótipo não se limita ao que se vê a olho nu. A cor dos olhos é fenótipo; a presença de uma enzima no sangue, o grupo sanguíneo, a altura e o comportamento também são. O PAS 3 de 2020 (item 73) afirmou que “as características físicas, como a cor dos olhos, e as psíquicas, como o comportamento socioafetivo, são exemplos de características fenotípicas de um indivíduo”, e o gabarito foi certo. O fenótipo também não depende só dos genes. A mesma planta de hortênsia dá flores azuis em solo ácido e rosadas em solo alcalino; a estatura de uma pessoa depende dos genes e da alimentação na infância. O PAS 3 de 2019 (item 17) deu como certo que “fatores ambientais, como a alimentação, contribuem para o fenótipo estatura do indivíduo”. A fórmula que resume a ideia é: fenótipo = genótipo + ambiente.
A fórmula tem um limite que a prova já cobrou. Se o enunciado diz que uma característica é determinada por um gene, atribuí-la ao ambiente contradiz o texto. No PAS 3 de 2018, o texto-base dizia que a cor da flor da glória-da-manhã é dada pelo gene P, e que plantas pp fazem flores rosa; o item 95 afirmou que “indivíduos pp produzem flores rosa devido à interação com o ambiente”, e o gabarito foi errado. A regra geral é verdadeira; a aplicação a um caso que o próprio texto fechou, não.
Duas palavras merecem cuidado especial. Dominante não quer dizer mais comum, mais forte nem mais saudável. Quer dizer só que o heterozigoto mostra o fenótipo desse alelo. A polidactilia (dedos a mais) é dominante e pouco frequente; o grupo sanguíneo O exige dois alelos recessivos e nem por isso é raro. O PAS 3 de 2010 (item 56) deu como certo que a frequência de um alelo na população independe de ele ser dominante ou recessivo. Portador, em genética, é o heterozigoto para um alelo recessivo: tem o alelo, não tem o fenótipo. Uma pessoa AS carrega o alelo da hemoglobina S e não tem anemia falciforme. A prova usa a palavra nesse sentido técnico; um item que tratasse o portador como doente em forma leve seria errado.
Primeira lei: cada gameta leva um só alelo de cada gene
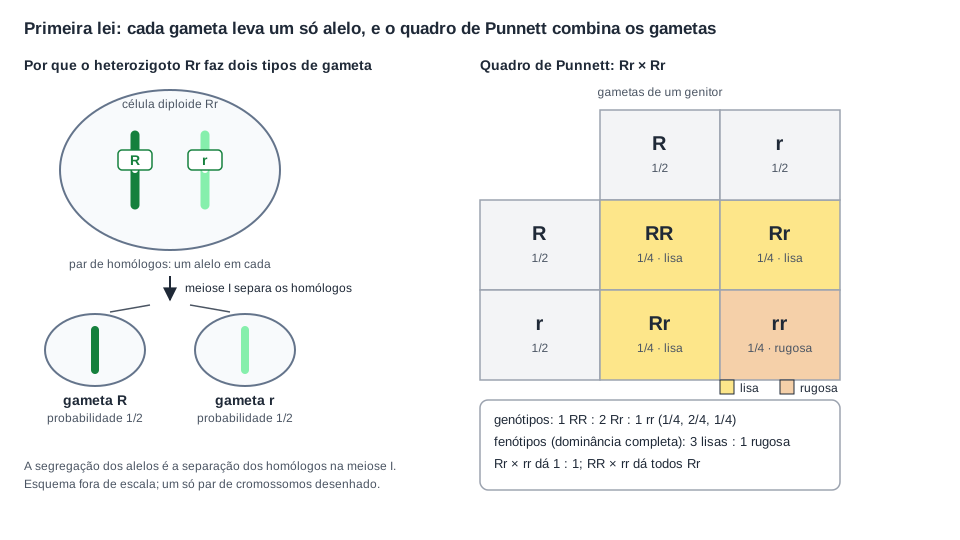
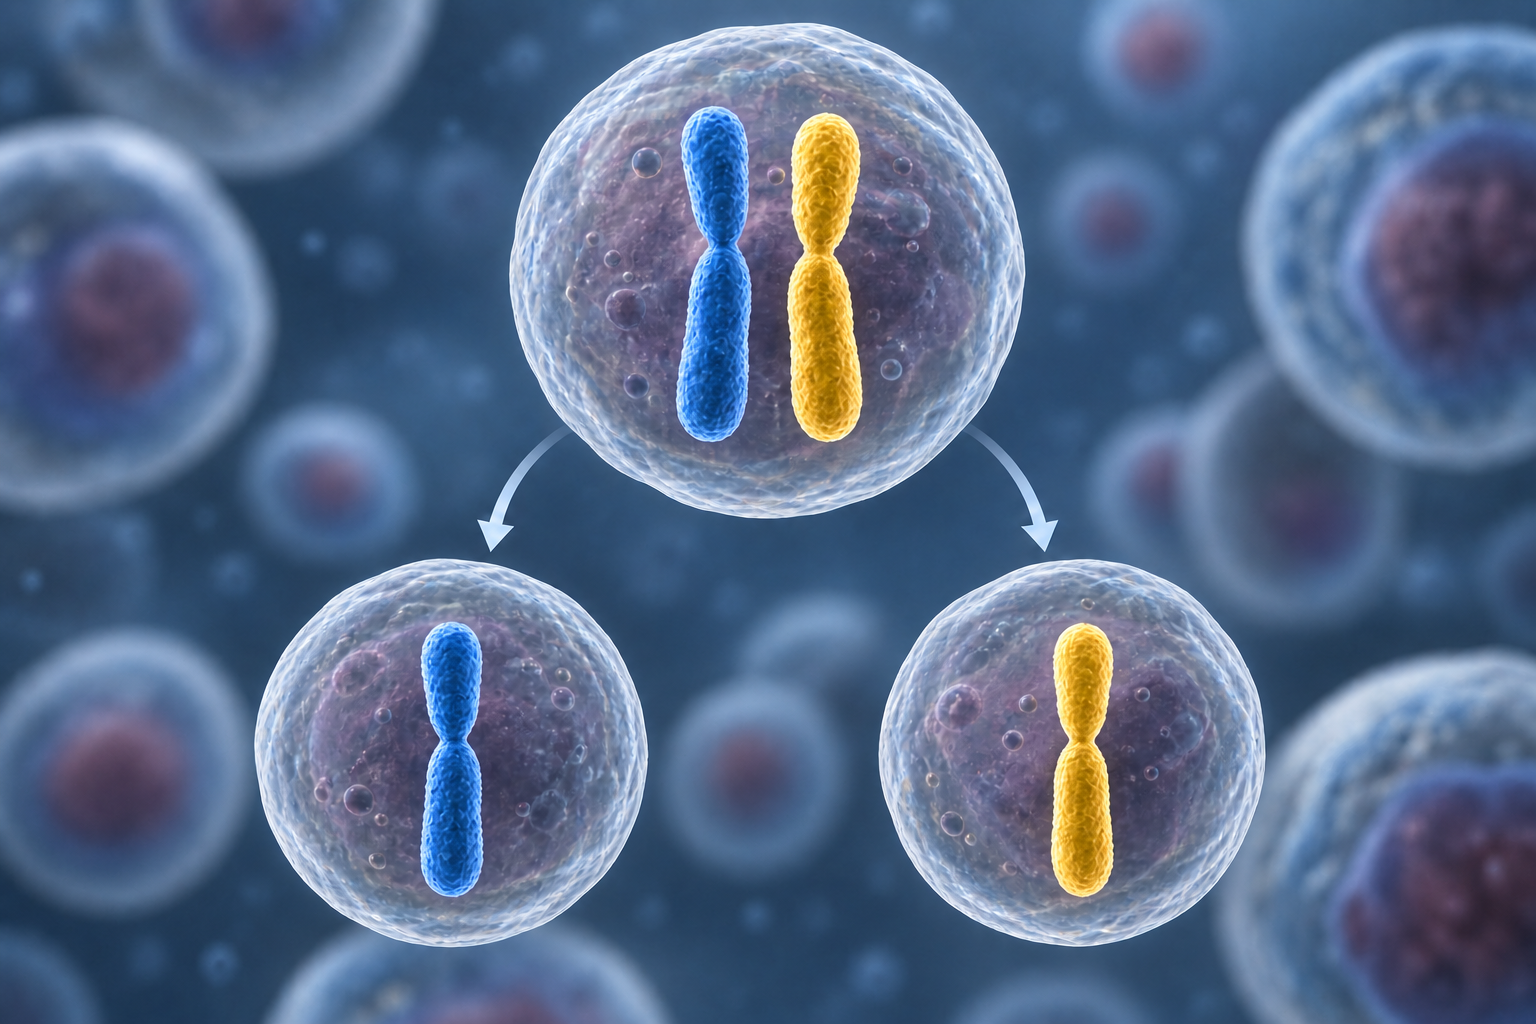
A primeira lei de Mendel, ou lei da segregação dos fatores, diz que os dois alelos de um gene se separam na formação dos gametas, de modo que cada gameta recebe um só deles, e os dois se reencontram na fecundação. Um indivíduo Rr produz gametas R e gametas r, metade de cada. Um RR produz só gametas R. A base física é a meiose I: os dois alelos estão em cromossomos homólogos, um em cada, e os homólogos vão para células diferentes.
Com isso a herança vira um sorteio de duas moedas. Cada genitor entrega um alelo com probabilidade 21 para cada um dos seus dois, e o filho é o encontro dos dois alelos sorteados. O quadro de Punnett organiza os encontros: gametas de um genitor nas linhas, do outro nas colunas, cada casa um encontro possível com a mesma probabilidade.
Rr × Rr
R (21)
r (21)
R (21)
RR (41)
Rr (41)
r (21)
Rr (41)
rr (41)
Genótipos: 41 RR, 42 Rr, 41 rr, a proporção 1:2:1. Fenótipos, com dominância completa: RR e Rr são lisas, rr é rugosa, 3:1. É a razão que Mendel contou, e é a proporção da F2 de qualquer cruzamento entre dois heterozigotos para um gene com dominância completa.
Os outros dois cruzamentos de um gene são mais simples. Rr × rr (o cruzamento-teste): o homozigoto só tem r para dar; o heterozigoto dá R ou r; a prole é 21 Rr e 21 rr, proporção 1:1 nos genótipos e nos fenótipos. RR × rr: toda a prole é Rr, com o fenótipo dominante. É o cruzamento que produz a F1 de Mendel e a F1 dos gatos.
A primeira lei em duas imagens. À esquerda, por que o heterozigoto produz dois tipos de gameta em partes iguais: os alelos estão em homólogos diferentes, e a meiose I os separa. À direita, o quadro de Punnett que combina os gametas de dois heterozigotos: 1:2:1 nos genótipos, 3:1 nos fenótipos. Diagrama autoral.
Exemplo resolvido: o cruzamento dos gatos Sphynx. Os gatos da raça Sphynx têm mutação nos dois alelos do gene KRT71, e a ausência de pelo é autossômica recessiva. Um Sphynx é cruzado com um gato comum sem nenhuma mutação nesse gene. (I) Qual o genótipo da F1? (II) Qual o fenótipo da F1? (III) Se dois gatos da F1 cruzarem, qual a chance, em porcentagem, de nascer um gato sem pelo? Esse foi o item 114 do PAS 3 de 2023, o único item de resposta construída da prova inteira.
Chame de P o alelo do pelo (dominante) e de p o do sem-pelo (recessivo). (I) O Sphynx é pp, porque a característica é recessiva e ele a manifesta; o gato comum, sem mutação, é PP. O Sphynx só pode dar p; o comum só pode dar P. Toda a F1 é Pp. (II) Como P é dominante, todos os gatos da F1 têm pelo. (III) Pp × Pp dá 41 PP, 42 Pp e 41 pp; só pp é sem pelo: 25 %. Conferência: a F1 inteira igual ao genitor dominante e a volta do recessivo em um quarto da F2 é exatamente o padrão de Mendel; se a resposta de (III) desse 50 % ou 75 %, o quadro foi montado com um genitor errado.
Exemplo resolvido: de proporção a número. Plantas de glória-da-manhã heterozigotas Pp, de flores púrpuras, são autofecundadas e produzem 1 400 descendentes. Quantos terão flores rosa, sabendo que só pp é rosa? A fração esperada de pp é 41, e 41 de 1 400 é 350. Foi o item 98 do PAS 3 de 2018, de resposta numérica, e a marcação pedida foi 350. Conferência: 350 × 4 = 1 400. A regra geral é multiplicar a fração do quadro pelo total; “3:1” quer dizer 3 em 4, isto é, 43 e 41, nunca 3 % e 1 %.
Proporção esperada não é resultado garantido
Um quarto é a probabilidade de cada gestação, não uma cota a cumprir. Um casal Aa × Aa pode ter quatro filhos aa seguidos, com probabilidade (41)4=2561, e pode ter dez filhos sem nenhum aa. Em 1 400 descendentes o número de pp fica perto de 350, mas raramente é exatamente 350. É por isso que Mendel contou milhares de sementes, e é por isso que o cruzamento-teste com poucos descendentes não prova nada: se um gato de pelo cheio cruzado com um Sphynx gera três filhotes, todos com pelo, ele pode ser PP ou pode ser Pp com sorte, porque (21)3=81. Um só filhote sem pelo, ao contrário, prova que ele é Pp.
Probabilidade em genética: multiplicar, somar e ler o denominador
Todo cruzamento é um problema de probabilidade, e três regras resolvem quase todos os itens.
As três regras
Regra do “e” (produto). Eventos independentes, que não se influenciam, têm probabilidade conjunta igual ao produto das probabilidades. A chance de receber r do pai e r da mãe é 21×21=41. A chance de uma criança ser menina e ter o fenótipo recessivo, num casal Aa × Aa, é 21×41=81, porque o sexo e o gene autossômico são sorteios independentes.
Regra do “ou” (soma). Eventos que não podem acontecer ao mesmo tempo têm probabilidade de “um ou outro” igual à soma. A chance de ser Rr ou rr num cruzamento Rr × Rr é 42+41=43.
Independência das gestações. Cada gestação é um sorteio novo. A probabilidade de 41 vale para o primeiro filho, para o quinto e para o filho depois de três afetados. O sorteio não tem memória.
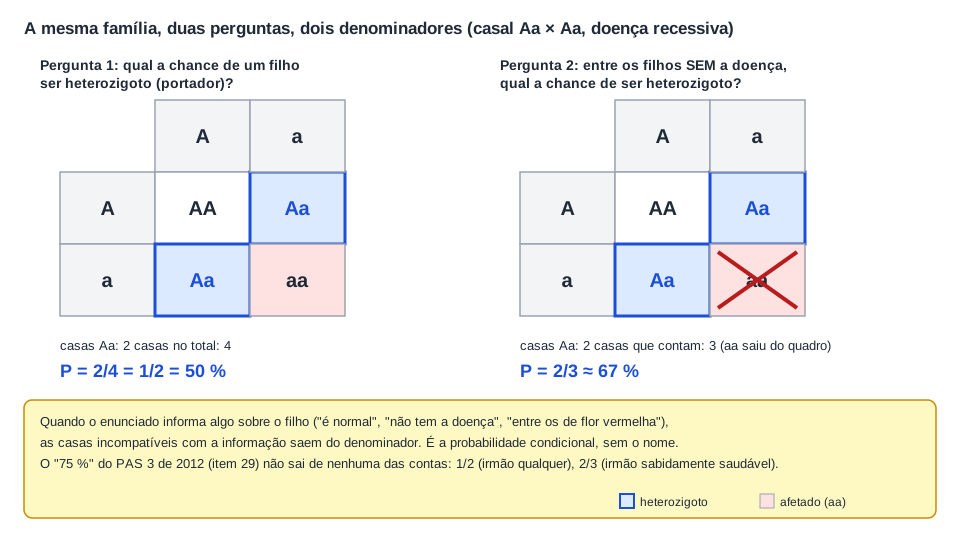
A quarta ideia é a que o enunciado esconde: o denominador muda quando o enunciado dá uma informação. Num casal Aa × Aa, a chance de um filho ser heterozigoto é 42=21: duas casas em quatro. Mas, se o enunciado diz “entre os filhos sem a doença” ou “sabendo que o filho é normal”, a casa aa sai do quadro. Sobram três casas, AA, Aa e Aa, e duas delas são de heterozigotos: 32. É a chamada probabilidade condicional, e a prova a cobra sem usar o nome. No PAS 3 de 2012 (item 29), sobre a fibrose cística, o item afirmou que o irmão de uma pessoa afetada tem “75 % de chance” de ser heterozigoto, e o gabarito foi errado: a conta dá 21 para um irmão qualquer e 32 para um irmão sabidamente saudável; 75 % não sai de nenhuma das duas.
A mesma família, duas perguntas, dois denominadores. Quando o enunciado informa que a pessoa não é afetada, a casa aa deixa de contar, e a fração de heterozigotos passa de 2 em 4 para 2 em 3. Diagrama autoral.
“Pelo menos um” se calcula pelo complementar. A chance de um casal Aa × Aa ter pelo menos um filho afetado em três gestações é 1 menos a chance de nenhum ser afetado: 1−(43)3=1−6427=6437, cerca de 58 %. Tentar somar as possibilidades uma a uma dá o mesmo resultado com dez vezes mais trabalho.
Filhos específicos entre vários. Para “dois filhos, ambos afetados”, multiplique: 41×41=161. Para “o primeiro afetado e o segundo normal”, 41×43=163. Para “exatamente um afetado em dois filhos”, sem dizer qual, há duas ordens possíveis (afetado-normal e normal-afetado), cada uma com 163: total 166=83. Em três filhos, “exatamente um afetado” tem três ordens: 3×41×43×43=6427. A conta das ordens é a do binômio; para dois ou três filhos, basta listar.
Exemplo resolvido: duas gestações. Um casal em que ambos têm o traço falciforme (AS) planeja dois filhos. Qual a probabilidade de os dois nascerem com anemia falciforme? E de pelo menos um nascer com a doença? Cada gestação tem 41 de SS. Os dois: 41×41=161=6,25%. Pelo menos um: 1−(43)2=1−169=167=43,75%. Conferência: “pelo menos um” tem de ser maior que “exatamente os dois”, e 167>161; e as três situações possíveis (nenhum, um, dois) somam 169+166+161=1.
Segunda lei: dois genes, dois sorteios independentes
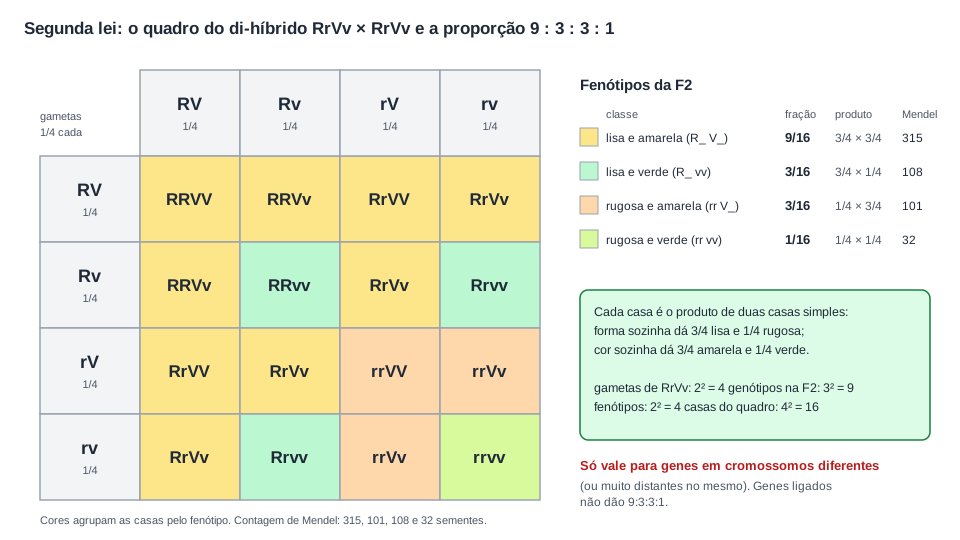
Mendel também cruzou plantas que diferiam em dois caracteres ao mesmo tempo. Uma linhagem pura de sementes lisas e amarelas (RRVV) com uma de sementes rugosas e verdes (rrvv) deu uma F1 toda lisa e amarela (RrVv). A autofecundação da F1 produziu 315 sementes lisas e amarelas, 101 rugosas e amarelas, 108 lisas e verdes e 32 rugosas e verdes. Dividindo tudo por 32, aparece a proporção 9:3:3:1.
O que a proporção mostra é que o sorteio da forma não interfere no sorteio da cor. Para a forma sozinha, 315 + 108 = 423 lisas contra 101 + 32 = 133 rugosas, perto de 3:1. Para a cor sozinha, 315 + 101 = 416 amarelas contra 108 + 32 = 140 verdes, de novo 3:1. E a classe combinada é o produto das classes simples: a fração de lisas e amarelas é 43×43=169; de lisas e verdes, 43×41=163; de rugosas e verdes, 41×41=161. Essa é a segunda lei de Mendel, ou lei da segregação independente: os alelos de genes diferentes se distribuem nos gametas de modo independente uns dos outros. Um indivíduo RrVv produz quatro tipos de gameta em partes iguais: RV, Rv, rV e rv, 41 cada. A base física é a orientação ao acaso de cada par de homólogos na metáfase I, descrita em mitose e meiose: o par que carrega R/r não “sabe” para que lado foi o par que carrega V/v.
O quadro do di-híbrido tem 16 casas, mas cada casa é o produto de duas casas de quadros simples. As cores agrupam as casas por fenótipo: 9 lisas e amarelas, 3 lisas e verdes, 3 rugosas e amarelas, 1 rugosa e verde. Diagrama autoral.
Para um indivíduo heterozigoto em n genes independentes: gametas diferentes=2n (RrVv: 4; RrVvAa: 8; um humano hipotético heterozigoto para 10 genes: 1 024). No cruzamento entre dois desses heterozigotos: genótipos diferentes na prole=3n (um gene: 3; dois: 9; três: 27), porque cada gene admite três genótipos (homozigoto dominante, heterozigoto, homozigoto recessivo); fenótipos diferentes, com dominância completa em todos os genes, =2n (um gene: 2; dois: 4; três: 8); e o quadro de Punnett tem 4n casas (4, 16, 64). Se um dos genes for homozigoto, ele não conta no expoente: AaBBCc produz 22=4 gametas, não 8.
Com três ou mais genes, ninguém monta o quadro de 64 casas. Usa-se a segunda lei ao contrário: cada gene é resolvido sozinho, e as frações se multiplicam. Para AaBbCc × AaBbCc, a fração de descendentes com fenótipo dominante em A, recessivo em B e dominante em C é 43×41×43=649. A fração de genótipo AabbCC é 21×41×41=321. O cruzamento-teste di-híbrido, RrVv × rrvv, dá quatro classes iguais, 1:1:1:1, porque o homozigoto só tem um tipo de gameta e cada gameta do heterozigoto aparece uma vez.
A segregação independente supõe genes em cromossomos diferentes (ou tão distantes no mesmo cromossomo que se comportam como se fossem). Dois genes próximos no mesmo cromossomo tendem a ir juntos para o mesmo gameta: estão em ligação gênica (linkage). Um indivíduo AaBb com A e B no mesmo homólogo e a e b no outro produz muitos gametas AB e ab e poucos Ab e aB; esses poucos nascem do crossing-over da prófase I, que troca trechos entre homólogos, e são tanto mais frequentes quanto mais distantes os genes. Foi isso que Morgan e sua equipe encontraram na Drosophila, e foi assim que construíram os primeiros mapas de genes. O ENEM de 2019 perguntou por que a lei da distribuição independente “nem sempre é verdade”: porque genes fisicamente próximos no mesmo cromossomo tendem a ser herdados juntos. Na prova, a existência de dois genes não autoriza, sozinha, quatro gametas em partes iguais: procure no enunciado a frase “em cromossomos diferentes” ou “segregação independente”.
Quando o heterozigoto não copia o dominante: dominância incompleta, codominância e alelos múltiplos
Mendel trabalhou com pares de alelos em que um esconde o outro por completo. Muitos genes não são assim, e as proporções mudam de modo previsível.
Dominância incompleta. O heterozigoto tem fenótipo intermediário. Na boca-de-leão e em várias outras plantas, flor vermelha (VV) cruzada com flor branca (BB) dá F1 toda rosa (VB); a F2 fica 1 vermelha : 2 rosas : 1 branca. A proporção genotípica 1:2:1 vira também a proporção fenotípica, porque cada genótipo tem a sua cara. A notação costuma usar letras diferentes ou índices (VV, VB), já que não há dominante.
Codominância. O heterozigoto expressa os dois alelos ao mesmo tempo, sem mistura. O exemplo clássico é o sistema sanguíneo MN: pessoas LᴹLᴹ têm o antígeno M nas hemácias, LᴺLᴺ têm o N, e LᴹLᴺ têm os dois. Também aqui a F2 de dois heterozigotos é 1:2:1 nos fenótipos. A diferença entre dominância incompleta e codominância está no que o heterozigoto mostra: algo intermediário (rosa) ou as duas coisas inteiras (M e N). Em ambos os casos, o heterozigoto se reconhece pelo fenótipo, e o cruzamento-teste perde a razão de ser.
Alelos múltiplos (polialelia). Um gene pode ter mais de dois alelos na população, embora cada indivíduo continue tendo só dois. Na pelagem de coelhos, quatro alelos do mesmo gene formam uma série de dominância: C (aguti, selvagem) > cch (chinchila) > ch (himalaia) > c (albino). Cada alelo domina os que vêm depois dele na série. Com quatro alelos há 24×5=10 genótipos possíveis (quatro homozigotos e seis heterozigotos) e quatro fenótipos. A fórmula geral para n alelos é 2n(n+1) genótipos.
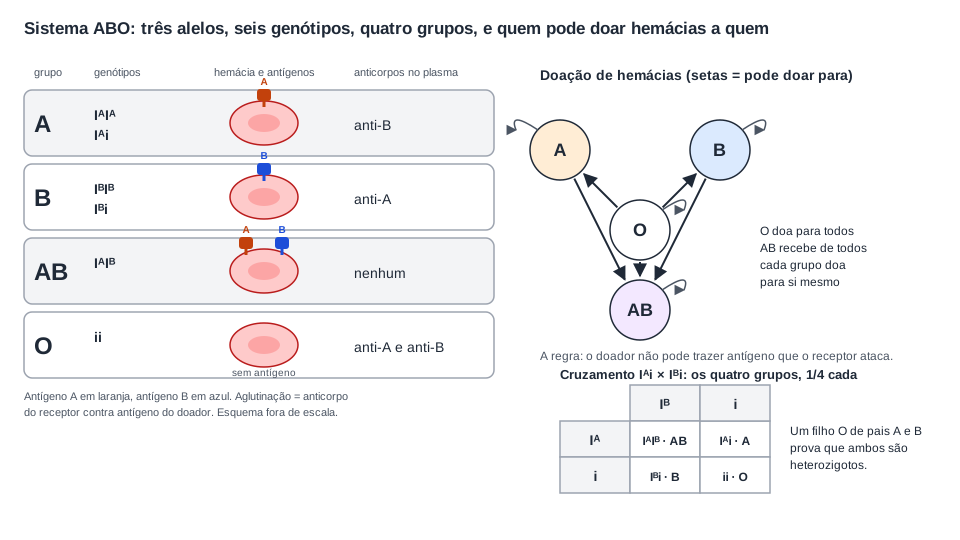
O sistema ABO: três alelos, seis genótipos, quatro fenótipos
Karl Landsteiner descreveu os grupos sanguíneos humanos em 1901 e recebeu por isso o Nobel de 1930. O gene tem três alelos: IA, IB e i. IA e IB são codominantes entre si e ambos dominam i.
genótipo
fenótipo (grupo)
antígeno na hemácia (aglutinógeno)
anticorpo no plasma (aglutinina)
IAIA ou IAi
A
A
anti-B
IBIB ou IBi
B
B
anti-A
IAIB
AB
A e B
nenhum
ii
O
nenhum
anti-A e anti-B
A aglutinação acontece quando o anticorpo do receptor encontra o antígeno correspondente na hemácia do doador: as hemácias se aglomeram e são destruídas. Daí a regra das transfusões de hemácias: o doador não pode trazer um antígeno que o receptor ataca. O grupo O, sem antígenos, pode doar hemácias para todos; o AB, sem anticorpos, pode receber de todos. Um A recebe de A e de O; um B, de B e de O. Na prática, o primeiro escolhido é sempre o mesmo grupo do receptor; o “doador universal” é a saída de emergência.
Para resolver cruzamentos com ABO, escreva os genótipos possíveis e lembre que o grupo O exige dois alelos i. Um casal A × B pode ter filhos dos quatro grupos, se ambos forem heterozigotos: IAi × IBi dá IAIB (AB), IAi (A), IBi (B) e ii (O), 41 cada. Um casal AB × O só tem filhos A ou B, nunca AB nem O, porque o genitor AB não tem i e o genitor O não tem IA nem IB. Um filho O de pai A e mãe B prova que os dois são heterozigotos. Foi essa a lógica do ENEM de 2016 (segunda aplicação): um jovem O negativo, filho de mãe B positivo e pai A positivo, só é filho biológico dos dois se ambos forem heterozigotos para o ABO e para o Rh. Há um caso raro, o fenótipo Bombaim, em que a pessoa tem alelo IA ou IB mas não consegue montar o antígeno por falta de uma enzima de outro gene, e por isso tipa como O; é uma interação entre genes, e serve de lembrete de que até o grupo sanguíneo depende de mais de um gene.
O fator Rh, a gestação e a imunoglobulina anti-D
Landsteiner, já nos Estados Unidos, descreveu com Alexander Wiener, em 1940, um segundo sistema de antígenos das hemácias, encontrado com anticorpos produzidos em coelhos contra hemácias do macaco rhesus; daí o nome Rh. A ligação desse antígeno com a destruição das hemácias de recém-nascidos foi feita na mesma época pelo grupo de Philip Levine, que estudava mães cujos bebês nasciam com anemia grave. Na escola ele se trata como um gene de dois alelos: D (presença do antígeno D, Rh positivo), dominante, e d (ausência, Rh negativo). DD e Dd são Rh+; dd é Rh−. Diferente do ABO, ninguém nasce com anticorpo anti-D: uma pessoa Rh− só o produz se receber hemácias Rh+, por transfusão ou por gestação.
É na gestação que o Rh importa. Se uma mulher Rh− (dd) espera um filho Rh+ (Dd, com o D vindo do pai), hemácias do feto podem passar para a circulação da mãe, sobretudo no parto. A mãe então produz anticorpos anti-D e guarda a memória. O primeiro filho em geral nasce bem; numa gestação seguinte de outro feto Rh+, os anticorpos da mãe atravessam a placenta e destroem as hemácias dele. É a doença hemolítica do recém-nascido, chamada nos livros de eritroblastose fetal, que causa anemia e icterícia graves. A prevenção é dar à gestante Rh− a imunoglobulina anti-D durante a gestação e logo depois do parto de um bebê Rh+: os anticorpos prontos eliminam as hemácias fetais que entraram antes que o sistema imune da mãe as reconheça e crie memória. É imunização passiva, o mesmo princípio dos soros descrito em vacinas e soros. O ENEM de 2017 (aplicação PPL) perguntou qual a função da solução de anticorpos anti-Rh aplicada numa mãe O− logo depois do parto de um bebê O+, e a resposta foi: destruir as células sanguíneas do bebê que passaram para a mãe. Se o pai for Rh− (dd), nenhum filho será Rh+ e não há risco; e uma mãe Rh+ nunca tem o problema, porque não produz anti-D.
Três alelos, seis genótipos, quatro grupos. O que decide a transfusão é o encontro entre o anticorpo do receptor e o antígeno do doador: O não tem antígeno e doa hemácias para todos; AB não tem anticorpo e recebe de todos. Embaixo, o cruzamento A × B entre heterozigotos, que produz os quatro grupos. Diagrama autoral.
Genes letais, pleiotropia, interação gênica e herança de muitos genes
Genes letais. Alguns alelos matam o indivíduo que os carrega em homozigose, em geral antes do nascimento, e a proporção observada entre os nascidos fica diferente da esperada. O caso clássico é o da pelagem amarela em camundongos: o alelo amarelo (AY) é dominante para a cor e letal em homozigose. Cruzando dois camundongos amarelos (ambos AYA), espera-se 1 AYAY : 2 AYA : 1 AA, mas os AYAY morrem no útero, e nascem 2 amarelos : 1 aguti, isto é, 2:1 em vez de 3:1. Em humanos, a acondroplasia, a forma mais comum de nanismo de membros curtos, é dominante: quem herda um alelo alterado do gene FGFR3 tem a condição, e quem herda os dois alelos alterados, filho de dois pais com acondroplasia, em geral não sobrevive ao período neonatal. Uma proporção 2:1 numa F2 é o sinal de um letal recessivo escondido num alelo dominante.
Pleiotropia. Um só gene afeta várias características. O alelo S da hemoglobina muda uma proteína, e dessa única mudança decorrem hemácias em foice, anemia, dores, lesões em vários órgãos e maior resistência à malária grave. Um gene, muitos efeitos. O detalhe molecular está em DNA, RNA e síntese proteica e a origem do alelo em mutações. O inverso também existe e tem outro nome.
Interação gênica e epistasia. Dois ou mais genes participam da mesma característica, e um deles pode mascarar o efeito do outro (epistasia). Na pelagem do labrador, um gene decide a cor do pigmento, preto (B) ou chocolate (b), e outro decide se o pigmento é depositado no pelo (E) ou não (e). Cães ee são amarelos, qualquer que seja o genótipo em B. Cruzando dois BbEe, o quadro 9:3:3:1 vira 9 pretos : 3 chocolates : 4 amarelos, porque as classes bbee e B_ee se juntam no mesmo fenótipo. Reconhecer uma epistasia na prova é somar classes do 9:3:3:1: 9:3:4, 9:7, 12:3:1 e 13:3 são todas somas de 9, 3, 3 e 1.
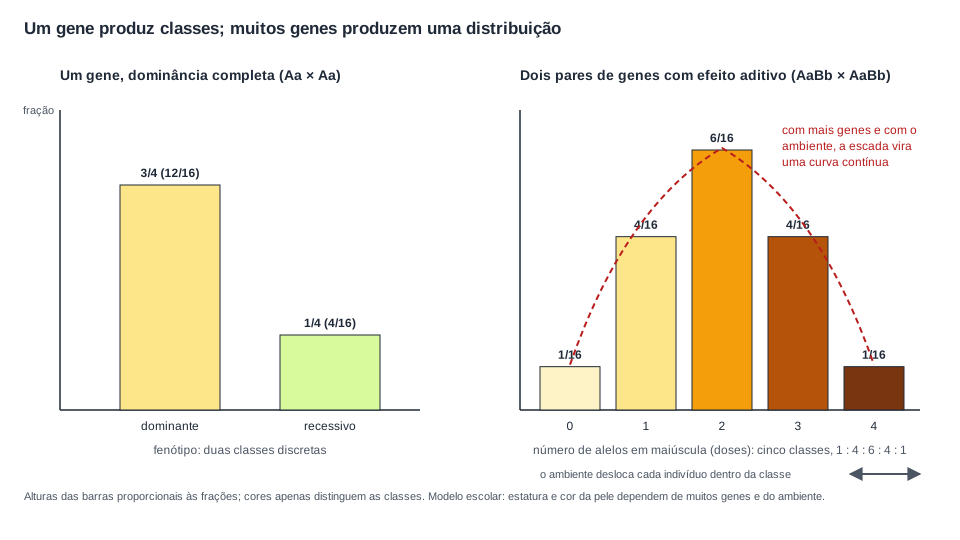
Herança quantitativa (poligênica). Muitos genes, cada um com efeito pequeno e somado aos outros, produzem uma característica que varia de modo contínuo: estatura, cor da pele, peso, produção de leite numa raça bovina. Não há classes “ou isto ou aquilo”; há uma distribuição com muitos valores intermediários e poucos extremos, e o ambiente ainda desloca cada indivíduo dentro dela. O ENEM de 2012 (aplicação PPL) descreveu uma planta em que duas linhagens puras de 0,6 m e 1,0 m deram F1 toda de 0,8 m e uma F2 espalhada em cinco alturas, 62 : 255 : 375 : 245 : 63, e perguntou a conclusão: a altura é definida por mais de um gene.
Um gene produz classes; muitos genes produzem uma distribuição. No modelo escolar de dois pares com efeito aditivo, o cruzamento de dois duplos heterozigotos dá cinco classes na proporção 1:4:6:4:1, e o ambiente borra as fronteiras entre elas. Com mais genes, a curva fica mais contínua. Diagrama autoral.
O modelo escolar da cor da pele usa dois pares de genes com efeito aditivo (A/a e B/b): cada alelo em maiúscula acrescenta uma dose de pigmento, e o número de doses vai de 0 (aabb) a 4 (AABB), com cinco classes de fenótipo. É uma simplificação didática, útil para a conta e falsa como descrição da realidade: a cor da pele humana depende de muitos genes, e a variação é contínua. Dito isso, a conta funciona como qualquer di-híbrido. Um casal AaBb × AaBb pode ter filhos de qualquer das cinco classes, na proporção 1:4:6:4:1. Uma pessoa aabb, sem nenhum alelo de dose, nunca terá um filho com quatro doses, porque não tem dose para dar: o máximo que o filho alcança é o que o outro genitor consegue entregar, mais zero. O PAS 3 de 2016 usou esse modelo em dois itens: o 104 afirmou que o cruzamento de uma mulher sem dose com um homem de três doses “produzirá uma prole na qual 100 % dos indivíduos” terão quatro doses, errado; o 105 deduziu o genótipo de um homem a partir de pais e filhos: filho de um genitor AABB e de uma genitora com uma dose, ele tinha três doses (AaBB, AABb ou AaBb); como teve filhos aabb com uma mulher aabb, precisou dar a e b, o que só AaBb consegue, certo. A linguagem com que a prova de 2016 nomeou as classes é a do modelo histórico; aqui as classes são contadas por doses.
A estatura foi o bloco inteiro do PAS 3 de 2019. Quatro itens, uma ideia: estatura é poligênica e ambiental. “A estatura do indivíduo é determinada por apenas um gene, localizado no cromossomo X herdado do pai” (item 16): errado, nem um gene só, nem no X paterno. “Fatores ambientais, como a alimentação, contribuem para o fenótipo estatura” (17): certo. “Vários genes atuam na determinação do fenótipo” (18): certo. “Do ponto de vista gênico, a estatura dos pais não influencia a estatura final dos filhos” (19): errado, porque a parte genética da estatura vem dos pais. E a generalização de que toda característica tem um gene com dois alelos, um dominante e um recessivo, foi item errado no PAS 3 de 2011 (item 51): há características de muitos genes, genes com três alelos e pares sem dominância.
Penetrância e expressividade. Nem todo portador de um alelo dominante manifesta a característica (penetrância incompleta), e, entre os que manifestam, o grau varia (expressividade variável). Os dois fenômenos nascem da interação com outros genes e com o ambiente, e são a razão de um heredograma de doença dominante às vezes “pular” uma geração. Gêmeos monozigóticos têm o mesmo genótipo e não têm o mesmo fenótipo em tudo: marcas químicas no DNA que ligam e desligam genes se acumulam de modo diferente ao longo da vida, assunto da epigenética em DNA, RNA e síntese proteica.
Herança e sexo: por que o daltonismo pula a filha e chega ao neto
Em humanos e nos outros mamíferos, a mulher tem dois cromossomos X (46,XX) e o homem tem um X e um Y (46,XY). Na meiose, a mulher produz só óvulos com X: é o sexo homogamético, que faz um só tipo de gameta. O homem produz espermatozoides com X e espermatozoides com Y, metade de cada: é o sexo heterogamético. O sexo do filho é decidido pelo espermatozoide. Um filho recebe o X da mãe e o Y do pai; uma filha recebe um X de cada. É o Y que dirige a gônada embrionária a virar testículo: com Y, sexo gonadal masculino; sem Y, feminino. Por isso uma pessoa 47,XXY (síndrome de Klinefelter) tem sexo genital masculino e uma pessoa 45,X (síndrome de Turner) tem sexo genital feminino, como o PAS 3 de 2010 (item 65) pediu para concluir, gabarito certo. Os cariótipos e a origem dessas aneuploidias estão em núcleo e ciclo celular e em mitose e meiose.
Em aves, borboletas e alguns outros grupos o sistema é ZW, e os papéis se invertem: a fêmea é ZW (heterogamética) e o macho é ZZ (homogamético). A prova gosta de trocar as palavras. No PAS 3 de 2018 (item 92), “os machos dos organismos ZZ/ZW são homogaméticos, isto é, produzem gametas de dois tipos” foi errado: o macho ZZ é de fato homogamético, mas homogamético é quem produz um tipo de gameta; a definição estava trocada. No PAS 3 de 2010 (item 66), a inversão foi completa, com o masculino chamado de homogamético em humanos e a galinha de produtora de um só tipo de gameta: errado duas vezes.
Herança ligada ao X: um alelo basta no homem
Um gene do cromossomo X tem dois alelos na mulher e um só no homem, porque o Y não carrega o par. Para um alelo recessivo Xd:
genótipo
fenótipo
XDXD
mulher normal
XDXd
mulher normal, portadora
XdXd
mulher afetada
XDY
homem normal
XdY
homem afetado
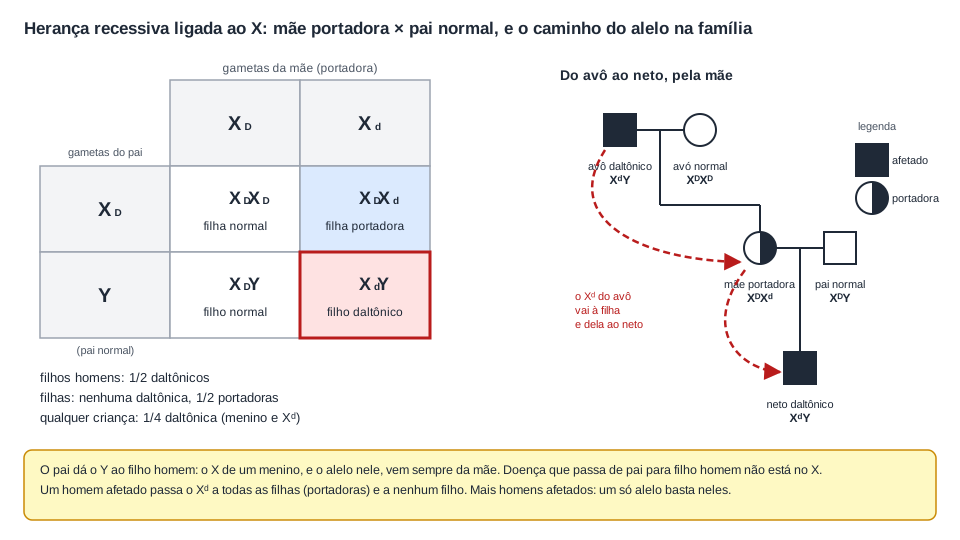
Quatro consequências decidem itens. (1) A herança recessiva ligada ao X afeta muito mais homens que mulheres: o homem manifesta com um alelo; a mulher precisa de dois. (2) O homem afetado recebeu o Xdda mãe, sempre: o pai só lhe deu o Y. (3) Não há transmissão de pai para filho homem pelo X. Se uma doença passa de pai para filho, ela é autossômica (ou está no Y). (4) Um homem afetado passa o Xd a todas as filhas, que serão portadoras (ou afetadas, se a mãe também der um Xd), e a nenhum filho.
Três doenças humanas são os exemplos de sempre, e todas três são recessivas ligadas ao X. O daltonismo para vermelho e verde: em populações de ascendência norte-europeia, cerca de 1 em 12 homens e 1 em 200 mulheres; em quase todas as outras populações estudadas, a frequência é menor. A hemofilia A, falta do fator VIII da coagulação: 1 em 4 000 a 5 000 meninos nascidos no mundo. A distrofia muscular de Duchenne, com a forma mais leve de Becker: juntas, 1 em 3 500 a 5 000 meninos nascidos. A razão de os números serem dados “por meninos” é a consequência (1) acima.
O cruzamento típico de prova é o da mulher portadora com o homem normal: XDXd × XDY. Filhos homens: recebem Y do pai e XD ou Xd da mãe, 21 afetados. Filhas: recebem XD do pai, nenhuma afetada, 21 portadoras. Entre todas as crianças, 41 afetadas (menino e Xd: 21×21). Se o pai for afetado (XdY) e a mãe portadora, aparecem filhas afetadas: 21 das filhas e 21 dos filhos.
A herança ligada ao X em um cruzamento e em uma família. O alelo do avô daltônico desce pelo X até a filha, que não manifesta, e dela ao neto, que manifesta com um só alelo. O pai do neto não participou dessa conta: deu o Y. Diagrama autoral.
A prova cobra essas regras pelo lado errado e pelo lado certo. No PAS 3 de 2018 (item 93), “uma criança do sexo masculino afetada por essa enfermidade terá herdado de seu pai o alelo para essa doença” foi errado: veio da mãe. No PAS 3 de 2020 (item 76), uma doença transmitida “do pai para o filho” tinha de ser, entre as opções, autossômica dominante, e não ligada ao X. No PAS 3 de 2010 (item 69), um casal em que a mulher é portadora e o homem não teve um filho 47,XXY daltônico; para ser daltônico com dois X, os dois X carregavam Xd, e o pai não tinha nenhum: os dois X vieram da mãe, por não disjunção na meiose dela, e o Y veio do pai.
Herança ligada ao Y (restrita ao sexo, ou holândrica). Genes do cromossomo Y passam de pai para todos os filhos homens e para nenhuma filha. O PAS 3 de 2013 (item 114) descreveu um homem infértil por mutação no Y que teve filhos por reprodução assistida: todos os filhos homens herdam o Y com a mutação e dependerão do mesmo procedimento, gabarito certo. Herança influenciada pelo sexo é outra coisa: o gene é autossômico, mas o fenótipo depende do sexo, como na calvície de padrão masculino, em que o heterozigoto manifesta no homem e não na mulher. Herança limitada ao sexo, por fim, é a de genes autossômicos que só se expressam num dos sexos, como a produção de leite.
Gêmeas idênticas com fenótipos diferentes: a inativação do X
Numa célula de mulher, um dos dois X é desligado, ao acaso, cedo no desenvolvimento, e todas as descendentes daquela célula mantêm o mesmo X desligado. O mecanismo foi proposto por Mary Lyon em 1961 e explica por que a mulher não tem o dobro dos produtos dos genes do X. Uma mulher heterozigota XDXd é, na verdade, um mosaico: em parte das células trabalha o XD, em outra parte o Xd. A gata malhada de três cores (laranja, preto e branco) é quase sempre fêmea exatamente por isso: o gene da cor laranja fica no X, e cada mancha do pelo mostra qual X ficou ativo naquele grupo de células. O PAS 3 de 2009 (item 91) levou a ideia ao limite: duas gêmeas 46,XX, do mesmo embrião, heterozigotas para um gene recessivo do X, podem diferir no fenótipo, porque o sorteio de qual X é desligado em cada tecido é independente nas duas. Gabarito certo.
Heredogramas: a família desenhada como um quadro de Punnett
Um heredograma (ou genealogia) é a árvore da família em símbolos: quadrado para homem, círculo para mulher, símbolo preenchido para quem manifesta a característica, vazio para quem não manifesta, meio preenchido (ou com um ponto) para portador conhecido. Uma linha horizontal liga o casal; uma linha vertical desce para os filhos, postos em ordem de nascimento da esquerda para a direita; as gerações são numeradas com algarismos romanos (I, II, III) e os indivíduos de cada geração com arábicos. Uma linha horizontal dupla entre o casal indica consanguinidade. Uma seta aponta o indivíduo de interesse, o “probando”.
Resolver um heredograma é responder duas perguntas, na ordem: o alelo é dominante ou recessivo? e o gene é autossômico ou está no X? Depois disso, escrevem-se os genótipos de quem dá para escrever e calculam-se as probabilidades pedidas.
As regras de decisão
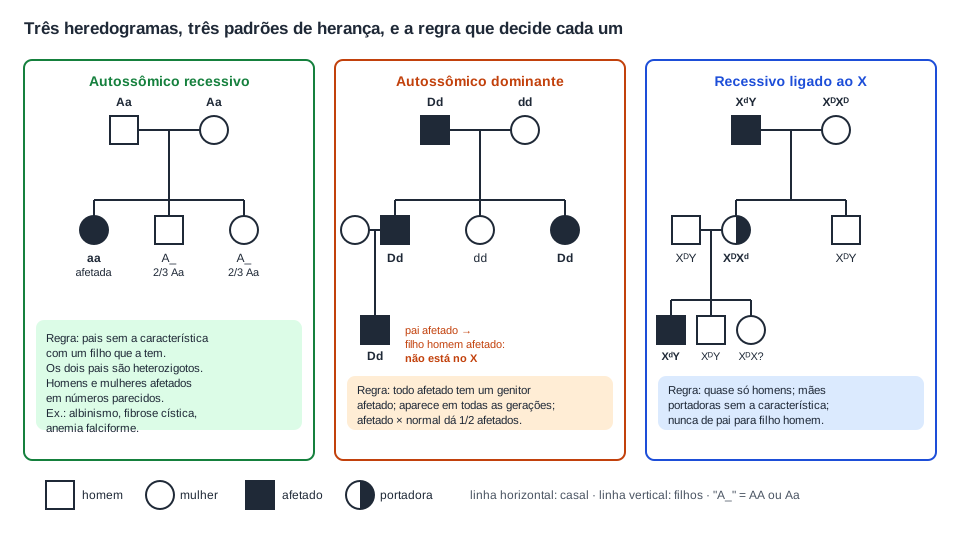
Recessivo. Pais sem a característica com um filho que a tem: a característica é recessiva, e os dois pais são heterozigotos (portadores). É a regra mais forte do heredograma, porque não admite exceção num gene autossômico com penetrância completa.
Dominante. Pais com a característica e um filho sem ela: a característica é dominante, e os dois pais são heterozigotos. Numa característica dominante, todo afetado tem pelo menos um genitor afetado (salvo mutação nova ou penetrância incompleta), e a característica aparece em todas as gerações.
Autossômico × ligado ao X. Se homens e mulheres são afetados em números parecidos, e sobretudo se um pai afetado tem um filho homem afetado, o gene é autossômico. Se os afetados são quase todos homens, com mães sem a característica e avôs maternos afetados, suspeite de recessivo ligado ao X. Um pai afetado com uma filha não afetada exclui dominante ligado ao X (ele daria o XD a todas). Uma mãe afetada com um filho homem não afetado exclui recessivo ligado ao X (ela daria Xd a todos os filhos, que manifestariam).
Quando não dá para decidir. Muitos heredogramas são compatíveis com mais de um padrão. Nesses casos a prova informa o padrão no enunciado (“doença autossômica recessiva”), e a tarefa é só calcular. Não se deduz o que o enunciado já deu, nem se afirma com certeza o que o desenho só sugere.
Três famílias, três padrões. No recessivo autossômico, dois pais normais têm um filho afetado. No dominante autossômico, o afetado sempre tem um genitor afetado, e o pai pode passar ao filho homem. No recessivo ligado ao X, a característica desce pelas mulheres sem aparecer nelas e aparece nos homens. Diagrama autoral.
Probabilidades em cadeia. Quando um alelo precisa atravessar várias gerações, cada passagem é um sorteio independente, e as probabilidades se multiplicam. O PAS 3 de 2021 (item 110) deu a família de uma doença autossômica dominante: João tem a mutação em heterozigose (Dd); Maria, sua esposa, não tem; o filho Pedro casa com Ana, que não tem; e nasce Marcos. Risco de Marcos carregar a mutação: Pedro recebeu de João com 21; se recebeu, passa a Marcos com 21; produto 41, 25 %, e a resposta marcada foi 025. Se o enunciado dissesse que Pedro tem a doença, o primeiro fator viraria 1 e a resposta seria 50 %. Foi exatamente essa a conta do PAS 3 de 2019 (item 110): um indivíduo afetado por osteogênese imperfeita, autossômica dominante com mutação em heterozigose, transmite a mutação a cada filho ou filha com 50 %, marcado 050. E o PAS 3 de 2014 (item 76) juntou o sorteio do sexo: um casal de portadores sem a síndrome de Kostmann (recessiva) tem “uma filha com a síndrome” com 41×21=81=0,125.
A marcação de três dígitos nos itens de resposta numérica
Nos itens do tipo B do PAS, a resposta é um número inteiro de 000 a 999, marcado com três algarismos. A resposta 50 % se marca 050; 25 %, 025; 350 plantas, 350. O comando manda desprezar a parte fracionária: 6,25 vira 6, marcado 006. Quem responde 50 onde a cadeia tem dois elos (e a resposta é 25) esqueceu um fator; quem deixa em branco perde um item em que não há desconto por erro.
Consanguinidade. Casamentos entre parentes (primos, por exemplo) não criam alelos recessivos, mas aumentam a chance de que os dois cônjuges carreguem o mesmo alelo recessivo raro, herdado de um ancestral comum, e portanto a chance de um filho homozigoto. É por isso que doenças recessivas raras aparecem com mais frequência em comunidades pequenas e isoladas, e por isso o heredograma marca a consanguinidade com a linha dupla. O ENEM de 2016 (aplicação PPL) descreveu uma cidade pequena, fundada por uma família, com casamentos consanguíneos frequentes e uma doença rara, e pediu o padrão de herança a partir das pistas do texto. Em genética de populações essa ideia aparece como aumento da homozigose sem mudança na frequência dos alelos.
Aconselhamento genético e o teste do pezinho
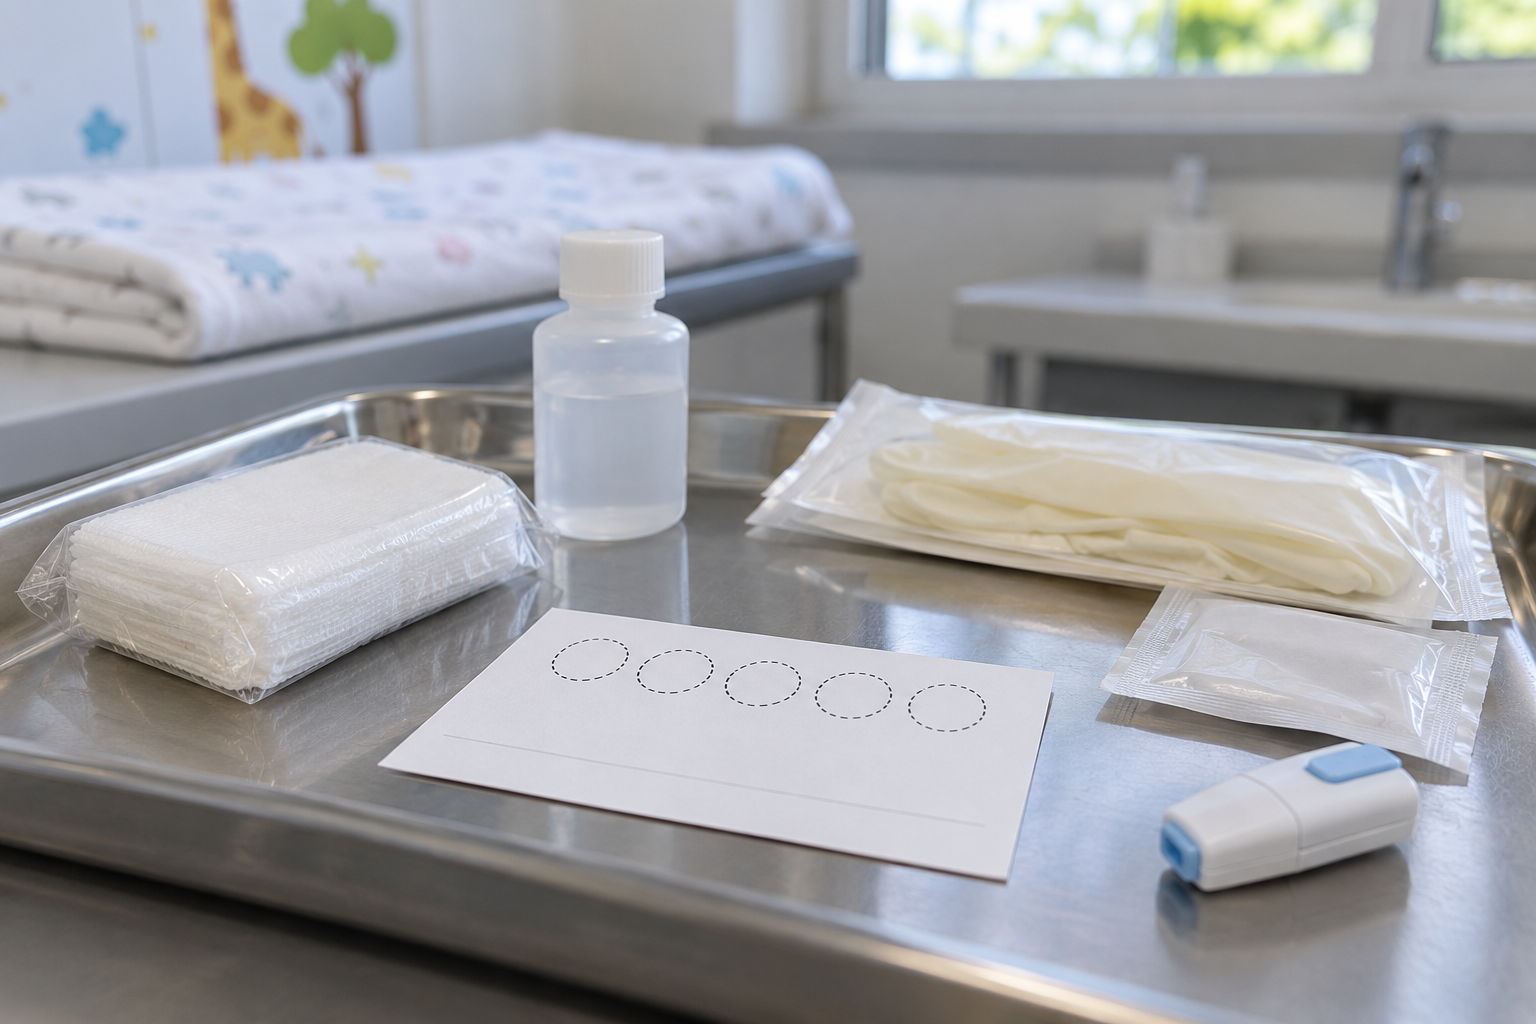
Um casal que descobre, pela eletroforese de hemoglobina, que ambos têm o traço falciforme recebe no aconselhamento genético a mesma conta desta página: a cada gestação, 41 de chance de a criança ter a doença, 21 de ter o traço, 41 de não carregar o alelo. O aconselhamento informa; a decisão é do casal. No Brasil, a triagem neonatal, o teste do pezinho, coleta sangue do calcanhar do recém-nascido, de preferência entre 48 horas e o quinto dia de vida, para identificar cedo doenças que têm tratamento se descoberto a tempo. A Lei 14.154, de 2021, ampliou o rol mínimo do Programa Nacional de Triagem Neonatal em etapas; a primeira inclui fenilcetonúria, hipotireoidismo congênito, doença falciforme e outras hemoglobinopatias, fibrose cística, hiperplasia adrenal congênita, deficiência de biotinidase e toxoplasmose congênita. A fenilcetonúria, a fibrose cística e a doença falciforme são autossômicas recessivas: o primeiro sinal de que o casal é portador costuma ser o resultado do exame do filho. Em genética médica, “portador” quer dizer heterozigoto e nada mais; a pessoa é saudável.
Os erros que os itens plantam
A lista abaixo reúne confusões frequentes em itens de genética clássica, com a correção ao lado e, quando existe, o item real que a ilustra.
“Dominante é mais comum.” Dominância descreve o fenótipo do heterozigoto, não a frequência do alelo na população. Um alelo dominante pode ser raro (polidactilia) e um recessivo pode ser frequente. O PAS 3 de 2010 (item 56) deu como certo que a frequência de um alelo independe de ele ser dominante ou recessivo.
“Recessivo é defeito; o alelo recessivo some no heterozigoto.” Recessivo quer dizer que não se expressa na presença do dominante. O alelo continua lá, intacto, e passa aos filhos. Sementes rugosas e flores brancas são recessivas e não são defeitos.
“Toda F2 é 3:1.” Só a F2 de um gene com dominância completa, a partir de linhagens puras. Dominância incompleta e codominância dão 1:2:1; dois genes dão 9:3:3:1; um letal recessivo dá 2:1; epistasias dão somas do 9:3:3:1.
“O heterozigoto é sempre intermediário.” Só na dominância incompleta. Com dominância completa ele é igual ao homozigoto dominante; na codominância mostra os dois alelos.
“AB é dominante sobre O” ou “O é recessivo, logo raro.” IA e IB são codominantes entre si e dominam i. O grupo O exige ii, e nada disso diz quão frequente ele é.
“A probabilidade muda com os filhos anteriores.” Cada gestação é independente. O item do PAS que vincula o risco do próximo filho ao resultado dos anteriores é errado.
“A irmã de um afetado tem 75 % de chance de ser portadora.” Uma irmã qualquer: 21. Uma irmã sabidamente não afetada: 32. O 75 % do PAS 3 de 2012 (item 29) não existe.
“O homem passa o daltonismo ao filho.” O pai dá Y ao filho. O alelo do X de um menino afetado veio da mãe (PAS 3 2018, item 93). Doença de pai para filho homem é autossômica ou está no Y.
“A mãe determina o sexo.” A mãe só tem X para dar. O sexo é decidido pelo espermatozoide, X ou Y.
“Homogamético é quem faz dois tipos de gameta.” É o contrário: homogamético faz um tipo (mulher XX, galo ZZ); heterogamético faz dois (homem XY, galinha ZW).
“Toda mãe Rh negativo tem problema na gestação.” Só se o feto for Rh+ e, em regra, a partir da segunda gestação Rh+, sem a imunoglobulina anti-D. Pai Rh− elimina o risco.
“Dois genes sempre dão 9:3:3:1.” Só se forem independentes (cromossomos diferentes). Genes ligados no mesmo cromossomo tendem a ir juntos, e o crossing-over produz as combinações novas em menor número.
“Um gene, uma característica.” Há pleiotropia (um gene, vários efeitos), interação gênica (vários genes, uma característica), herança poligênica (muitos genes, variação contínua) e ambiente. Foi a tese do PAS 3 de 2011 (item 51), julgada errada.
“Fenótipo é só o que se vê.” Fenótipo inclui fisiologia e comportamento (PAS 3 2020, item 73).
“O ambiente explica tudo.” Fenótipo = genótipo + ambiente, mas, se o texto fixou a causa genética de uma característica, atribuí-la ao ambiente contradiz o texto (PAS 3 2018, item 95).
O essencial em meia página
Vocabulário. Gene, alelo (versão do gene), locus; homozigoto (AA, aa) e heterozigoto (Aa); dominante (expressa-se no heterozigoto) e recessivo (só em homozigose); genótipo (par de alelos) e fenótipo (característica observável, incluindo fisiologia e comportamento). Fenótipo = genótipo + ambiente. Portador = heterozigoto para um recessivo, saudável.
Primeira lei (segregação). Cada gameta recebe um só alelo de cada gene; base física: separação dos homólogos na meiose I. Aa × Aa: 1:2:1 (genótipos), 3:1 (fenótipos com dominância completa). Aa × aa: 1:1. AA × aa: todos Aa.
Probabilidade. “E” multiplica (eventos independentes); “ou” soma (eventos excludentes). Gestações são independentes. “Pelo menos um” = 1 − P(nenhum). “Sabendo que é normal”: o denominador muda, 2/4 vira 2/3. Fração × total = número esperado (1/4 de 1 400 = 350).
Segunda lei (segregação independente). Genes em cromossomos diferentes: AaBb × AaBb dá 9:3:3:1; gametas 2ⁿ, genótipos 3ⁿ, fenótipos 2ⁿ, casas 4ⁿ. Com três ou mais genes, multiplique as frações de cada gene. Falha quando os genes estão ligados no mesmo cromossomo; o crossing-over recombina.
Extensões. Dominância incompleta (rosa; 1:2:1) e codominância (MN; 1:2:1). Alelos múltiplos: n alelos dão n(n+1)/2 genótipos; coelhos C > cch > ch > c. ABO: IA = IB > i; seis genótipos, quatro grupos; O doa hemácias a todos, AB recebe de todos; aglutinação = anticorpo do receptor contra antígeno do doador. Rh: D > d; mãe Rh−, feto Rh+, risco a partir da segunda gestação, prevenido pela imunoglobulina anti-D (imunização passiva). Letais: 2:1 em vez de 3:1. Pleiotropia: um gene, vários efeitos. Epistasia: labrador 9:3:4. Poligênica: estatura e cor da pele, distribuição contínua, forte efeito do ambiente.
Sexo. Mulher XX homogamética; homem XY heterogamético; o espermatozoide decide. Aves: ZW fêmea, ZZ macho. Ligada ao X recessiva (daltonismo, hemofilia A, Duchenne): mais homens; o menino afetado herdou da mãe; o pai não passa X ao filho; o homem afetado passa a todas as filhas. Ligada ao Y: de pai para todos os filhos homens. Inativação do X: a mulher heterozigota é um mosaico.
Heredograma. Pais normais com filho afetado: recessivo. Afetado sempre com genitor afetado: dominante. Pai afetado com filho homem afetado: não está no X. Quase só homens, via mãe portadora: recessivo ligado ao X. Cadeias: multiplique cada elo (avô Dd → pai → neto: 1/2 × 1/2 = 1/4). Consanguinidade aumenta a chance de homozigose para recessivos raros.
Resposta numérica. Três dígitos, zero à esquerda: 050, 025, 350; parte fracionária desprezada.
Exercícios temporariamente indisponíveis
Não foi possível consultar o banco de questões. O conteúdo da aula continua disponível.
Flashcards temporariamente indisponíveis
Não foi possível consultar os cartões de revisão.
1ª Lei de Mendel - Genética - Resumo Professor Gustavo
Me Gusta Bio · 5:50
Introdução. Em menos de seis minutos, o resumo apresenta a primeira lei de Mendel: dois alelos por gene, separação na formação dos gametas e o reencontro na fecundação, com o cruzamento de heterozigotos e a proporção 3:1. É a porta de entrada das seções “Um monge, sete caracteres e uma conta que ninguém tinha feito” e “Primeira lei: cada gameta leva um só alelo de cada gene”. Assista antes de ler e, ao fim, monte sozinho o quadro de Punnett de Rr × Rr; depois confira com a figura da primeira lei desta página.
Segunda Lei de Mendel [Muito fácil!] - Aula 10 - Mód. 2 - Genética | Prof. Guilherme
Prof. Guilherme Goulart - Biologia · 23:08
Aprofundamento. A aula desenvolve a segunda lei (segregação independente) a partir da primeira, com o cruzamento di-híbrido, os quatro tipos de gameta do duplo heterozigoto e a proporção 9:3:3:1. Corresponde à seção “Segunda lei: dois genes, dois sorteios independentes”. Pause quando o professor montar o quadro de 16 casas e refaça a mesma conta pelo método do produto desta página (3/4 × 3/4, 3/4 × 1/4, 1/4 × 1/4); os dois caminhos têm de dar o mesmo resultado.
Herança Sexual - Aula 14 - Módulo II: Genética | Prof. Gui
Prof. Guilherme Goulart - Biologia · 23:26
Aplicação. A aula, com capítulos marcados na descrição (herança ligada ao X a partir de 4 min 19 s, exercícios sobre daltonismo a 8 min 58 s, herança restrita ao Y a 14 min, herança influenciada pelo sexo e calvície a 15 min 44 s), aplica o quadro de Punnett aos cromossomos sexuais. É o conteúdo da seção “Herança e sexo: por que o daltonismo pula a filha e chega ao neto”. Antes de cada exercício do vídeo, escreva os genótipos com X e Y e preveja a resposta usando as quatro regras da página.
HEREDOGRAMAS - Exercícios e Dicas
Prof Paulo Roberto BIO · 35:30
Resolução de questões. O vídeo resolve, um a um, exercícios de heredograma: identificar se a característica é dominante ou recessiva, deduzir genótipos e calcular probabilidades (a descrição do próprio autor corrige a dedução de um genótipo do exercício 2, o que mostra o cuidado que a leitura exige). Corresponde à seção “Heredogramas: a família desenhada como um quadro de Punnett”. Para cada exercício, pause depois do enunciado, aplique as regras de decisão desta página e só então compare com a resolução.
Modelos mendelianos relacionam transmissão de alelos e expressão de caracteres sob condições definidas.O desenho do experimento de Mendel para a forma da semente. O traço rugoso some na F1 e volta na F2, em um quarto das sementes; os números são os que Mendel publicou (5 474 lisas e 1 850 rugosas). As cores só distinguem as classes lisa e rugosa; a cor real da semente é outro caráter. Diagrama autoral.A primeira lei em duas imagens. À esquerda, por que o heterozigoto produz dois tipos de gameta em partes iguais: os alelos estão em homólogos diferentes, e a meiose I os separa. À direita, o quadro de Punnett que combina os gametas de dois heterozigotos. Esquema fora de escala. Diagrama autoral.A mesma família, duas perguntas, dois denominadores. Quando o enunciado informa que a pessoa não é afetada, a casa aa deixa de contar, e a fração de heterozigotos passa de 2 em 4 para 2 em 3. Diagrama autoral.O quadro do di-híbrido tem 16 casas, mas cada casa é o produto de duas casas de quadros simples. As cores agrupam as casas por fenótipo: 9 lisas e amarelas, 3 lisas e verdes, 3 rugosas e amarelas, 1 rugosa e verde. Diagrama autoral.Três alelos, seis genótipos, quatro grupos. O que decide a transfusão é o encontro entre o anticorpo do receptor e o antígeno do doador: O não tem antígeno e doa hemácias para todos; AB não tem anticorpo e recebe de todos. Embaixo, o cruzamento A × B entre heterozigotos, que produz os quatro grupos. Esquema fora de escala. Diagrama autoral.Um gene produz classes; muitos genes produzem uma distribuição. No modelo escolar de dois pares com efeito aditivo, o cruzamento de dois duplos heterozigotos dá cinco classes na proporção 1:4:6:4:1, e o ambiente borra as fronteiras entre elas. Com mais genes, a curva fica contínua. Alturas das barras proporcionais às frações. Diagrama autoral.A herança ligada ao X em um cruzamento e em uma família. O alelo do avô daltônico desce pelo X até a filha, que não manifesta, e dela ao neto, que manifesta com um só alelo. O pai do neto não participou dessa conta: deu o Y. Diagrama autoral.Três famílias, três padrões. No recessivo autossômico, dois pais normais têm um filho afetado. No dominante autossômico, o afetado sempre tem um genitor afetado, e o pai pode passar ao filho homem. No recessivo ligado ao X, a característica desce pelas mulheres sem aparecer nelas e aparece nos homens. Diagrama autoral.Fenótipo é a característica observada; a mesma aparência pode corresponder a genótipos diferentes em dominância completa.Cruzamentos controlados permitem acompanhar a transmissão de características entre gerações.A segregação distribui as duas variantes de um locus entre gametas no modelo usual. O desenho não representa todas as etapas da meiose.As duas ordens de um par misto representam a mesma composição heterozigota. Proporções genotípicas e fenotípicas precisam ser distinguidas.Uma probabilidade prevista não obriga uma amostra pequena a reproduzir exatamente a proporção teórica.A eletroforese separa a hemoglobina A da hemoglobina S: a pessoa com o traço falciforme (AS) mostra as duas bandas. É assim que um casal descobre que ambos são portadores antes da primeira gestação.A aglutinação na lâmina é a mesma reação que torna uma transfusão errada perigosa: o anticorpo do soro encontra o antígeno da hemácia e as células se aglomeram.No aconselhamento genético, o heredograma é desenhado com a família e lido com as regras desta página: quem é portador, quem é afetado e qual o risco em cada gestação.Cada mancha laranja ou preta da gata mostra qual cromossomo X ficou ativo naquele grupo de células: um retrato da inativação do X, que só uma fêmea heterozigota pode exibir.O Sphynx é homozigoto recessivo para o gene KRT71; cruzado com um gato comum sem a mutação, produz filhotes todos com pelo, que carregam o alelo escondido.O teste do pezinho colhe sangue em papel-filtro entre 48 horas e o quinto dia de vida e rastreia doenças de herança recessiva, como a fenilcetonúria e a doença falciforme, cedo o bastante para o tratamento começar.
Rota PAS 3
Genética e biotecnologia: a letra que muda tudo · PAS 3
Fontes desta página
Os materiais abaixo contribuíram para a explicação e os exemplos deste assunto.
Rota PAS 3 — Genética e biotecnologia: a letra que muda tudo · Antes de começar (ideias 2 a 4 e exemplo-guia AS × AS); Genética clássica: alelos, cruzamentos e a conta das probabilidades (itens reais 2020/73, 2019/16–19, 2011/51–53, 2018/95, 2012/29, 2015/76, 2016/104–105, 2023/114 tipo D); Heredogramas, sexo e probabilidades em cadeia (2018/92, 2010/66, 2010/65, 2018/93, 2013/114, 2010/69, 2009/91, 2019/110 tipo B, 2014/76); Resolvidos; Banco de treino (T11 = 2020/76, T14 = 2018/98, T24 = 2021/110 com o texto-base da síndrome de Brugada)
Fonte principal dos itens reais e dos exemplos (gatos Sphynx, traço falciforme, glória-da-manhã, estatura). As seções 'Do gene à proteína', 'Mutações', 'Leia como na prova' (anemia falciforme) e 'Biotecnologia' do mesmo capítulo pertencem a outras páginas.
Rota PAS 3 — Banco de treino de Genética e biotecnologia, resoluções · T11 (2020/76), T12 (variante de 2018/93), T14 (2018/98, gabarito 350), T15, T24 (2021/110, gabarito 025)
Conferência dos gabaritos dos itens reais reproduzidos no banco de treino e da marcação de três dígitos.
Rota PAS 3 — Exercícios do capítulo de Genética, resoluções · Itens 2, 5, 6, 7, 10 (condicional 2/3), 11 (tipo B, 020) e 12
Conferência da probabilidade condicional e da regra do X nos exercícios do capítulo. Fontes externas (não estão no repositório): Mendel, 'Experiments in Plant Hybridization' (1865; tradução inglesa em mendelweb.org), para as datas de leitura, os sete caracteres e as contagens 5 474:1 850, 705:224 e 315:101:108:32; Nature Scitable, 'Gregor Mendel and the Principles of Inheritance', para a referência bibliográfica de 1866; Cold Spring Harb. Perspect. Biol. (2025, PMID 39500621) para a redescoberta em 1900; Nat. Rev. Genet. (2008, PMID 18268510) para a teoria cromossômica de Sutton e Boveri (1902–1904); nobelprize.org (fatos e biografias de Landsteiner, 1930, e Morgan, 1933; Morgan, Science 1910 'Sex limited inheritance in Drosophila'); Lyon, Nature 1961; MedlinePlus Genetics (NIH) para as frequências do daltonismo, da hemofilia A, de Duchenne/Becker e da acondroplasia homozigota, e para a incompatibilidade Rh e a imunoglobulina anti-D; Ministério da Saúde (gov.br, Triagem Neonatal) e Lei 14.154/2021 (planalto.gov.br) para o teste do pezinho.