Você ralou o joelho numa segunda-feira e no domingo a pele está inteira. As células da borda copiaram os 46 cromossomos, dividiram-se e pararam quando as frentes se encontraram. Onde fica esse DNA, como ele cabe num núcleo de 6 micrômetros, quanto dele existe em cada momento do ciclo da célula, e o que acontece quando uma célula deixa de parar?
O que você vai aprender
Descrever o núcleo eucariótico (envoltório de duas membranas, poros, lâmina, nucleoplasma, cromatina e nucléolo), dizer a função de cada parte e contrastá-lo com o nucleoide dos procariontes.
Explicar que cromatina e cromossomo são o mesmo DNA em graus diferentes de compactação, distinguir eucromatina de heterocromatina e situar célula, núcleo, cromossomo, molécula de DNA e gene numa escala parte e todo.
Nomear as partes do cromossomo compactado (cromátides-irmãs, centrômero, telômeros) e contar cromossomos pelos centrômeros e moléculas de DNA pelas cromátides.
Usar a notação n e 2n, distinguir haploide de diploide, homólogos de cromátides e autossomos de cromossomos sexuais, e aplicar a conta n + n = 2n a espécies com números diferentes de cromossomos.
Descrever como se faz um cariótipo (células em metáfase, colchicina, bandas), ler um cariograma, escrever a notação 46,XX / 46,XY e reconhecer alterações numéricas (47,XX,+21; 45,X; 47,XXY) a partir da contagem.
Narrar o ciclo celular (G1, S, G2 e M), dizer o que acontece com o DNA em cada etapa, comparar as durações típicas e explicar por que a interfase não é intervalo.
Calcular o número de cromossomos e de moléculas de DNA de uma célula em G1, em G2 e após a fase M, para 2n = 46 e para espécies hipotéticas, usando as quantidades 1C, 2C e 4C.
Ler um gráfico de quantidade de DNA por célula contra o tempo, identificar as etapas pelo estado do DNA e calcular a duração de uma etapa a partir da fração de células observadas nela.
Caracterizar o estado G0 e dar exemplos de células que saem do ciclo de forma permanente (neurônios, células do músculo cardíaco), reversível (hepatócitos) e do caso-limite da hemácia sem núcleo.
Explicar os três pontos de checagem (G1/S, G2/M e metáfase), o papel da p53 e da apoptose, e a lógica de aceleradores e freios codificados por genes.
Descrever o câncer como perda de controle do ciclo (mutações acumuladas em proto-oncogenes e supressores de tumor), distinguir tumor benigno de maligno e metástase, e relacionar tabaco, radiação UV e HPV ao mecanismo, com os números do INCA e a vacina contra o HPV no SUS.
Explicar por que radioterapia e quimioterapia atingem cabelo, mucosas e medula, e por que o câncer não é contagioso nem necessariamente hereditário.
Classificar células-tronco por potência (totipotentes, pluripotentes, multipotentes) e por origem (embrionárias, adultas, iPS), relacionar a célula-tronco da medula ao transplante e explicar a diferenciação como o mesmo genoma com genes diferentes ligados, a partir do experimento de Gurdon.
Você ralou o joelho numa segunda-feira. No domingo seguinte a pele está inteira de novo, só um pouco mais clara no lugar da casca. Durante aquela semana, as células da borda do machucado copiaram cada uma os seus 46 cromossomos, repartiram as cópias em duas células iguais, e repetiram isso até as duas frentes se encontrarem. Depois pararam. Esse “parou” é o assunto desta página tanto quanto o “copiou”: uma célula que se divide na hora certa fecha uma ferida; uma célula que perdeu o freio tem outro nome, e esse nome é câncer.
Tudo começa dentro de um compartimento de uns 6 micrômetros de diâmetro: o núcleo. Nele ficam as 46 moléculas de DNA de cada célula sua, que esticadas e emendadas dariam cerca de 2 metros. Esta página mostra como esse fio cabe nessa caixa, por que o mesmo DNA ora aparece como uma massa granulosa (cromatina) e ora como bastões (cromossomos), como se lê o retrato dos 46 cromossomos de uma pessoa (o cariótipo), e o que acontece com a quantidade de DNA de uma célula ao longo da vida dela, do nascimento numa divisão até a divisão seguinte. É o ciclo celular: uma interfase longa, em que a célula cresce e copia o DNA, e uma fase M curta, em que reparte as cópias. Depois vêm os freios (os pontos de checagem), o que acontece quando eles falham (câncer), as células que guardam a capacidade de se dividir e se especializar (células-tronco) e a pergunta que fecha o circuito: se todas as suas células têm o mesmo DNA, por que um neurônio e uma célula do fígado são tão diferentes.
As fases da mitose e da meiose, nome a nome, e a contagem de cromossomos durante a divisão ficam na página irmã, mitose e meiose. Aqui a divisão aparece só como a fase M do ciclo. A estrutura da molécula de DNA e a maneira como ela é copiada e lida estão em DNA, RNA e síntese proteica; as mutações, em mutações; o que cada organela faz, em organelas celulares.
O núcleo é um cofre com portas
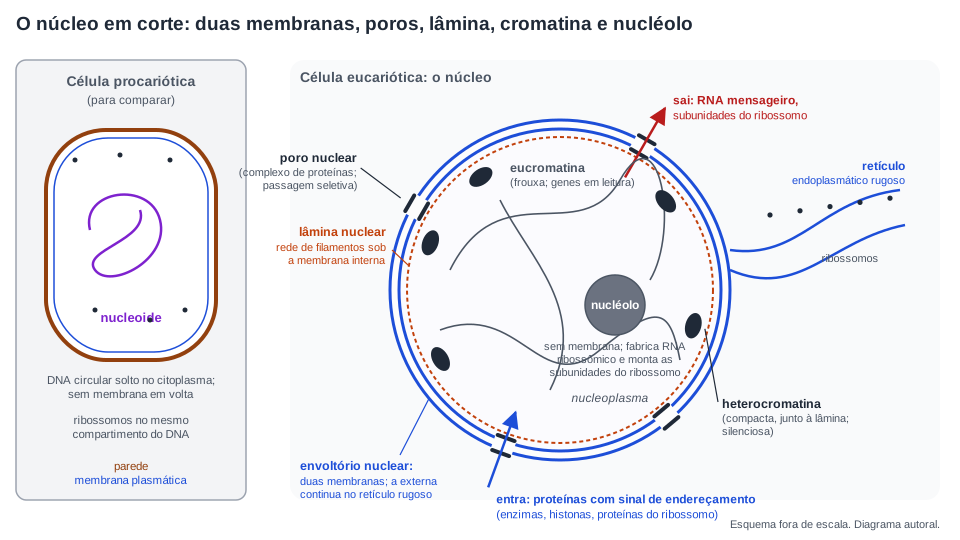
A célula eucariótica se define pelo núcleo: um compartimento fechado por membrana que guarda o DNA. A célula procariótica não tem esse compartimento. Nela o DNA, em geral uma só molécula circular, fica numa região do citoplasma chamada nucleoide, sem membrana em volta, e as enzimas que o leem trabalham no mesmo espaço em que os ribossomos montam proteínas. Essa é a comparação que decide a classificação de uma célula, e está desenvolvida em teoria celular e tipos de células. Daqui em diante, o núcleo é o eucariótico.
O envoltório nuclear (ou carioteca) é feito de duas membranas, uma interna e uma externa, separadas por um espaço estreito. A membrana externa continua na membrana do retículo endoplasmático rugoso e carrega ribossomos pelo lado de fora; o envoltório não é um saco à parte, é uma dobra especializada do retículo. Por dentro da membrana interna há uma rede de filamentos de proteína, a lâmina nuclear, que dá forma ao núcleo e ancora a cromatina. Essa rede se desmonta quando a célula entra em divisão e se refaz em cada célula-filha.
Uma bicamada lipídica barra moléculas grandes. Se o envoltório fosse uma parede fechada, o núcleo não funcionaria: as proteínas que copiam e leem o DNA são fabricadas nos ribossomos, fora do núcleo, e os RNAs que os ribossomos usam são fabricados dentro. A passagem se dá pelos poros nucleares, milhares de aberturas onde as duas membranas se fundem, cada uma guarnecida por um complexo de dezenas de proteínas. Íons e moléculas pequenas atravessam o canal por difusão; proteínas grandes e RNAs só passam com um sinal de endereçamento reconhecido por transportadores. Um RNA mensageiro recém-fabricado sai por um poro; a enzima que vai copiar o DNA entra por outro. É transporte seletivo, como o da membrana plasmática, aplicado a moléculas muito maiores.
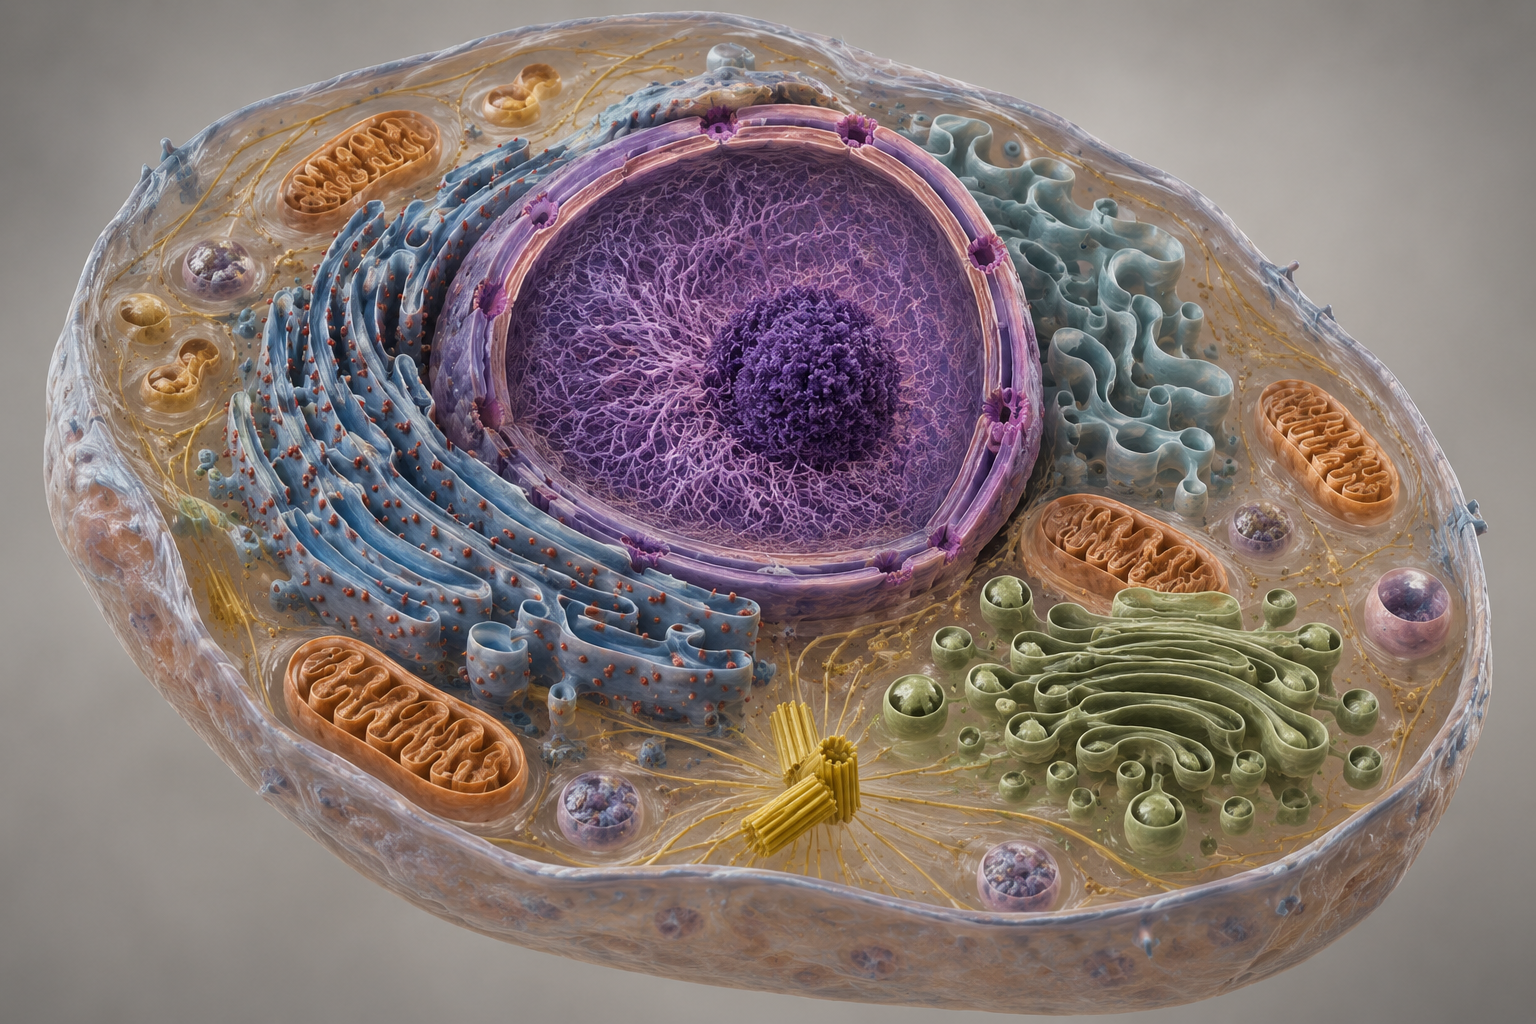
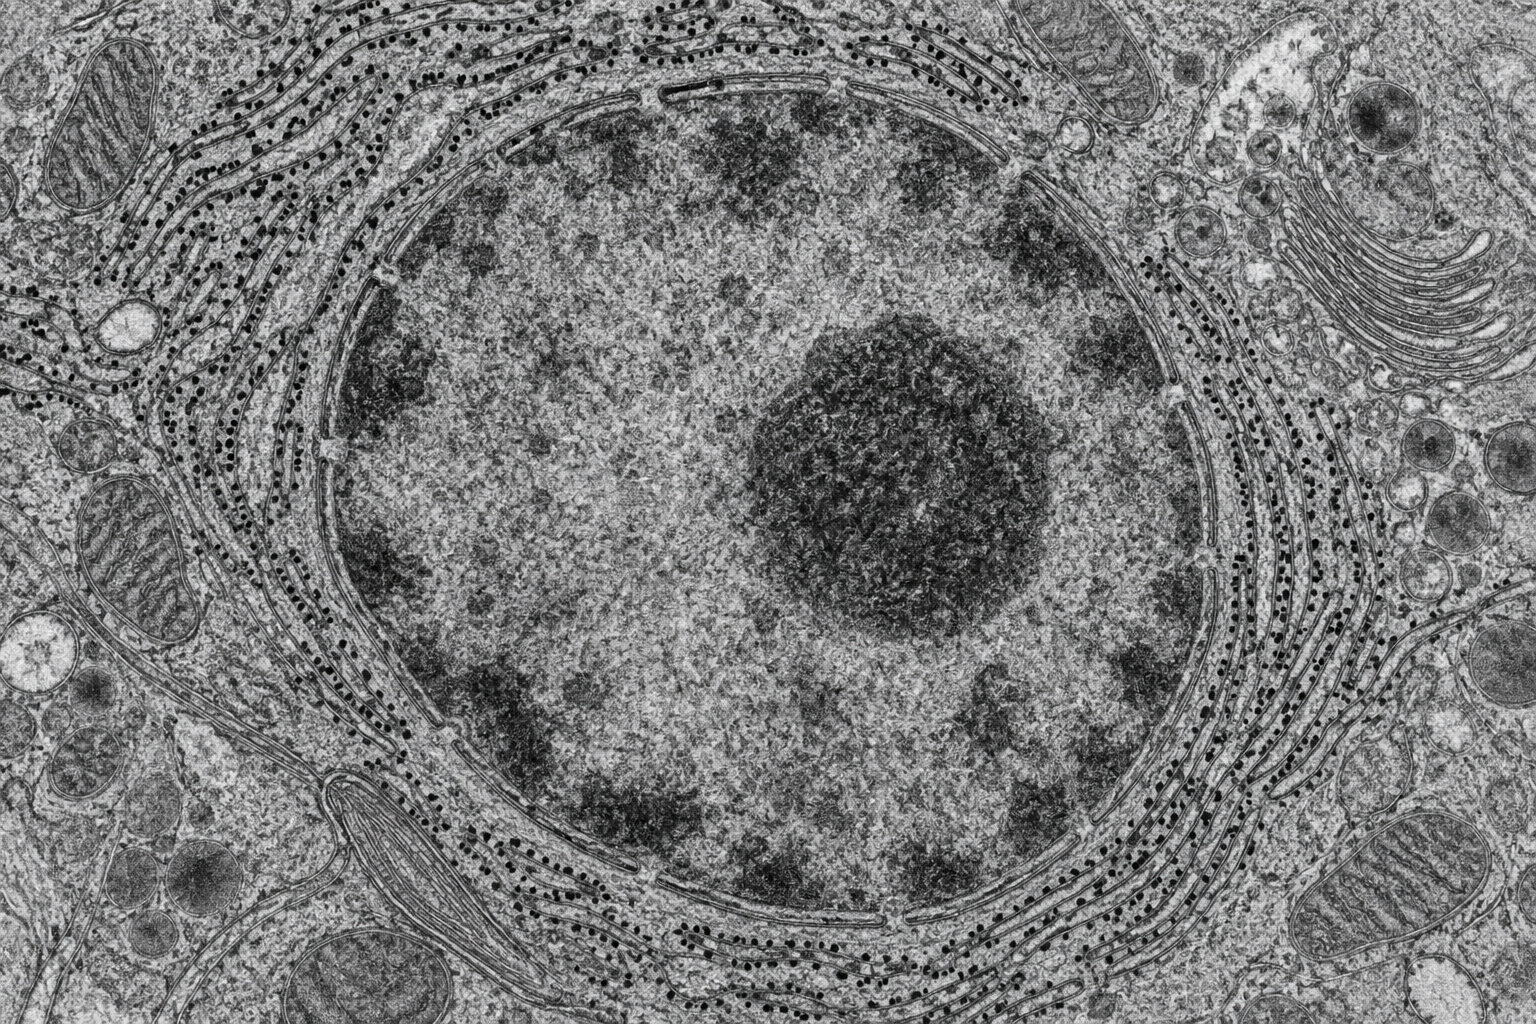
Dentro do envoltório, o conteúdo fluido é o nucleoplasma, e nele se destacam duas coisas: uma massa granulosa que absorve corantes, a cromatina, e uma ou mais manchas mais densas, os nucléolos.
O nucléolo não tem membrana. É a região onde ficam reunidos os trechos de DNA que contêm as centenas de cópias dos genes do RNA ribossômico (em humanos, em cinco pares de cromossomos). Ali esse RNA é transcrito em grande quantidade e montado, com proteínas que entraram pelos poros, nas duas subunidades do ribossomo. As subunidades saem pelos poros e só se juntam no citoplasma, em torno de um RNA mensageiro. O que o ribossomo faz depois disso está em organelas celulares. Fica uma regra de leitura de micrografia: célula que fabrica muita proteína (uma célula do pâncreas, uma célula em crescimento) tem nucléolo grande; célula em divisão não tem nucléolo visível, porque ele se desfaz quando a cromatina se compacta.
O núcleo em corte. Duas membranas, com a externa contínua ao retículo rugoso; poros que deixam sair RNA e entrar proteína; a lâmina por dentro; cromatina em dois graus de compactação e o nucléolo sem membrana. No quadro à esquerda, o contraste com o nucleoide da bactéria, uma região sem envoltório. Esquema fora de escala. Diagrama autoral.
O que cada parte do núcleo faz
Envoltório nuclear: duas membranas; a externa é contínua com o retículo rugoso. Separa a leitura e a cópia do DNA do resto da célula. Poros nucleares: passagem seletiva; saem RNAs e subunidades de ribossomo, entram proteínas com sinal de endereçamento. Lâmina nuclear: rede de filamentos sob a membrana interna; sustenta o núcleo e prende a cromatina. Nucleoplasma: o conteúdo fluido. Cromatina: DNA enrolado em proteínas, a forma em que o DNA é lido. Nucléolo: região sem membrana onde se fabricam o RNA ribossômico e as subunidades do ribossomo.
Cromatina e cromossomo são o mesmo DNA em dois estados
Cromatina recebeu esse nome em 1879 porque absorvia os corantes de anilina que a indústria têxtil alemã acabava de inventar: Walther Flemming corou células de salamandra e viu uma substância colorida (chroma, cor) que, nas células em divisão, se condensava em fios, se alinhava, se partia ao meio e se afastava em dois grupos. A palavra cromossomo (soma, corpo) veio em 1888, com Wilhelm Waldeyer. Repare na ordem histórica: primeiro se viu o comportamento, depois se deu nome ao objeto, e só no século XX se soube que o objeto era uma molécula de DNA. O núcleo, por sua vez, tinha sido descrito em 1831 pelo botânico Robert Brown, em células de orquídea.
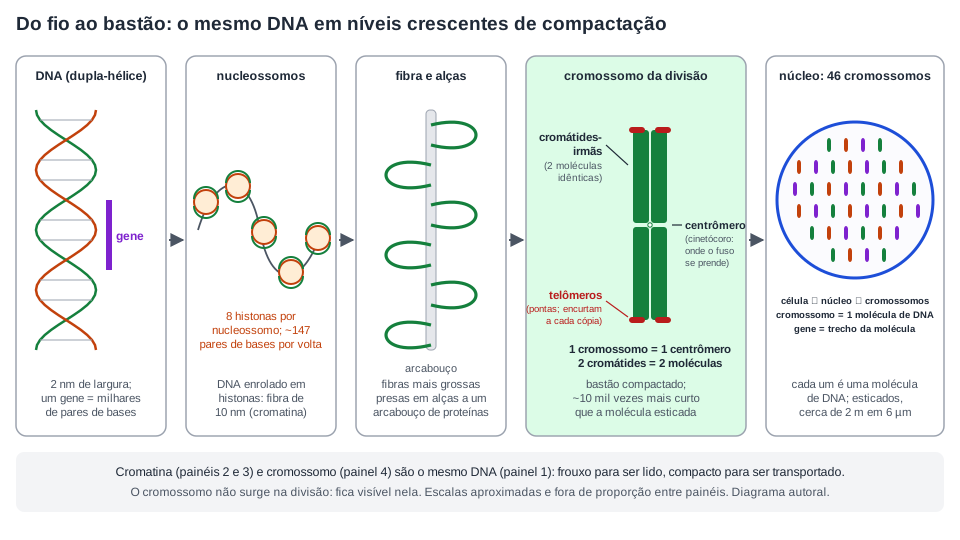
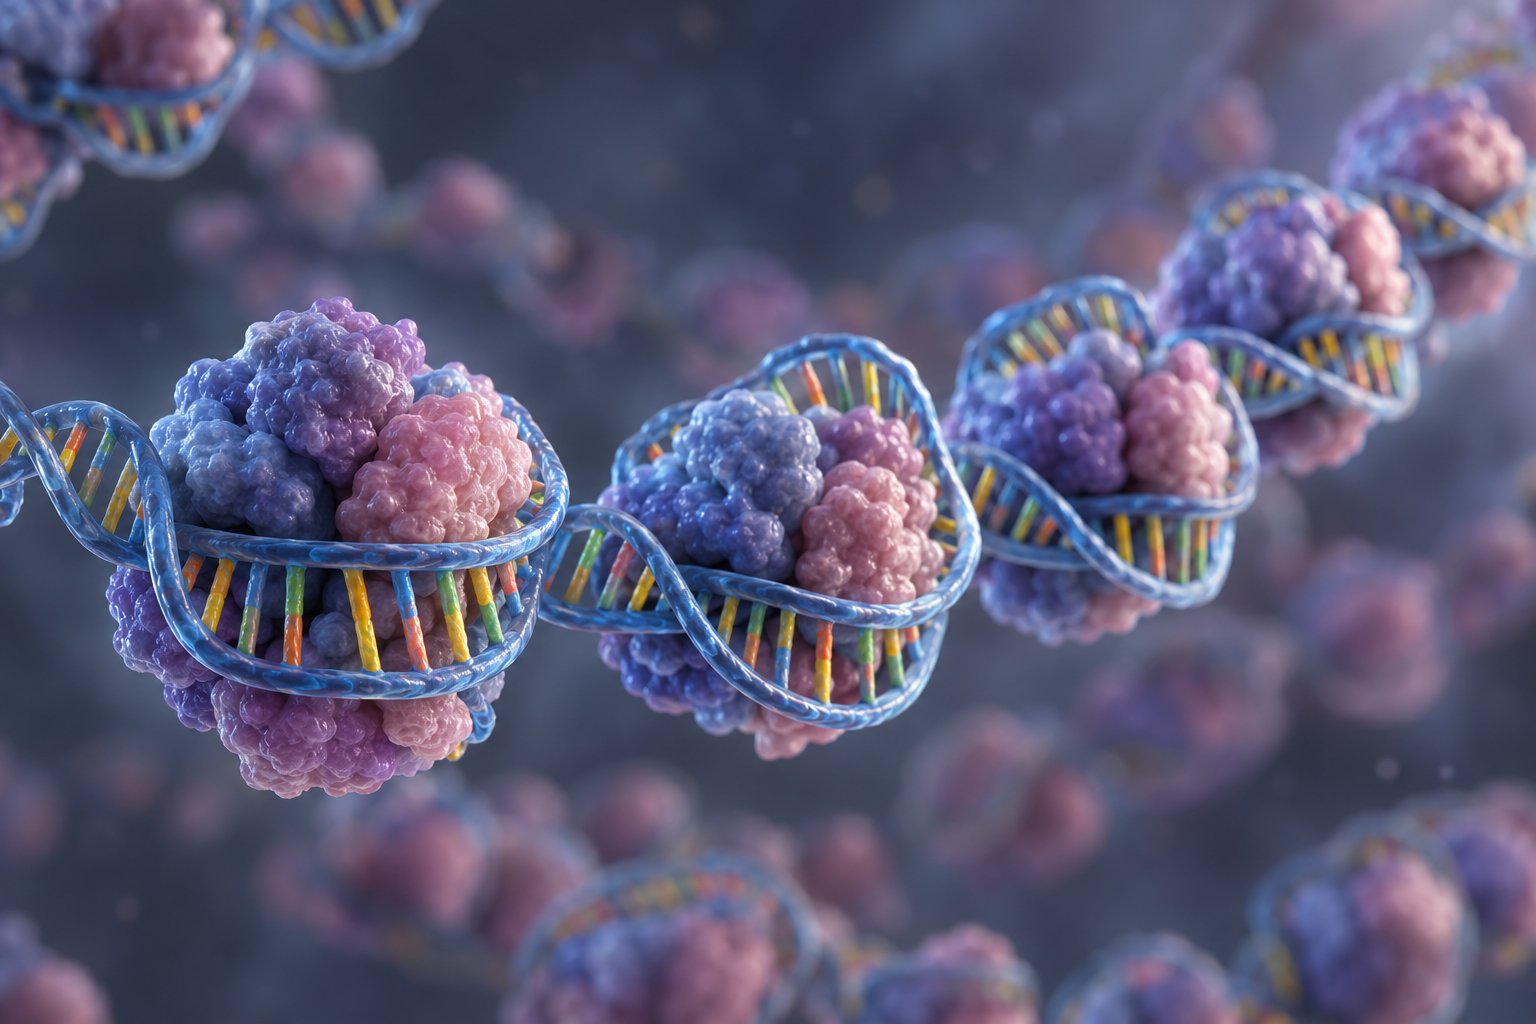
Cromatina é DNA enrolado em proteínas. A cada 147 pares de bases, a dupla-hélice dá quase duas voltas em torno de um carretel de oito proteínas chamadas histonas; o conjunto é um nucleossomo, e a fileira de nucleossomos forma uma fibra de uns 10 nanômetros, um colar de contas. Essa fibra se dobra em fibras mais grossas, que se prendem em alças a um arcabouço de proteínas. O enrolamento resolve um problema de espaço: as 46 moléculas de DNA de uma célula humana somam cerca de 2 metros, e o núcleo tem uns 6 micrômetros de diâmetro.
Exemplo resolvido: quantas vezes o fio é mais comprido que a caixa. Converta para a mesma unidade: 2 m = 2 000 000 µm. Divida pelo diâmetro do núcleo: 2000000÷6≈333000. O DNA é cerca de 300 mil vezes mais comprido que o compartimento que o guarda. Conferência: 6 µm × 333 000 = 1 998 000 µm, perto de 2 m. Sem um enrolamento em vários níveis o fio não caberia, e, mais importante, não haveria como separar as cópias na divisão sem embaraçar tudo.
Nem toda a cromatina está igualmente enrolada. A eucromatina é a fração frouxa, e é nela que estão os genes em leitura: a maquinaria de transcrição precisa alcançar o DNA, e só alcança o que está desenrolado. A heterocromatina é a fração compacta, que fica em geral encostada na lâmina nuclear e corada mais escura; contém sequências repetidas, regiões sem genes ativos e genes silenciados naquela célula. Um exemplo clássico de heterocromatina é um dos dois cromossomos X das células de uma mulher, que fica inativo e compactado durante toda a interfase, visível como um grão escuro na borda do núcleo. Em todas essas formas o objeto é o mesmo: a molécula de DNA de cada cromossomo.
Quando a célula vai se dividir, a mesma cromatina se compacta ainda mais e cada molécula de DNA vira um bastão visível ao microscópio óptico, cerca de 10 mil vezes mais curto que a molécula esticada: o cromossomo na forma que os desenhos de livro consagraram. Aqui mora um erro frequente. O cromossomo não surge na divisão. A molécula de DNA existe o tempo todo; o que muda é o grau de enrolamento. Cromatina é o cromossomo desenrolado para ser lido; o bastão é o cromossomo enrolado para ser transportado. Um fio de lã solto e o mesmo fio enrolado num novelo não são dois objetos, são dois estados de um objeto.
"Cromatina e cromossomo são coisas diferentes"
Em item de prova, a frase costuma vir assim: “durante a interfase a célula não possui cromossomos, apenas cromatina” ou “os cromossomos são formados no início da divisão a partir da cromatina”. As duas erram pelo mesmo motivo. A célula em interfase tem os mesmos 46 cromossomos, no estado pouco compactado; eles ficam visíveis como bastões só na divisão. Teste com um caso-limite: um neurônio adulto nunca mais se divide e fabrica proteínas a vida inteira; se cromossomo fosse algo que só existe na divisão, o neurônio não teria genes para ler. A frase correta é: “na interfase, os cromossomos existem na forma de cromatina”.
Cromossomo: cromátides, centrômero e telômeros
O bastão da divisão tem anatomia própria. Como a célula copiou o DNA antes de se dividir (a fase S, adiante), cada cromossomo compactado é formado por duas cromátides-irmãs, duas moléculas de DNA idênticas, unidas numa região estreitada chamada centrômero. É no centrômero que se monta o cinetócoro, a estrutura de proteínas em que as fibras do fuso se prendem para puxar as cromátides na divisão. As pontas de cada cromátide são os telômeros, sequências repetidas que protegem as extremidades da molécula e que encurtam um pouco a cada cópia; o papel deles na contagem de divisões aparece no fim desta página.
A posição do centrômero dá o nome à forma. Se fica no meio, os dois braços têm o mesmo tamanho e o cromossomo é metacêntrico; deslocado, dá braços desiguais (submetacêntrico); perto da ponta, um braço fica muito curto (acrocêntrico), como nos cromossomos 13, 14, 15, 21 e 22 humanos. Posição do centrômero, tamanho e padrão de faixas são os três critérios que permitem reconhecer cada cromossomo num cariótipo.
Um cuidado de contagem que vale para a página inteira: cromossomos contam-se pelos centrômeros; moléculas de DNA contam-se pelas cromátides. Um cromossomo com duas cromátides é um cromossomo e duas moléculas de DNA. Quando as cromátides se separam, na divisão, cada uma passa a ser um cromossomo. Antes disso, não.
Do fio ao bastão. A mesma molécula de DNA, enrolada em histonas (cromatina) e dobrada em níveis sucessivos, vira o cromossomo compactado da divisão, com duas cromátides unidas pelo centrômero e telômeros nas pontas. A relação parte e todo fecha o esquema: a célula contém o núcleo; o núcleo contém 46 cromossomos; cada cromossomo é uma molécula de DNA; cada gene é um trecho dela. Escalas aproximadas e fora de proporção entre painéis. Diagrama autoral.
Parte e todo, em cinco palavras
A célula contém o núcleo; o núcleo contém os cromossomos; cada cromossomo é uma única molécula de DNA mais as proteínas que a enrolam; um gene é um trecho dessa molécula. Cromossomo, DNA e gene não são três substâncias: são um objeto em três níveis. E todas as células com núcleo de um mesmo organismo carregam o mesmo conjunto de moléculas; não existe “DNA de olho” e “DNA de fígado”. O que muda de uma célula para outra é quais genes estão ligados, assunto da seção sobre diferenciação.
Quantos cromossomos, e por que em pares
Chama-se n o número de cromossomos diferentes de uma espécie, um de cada tipo. Uma célula com um só cromossomo de cada tipo é haploide (n); uma célula com cada tipo em dobro é diploide (2n). Nos humanos, n=23: as células do corpo (somáticas) são 2n=46 e os gametas são n=23. Os dois cromossomos de um mesmo tipo numa célula diploide são homólogos: têm o mesmo tamanho, o mesmo padrão de faixas e os mesmos genes na mesma ordem, e cada um veio de um genitor, um pelo óvulo e outro pelo espermatozoide. Ter os genes em dobro não é redundância inútil: as duas versões podem ser diferentes, e é dessa diferença que trata leis de Mendel.
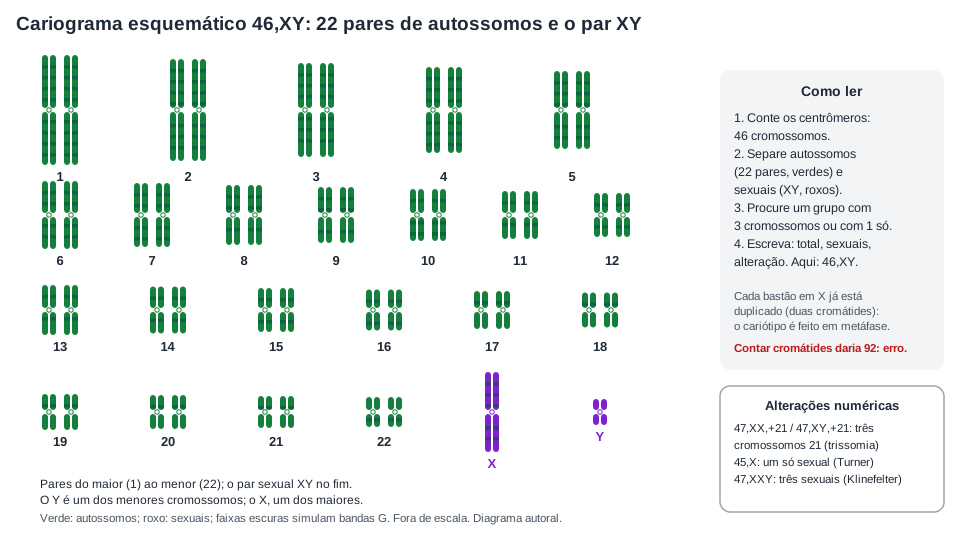
Dos 23 pares humanos, 22 são autossomos, numerados de 1 (o maior) a 22, e o 23.º par é o dos cromossomos sexuais: XX ou XY. O X é grande, com centenas de genes; o Y é pequeno, com poucas dezenas, e os dois só são homólogos em trechos curtos das pontas. Por isso o par sexual de uma célula XY é um par desigual. É o cromossomo Y que carrega o gene que dirige a gônada embrionária a virar testículo; a herança dos genes do X está em leis de Mendel.
A conta que explica por que os gametas precisam ser haploides é a mais simples da página. Na fecundação, n+n=2n. Se os gametas fossem diploides, a primeira geração teria 4n, a segunda 8n, e em dez gerações o número de cromossomos da espécie teria sido multiplicado por mil. Como o número humano é 46 há incontáveis gerações, alguma divisão reduz 2n a n antes da fecundação. Essa divisão é a meiose, e a que mantém 2n é a mitose; as duas estão em mitose e meiose.
espécie
2n
n
mosca-das-frutas (Drosophila melanogaster)
8
4
cebola (Allium cepa)
16
8
milho (Zea mays)
20
10
arroz (Oryza sativa)
24
12
gato (Felis catus)
38
19
ser humano (Homo sapiens)
46
23
chimpanzé (Pan troglodytes)
48
24
cão (Canis familiaris)
78
39
A tabela derruba uma hipótese comum: mais cromossomos não significa organismo “mais complexo”. O cão tem 78 e o chimpanzé, 48; o milho tem 20 e a mosca, 8, e nenhuma dessas diferenças acompanha o número de genes nem o tamanho do genoma. O número de cromossomos é o número de pacotes em que o DNA de uma espécie está repartido. A cebola, com 16, carrega várias vezes mais DNA por célula que você, a maior parte em sequências repetidas que não codificam proteína.
Cariótipo é o conjunto de cromossomos de uma célula, descrito pelo número e pela forma; cariograma é a fotografia organizada desse conjunto, com os cromossomos recortados e dispostos em pares, do maior para o menor, com o par sexual no fim. Para obtê-lo, o laboratório segue uma sequência fixa.
Colhe células que possam se dividir, em geral linfócitos de uma amostra de sangue (ou células do líquido amniótico, no diagnóstico pré-natal).
Cultiva-as por cerca de três dias com um estímulo que as faz entrar em ciclo.
Acrescenta colchicina, substância que impede a montagem dos microtúbulos do fuso: as células chegam à metáfase, com os cromossomos no máximo de compactação, e param ali, porque não conseguem separar as cromátides.
Trata as células com solução hipotônica, para que inchem e os cromossomos se espalhem, fixa e espalha sobre a lâmina.
Cora. O corante mais usado (Giemsa, depois de um tratamento enzimático) produz as bandas G, faixas claras e escuras cujo padrão é próprio de cada cromossomo.
Fotografa, recorta cada cromossomo da imagem e ordena os pares por tamanho, posição do centrômero e padrão de bandas.
O resultado se escreve numa notação curta: primeiro o número total de cromossomos, depois os sexuais, depois a alteração, se houver. 46,XX e 46,XY são os cariótipos sem alteração numérica. Cada “X” do cariograma é um cromossomo já duplicado, com duas cromátides unidas pelo centrômero; o cariótipo é feito em metáfase justamente por isso, e contar as cromátides em vez dos centrômeros daria 92, um erro de leitura.
Cariograma esquemático 46,XY. Os pares são ordenados do maior para o menor, com o par sexual no fim; o Y é bem menor que o X. Para ler: conte os centrômeros (46), separe autossomos (22 pares) e sexuais (XY) e confira se algum grupo tem um cromossomo a mais ou a menos; a caixa inferior dá as notações das três aneuploidias mais citadas. Autossomos em verde, sexuais em roxo; tamanhos e bandas aproximados, fora de escala. Diagrama autoral.
O número 46 só foi estabelecido em 1956, por Joe Hin Tjio e Albert Levan, em células humanas cultivadas; durante as três décadas anteriores os livros registravam 48, uma contagem feita em preparações de pior qualidade. A história ensina uma coisa sobre o método: a contagem depende de células em metáfase bem espalhadas, e a colchicina e o choque hipotônico, que tornaram isso possível, são técnicas da década de 1950.
Alterações numéricas. Quando o cariograma mostra um cromossomo a mais ou a menos, a célula tem uma aneuploidia: 47 ou 45 cromossomos em vez de 46. Três casos aparecem em qualquer livro escolar e podem ser lidos direto do cariograma.
cariótipo
o que o cariograma mostra
nome
frequência aproximada
47,XX,+21 ou 47,XY,+21
três cromossomos 21; 45 autossomos e 2 sexuais
trissomia do 21 (síndrome de Down)
cerca de 1 em 700 nascimentos
45,X
um só cromossomo sexual, um X; 44 autossomos
síndrome de Turner
cerca de 1 em 2 000 meninas nascidas
47,XXY
três cromossomos sexuais, dois X e um Y; 44 autossomos
síndrome de Klinefelter
cerca de 1 em 650 meninos nascidos
As frequências são as da literatura médica de referência (MedlinePlus Genetics, dos Institutos Nacionais de Saúde dos Estados Unidos). Na maior parte dos casos, a alteração se origina de um erro na separação dos cromossomos durante a formação do gameta, a não disjunção, que está em mitose e meiose; o zigoto que recebe 47 cromossomos copia esse número em cada mitose, e por isso todas as células com núcleo da pessoa têm 47. A classificação das alterações cromossômicas e as consequências de cada uma estão em mutações. Duas regras de linguagem valem aqui como em qualquer texto de saúde: diz-se “pessoa com síndrome de Down”, não “portador”, e o cariótipo descreve cromossomos, não a pessoa.
A prova usa esses cariótipos como exercício de leitura. No PAS 3 de 2020, o item 74 deu o nome ao tipo de alteração: “Alterações no número de cromossomos, como as observadas na maioria dos casos de síndrome de Down, são denominadas aneuploidias”, gabarito C. No PAS 3 de 2010, o item 65 pediu para concluir o sexo genital a partir da presença ou ausência do Y nos cariótipos 47,XXY e 45,X: com Y, masculino; sem Y, feminino, gabarito C. Nos dois casos a resposta estava na leitura do cariograma, não em detalhes clínicos.
Dois deslizes de leitura. O primeiro é escrever ou aceitar “46 pares de cromossomos”: são 46 cromossomos em 23 pares; 46 pares seriam 92 cromossomos. O segundo é imaginar o Y como o cromossomo “masculino e grande”: o Y é um dos menores cromossomos humanos, e o X é um dos maiores. Num cariograma, o par desigual no canto inferior direito, com um bastão longo e um curto, é XY.
O ciclo celular: a interfase é o trabalho pesado
Uma célula humana em cultura leva cerca de 24 horas entre nascer de uma divisão e terminar a divisão seguinte. Desse dia inteiro, a parte que aparece nas micrografias, com cromossomos em bastão se alinhando e se separando, dura cerca de uma hora. As outras 23 horas são a interfase, e o nome engana, porque sugere intervalo. É nela que a célula cresce, dobra o número de organelas e, principalmente, copia todo o seu DNA. A interfase se divide em três etapas, definidas pelo estado do DNA; a quarta etapa do ciclo é a divisão.
G1 (do inglês gap, intervalo): a célula recém-nascida cresce, fabrica proteínas e organelas e trabalha no que a sua especialização pede. Cada um dos 46 cromossomos é uma única molécula de DNA. É a etapa mais longa e a mais variável entre tipos de célula.
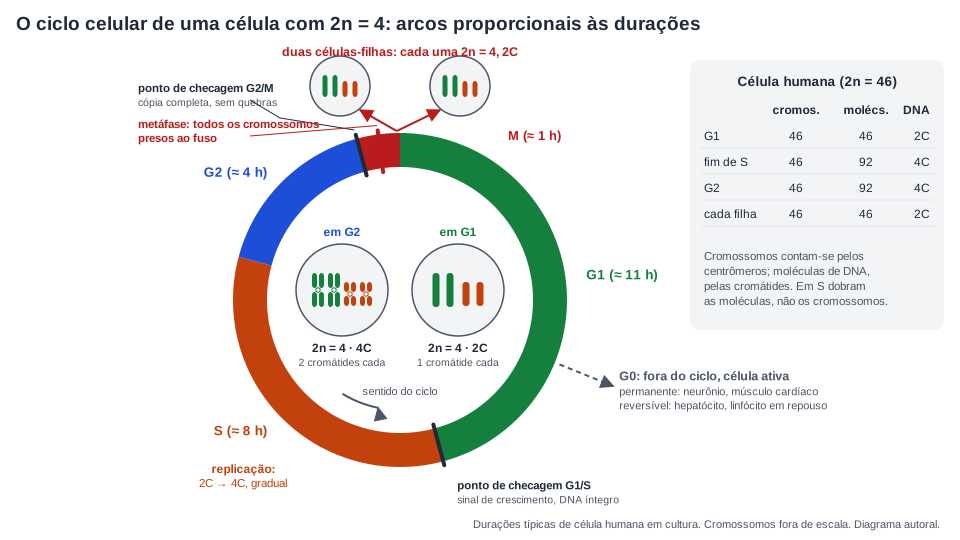
S (synthesis): a replicação. Cada molécula de DNA é copiada inteira, e a quantidade de DNA sobe gradualmente até dobrar, porque copiar os cerca de 6 bilhões de pares de bases de uma célula diploide (3,1 bilhões em cada conjunto de 23 cromossomos) leva horas, mesmo com milhares de pontos de início trabalhando ao mesmo tempo. Ao fim de S, cada cromossomo é formado por duas cromátides idênticas unidas pelo centrômero: ainda um cromossomo, contado pelo centrômero. A célula continua 2n=46, agora com 92 moléculas de DNA. Como a cópia é feita, fita por fita, está em DNA, RNA e síntese proteica.
G2: a célula confere a cópia, repara erros e fabrica as proteínas da divisão, entre elas as dos microtúbulos do fuso.
M: a mitose, em que as cromátides de cada cromossomo são separadas e cada célula-filha recebe 46 cromossomos de uma cromátide só, seguida da citocinese, que reparte o citoplasma. As fases, nome a nome, estão em mitose e meiose. Nas células da linhagem germinativa, a divisão que ocupa o lugar de M é a meiose, e o ciclo não recomeça: as células formadas são gametas.
Os tempos típicos de uma célula humana em cultura, usados como referência nos livros de biologia celular, são G1 cerca de 11 h, S cerca de 8 h, G2 cerca de 4 h e M cerca de 1 h. No corpo, a variação é grande, e quase toda ela está em G1. Uma célula do forro do intestino completa o ciclo em cerca de um dia. Uma célula do fígado adulto pode passar meses sem se dividir e volta ao ciclo se parte do órgão é removida. Neurônios e células do músculo cardíaco saem do ciclo de vez.
O ciclo de uma célula hipotética com 2n = 4, com os arcos proporcionais às durações típicas de uma célula humana em cultura. Em G1, cada cromossomo tem uma cromátide (2C); depois de S, duas cromátides unidas pelo centrômero (4C), ainda quatro cromossomos; M separa as cromátides e cada filha recebe quatro cromossomos simples (2C). A seta tracejada marca a saída para G0; as barras marcam os três pontos de checagem; a tabela traduz tudo para a célula humana. Cromossomos fora de escala. Diagrama autoral.
A contabilidade de cromossomos e DNA ao longo do ciclo
Chame de C a quantidade de DNA nuclear de um gameta da espécie (23 moléculas, no caso humano). Uma célula somática em G1 tem 2n cromossomos e 2C de DNA; depois de S, continua 2n, com 4C; cada célula-filha da mitose nasce com 2n e 2C. O número de cromossomos não muda em S, porque nenhum centrômero se separa; o que dobra é o número de moléculas. Para a célula humana: G1, 46 cromossomos e 46 moléculas; G2, 46 cromossomos e 92 moléculas; cada filha, 46 e 46.
célula humana somática
cromossomos
cromátides por cromossomo
moléculas de DNA
quantidade de DNA
em G1
46
1
46
2C
em S (no meio)
46
1 ou 2, conforme o trecho já copiado
entre 46 e 92
entre 2C e 4C
em G2
46
2
92
4C
cada célula-filha ao fim de M
46
1
46
2C
Exemplo resolvido: uma espécie com 2n=12. Uma célula somática dessa espécie em G1 tem 12 cromossomos e 12 moléculas de DNA. Ao fim de S, tem 12 cromossomos, 24 cromátides e 24 moléculas; a quantidade de DNA foi de 2C a 4C. Depois da mitose, cada célula-filha tem 12 cromossomos e 12 moléculas. Um gameta dessa espécie tem n=6 cromossomos e 6 moléculas, 1C. Conferência: 4C = 2C + 2C; o DNA total se conservou quando uma célula virou duas.
G0: as células que saem do ciclo
Nem toda célula está a caminho da próxima divisão. Uma célula que termina G1 sem o sinal para entrar em S pode sair do ciclo para um estado chamado G0, em que trabalha normalmente, lê genes, fabrica proteínas e não copia o DNA. Três situações mostram que G0 não é um estado só.
G0 permanente. A maioria dos neurônios e as células do músculo cardíaco entram em G0 pouco depois de se diferenciar e ficam ali por décadas. É por isso que uma lesão na medula espinhal ou um infarto cicatrizam com tecido de sustentação, e não com neurônios ou células musculares novas.
G0 reversível. Os hepatócitos, as células do fígado, ficam em G0 por meses, mas voltam a G1 e se dividem quando parte do órgão é retirada ou lesada; o fígado recupera a massa em semanas. Linfócitos em repouso também ficam em G0 e voltam ao ciclo quando encontram o antígeno que reconhecem.
O caso-limite da hemácia. A hemácia madura dos mamíferos não tem núcleo: perdeu-o ao amadurecer na medula óssea, junto com mitocôndrias e ribossomos. Ela não está em G0, nem em G1, nem em fase nenhuma, porque não tem DNA para copiar nem para ler. Trabalha com as proteínas que trouxe, sobretudo a hemoglobina, e é retirada de circulação depois de cerca de quatro meses. O PAS 3 de 2022 julgou exatamente isso no item 60: “Hemácias maduras não têm núcleo e, por isso, não há transcrição nessas células”, gabarito C. Sem DNA nuclear não há molde para RNA mensageiro novo; a tradução das mensagens antigas ainda ocorre por algum tempo nas células jovens, mas a transcrição, não.
"G0 é morte" e "neurônio não tem cromossomos"
G0 não é morte celular nem repouso: a célula em G0 está metabolicamente ativa, só não se prepara para dividir. E uma célula que nunca mais se divide continua com os 46 cromossomos, no estado de cromatina, lendo genes o tempo todo. A morte programada tem outro nome, apoptose, e aparece adiante.
Como ler o gráfico de DNA por célula
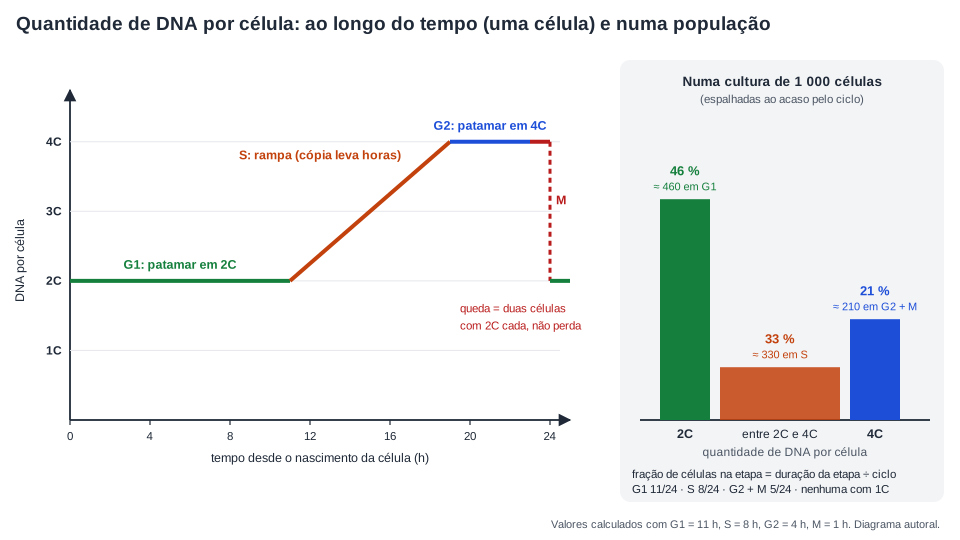
A melhor maneira de fixar o ciclo é o gráfico da quantidade de DNA por célula contra o tempo. Ele tem quatro trechos, e cada um corresponde a uma etapa pelo estado do DNA, não pela ordem decorada.
Um patamar em 2C, no começo: G1. Nada está sendo feito com a quantidade de DNA.
Uma rampa de 2C a 4C: S. A cópia está em andamento e demora horas.
Um patamar em 4C: G2. A cópia terminou; a célula se prepara para dividir.
Uma queda brusca de 4C a 2C: M. A queda não é perda de DNA. No fim da mitose há duas células, cada uma com 2C; o gráfico, que acompanha uma célula, passa a mostrar uma das duas.
À esquerda, a quantidade de DNA de uma célula ao longo de um ciclo de 24 h: patamar (G1), rampa (S), patamar (G2) e queda (M), que é repartição entre duas células, não degradação. À direita, o mesmo ciclo visto numa população: numa cultura com células espalhadas ao acaso pelo ciclo, a fração de células com 2C, com valores intermediários e com 4C reproduz a duração de G1, S e G2 + M. Valores calculados com G1 = 11 h, S = 8 h, G2 = 4 h e M = 1 h. Diagrama autoral.
O segundo painel introduz a conta que os exercícios deste assunto costumam pedir. Numa população de células espalhadas ao acaso pelo ciclo, a fração de células numa etapa é igual à fração do tempo do ciclo que a etapa ocupa. Se G1 dura 11 das 24 horas, 11/24 das células (46 %) estão em G1 a qualquer instante. Laboratórios medem isso com um citômetro de fluxo: as células passam uma a uma por um laser, coradas com um corante que se prende ao DNA, e a fluorescência de cada uma é proporcional ao seu DNA. Numa cultura em crescimento, o aparelho encontra um pico em 2C, um pico menor em 4C e uma faixa de valores intermediários; não encontra nenhuma célula com 1C nem com mais de 4C. A ausência de 1C é a prova de que o que se reparte na divisão é a cópia feita antes.
Exemplo resolvido: duração de uma fase a partir da fração de células. Numa lâmina com 400 células de um tecido cujo ciclo dura 20 h, contaram-se 60 células com DNA entre 2C e 4C. Quanto dura S? A fração em S é 60÷400=0,15. A duração é 0,15×20=3 h. Conferência: se S ocupasse 3 das 20 horas, 15 % das células estariam nela, e 15 % de 400 é 60. A conta vale no sentido inverso: se o ciclo dura 24 h e M dura 1 h, numa amostra de 1 200 células espera-se 1200×1/24=50 em divisão. A premissa é que as células estejam distribuídas ao acaso pelo ciclo; uma cultura sincronizada por uma droga não obedece a ela.
Exemplo resolvido: ler um gráfico desconhecido. Um gráfico mostra 2C de 0 a 9 h, subida de 2C a 4C de 9 a 16 h, 4C de 16 a 21 h e queda para duas células com 2C em 22 h. G1 dura 9 h; S, 7 h; G2, 5 h; M, 1 h; o ciclo, 22 h. Se uma droga que bloqueia a replicação for acrescentada na hora 0, a célula passa por G1, tenta entrar em S e fica presa com DNA próximo de 2C indefinidamente: sem completar a cópia, nenhum ponto de checagem libera a entrada em M, e ela não se divide. É o princípio de várias drogas de quimioterapia, adiante.
Os pontos de checagem: freio e acelerador
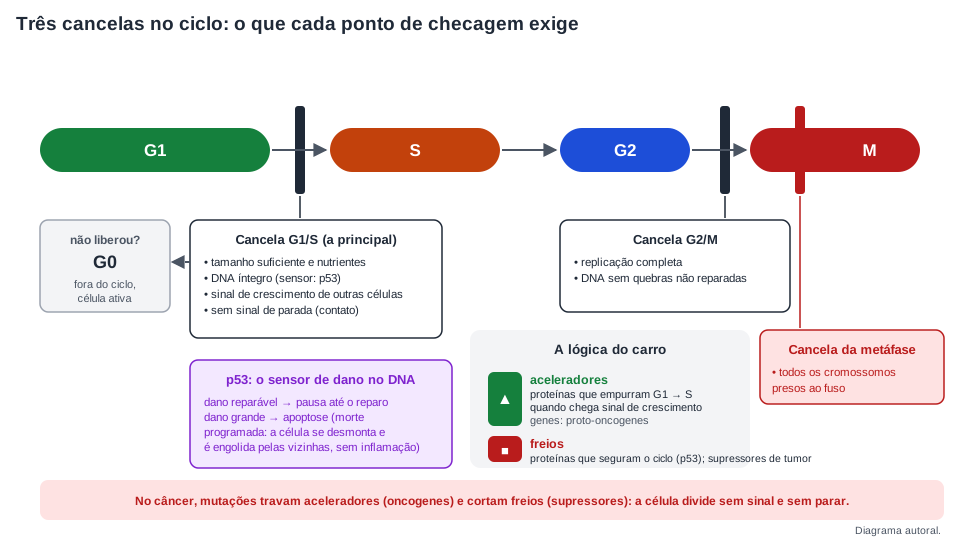
O ciclo não roda como um relógio que ninguém pode parar. Em ao menos três momentos, um conjunto de proteínas só permite a passagem se certas condições estiverem satisfeitas. São os pontos de checagem.
Fim de G1 (G1/S). O principal. A célula só entra em S se estiver com tamanho adequado, com nutrientes, com o DNA íntegro e, numa célula do corpo, se estiver recebendo sinais de crescimento vindos de outras células: proteínas liberadas por vizinhas, por plaquetas num ferimento, por hormônios. Sem esses sinais, a célula não copia o DNA e pode entrar em G0. Com espaço ocupado, as células de muitos tecidos param por inibição por contato: quando as bordas de uma ferida se tocam, as proteínas de adesão entre células vizinhas acionam o sinal que fecha o ciclo. É assim que o joelho ralado “sabe” parar.
Fim de G2 (G2/M). A entrada em M depende de a replicação estar completa e de o DNA não ter quebras sem reparo.
Metáfase (ponto de checagem do fuso). A separação das cromátides só é liberada quando todos os cromossomos estão presos às fibras do fuso pelos dois lados. Um cromossomo solto segura a anáfase inteira. É o freio que a colchicina mantém acionado quando se faz um cariótipo.
A molécula mais conhecida desse sistema é a proteína p53, o sensor do primeiro ponto. Quando o DNA está danificado, ela interrompe o ciclo em G1 até o reparo; se o dano é grande demais, aciona a morte programada da célula. Os controladores que marcam o ritmo do ciclo, as ciclinas e as quinases que elas ativam, valeram a Leland Hartwell, Tim Hunt e Paul Nurse o Nobel de Fisiologia ou Medicina de 2001, pelas “descobertas de reguladores-chave do ciclo celular”. A lógica que a escola precisa guardar é a de um carro: há aceleradores, as proteínas que empurram a célula de G1 para S quando chega um sinal de crescimento, e há freios, as proteínas que seguram o ciclo enquanto faltam condições. Não existe decisão no sentido humano: são reações químicas que se bloqueiam mutuamente, como um circuito. O resultado é que uma célula normal não copia DNA danificado nem se divide sem sinal.
Três cancelas no ciclo. A de G1/S exige tamanho, nutrientes, DNA íntegro e sinal de crescimento; sem liberar, a célula vai para G0. A de G2/M exige cópia completa e sem quebras. A da metáfase exige todos os cromossomos presos ao fuso. A p53 é o sensor de dano: pausa para reparo ou apoptose. A metáfora do acelerador e do freio é a chave da seção sobre câncer. Diagrama autoral.
Apoptose. A morte programada é parte do controle, não uma falha dele. Uma célula com DNA danificado além do reparo, uma célula infectada por vírus ou uma célula que deixou de ser necessária recebe o sinal, ativa enzimas que fragmentam o próprio DNA e as próprias proteínas, encolhe e é engolida por células vizinhas ou por células de defesa, sem inflamação. É por apoptose que as membranas entre os dedos do embrião desaparecem e que os linfócitos que reagiriam contra o próprio corpo são eliminados. No ciclo celular, a apoptose é a saída de emergência: quando o freio não basta, a célula é retirada antes de copiar o erro para as filhas.
Quanto de você foi feito hoje
Um adulto de referência renova cerca de 330 bilhões de células por dia, uns 80 gramas de matéria viva a cada 24 horas, segundo a estimativa de Ron Sender e Ron Milo publicada em 2021 na Nature Medicine. Em número, perto de 90 % dessas células novas são do sangue, sobretudo hemácias e neutrófilos; em massa, o sangue divide a conta com o forro do intestino, trocado inteiro em uns cinco dias. No outro extremo, a maior parte dos neurônios do córtex e das células do músculo cardíaco não é reposta: estão em G0 desde a infância. A frase “o corpo se renova inteiro a cada sete anos”, que circula sem fonte, é falsa nos dois sentidos: o intestino se renova em dias; boa parte do cérebro, nunca.
Quando o freio falha: câncer
Os freios e aceleradores do ciclo são proteínas, e proteínas são produtos de genes. Se um gene que codifica um acelerador sofre uma mutação que o deixa permanentemente ligado, a célula recebe um sinal de crescimento que não existe; o gene normal chama-se proto-oncogene, e a versão mutada, oncogene. Se um gene que codifica um freio, como o da p53, sofre uma mutação que o inutiliza, a célula deixa de parar quando o DNA está danificado e deixa de acionar a própria morte; esses genes chamam-se supressores de tumor. O que é uma mutação, como surge e como se classifica está em mutações; aqui interessa a consequência.
Nenhuma dessas mutações, sozinha, costuma bastar. O câncer é quase sempre o resultado de várias mutações acumuladas na mesma linhagem de células ao longo de anos ou décadas, cada uma removendo um freio ou travando um acelerador. É por isso que a maioria dos cânceres aparece depois dos 50 anos: acumular mutações leva tempo. A célula que escapou dos freios se divide sem sinal e sem parar, e as suas descendentes herdam as mesmas mutações, porque a mitose copia o DNA como ele está. A massa que se forma é um tumor.
Benigno e maligno. Se as células permanecem juntas e delimitadas, o tumor é benigno; cresce devagar, não invade os tecidos vizinhos e em geral pode ser removido por cirurgia. Se as células adquirem, por novas mutações, a capacidade de romper a matriz que as prende, entrar num vaso sanguíneo ou linfático, viajar e formar tumores em outros órgãos, o tumor é maligno, e o processo de espalhamento chama-se metástase. É a metástase que torna o câncer difícil de tratar: uma cirurgia retira o tumor original, não as células que já saíram.
O Instituto Nacional de Câncer (INCA) define câncer como o nome dado a um conjunto de mais de cem doenças que têm em comum o crescimento desordenado de células, que invadem tecidos e órgãos. Cada uma leva o nome do tecido de origem, e um câncer de pele e uma leucemia têm em comum o ciclo sem freio e quase nada mais, inclusive no tratamento. Duas ideias comuns caem diante dessa definição. Câncer não é contagioso: a célula tumoral é uma célula da própria pessoa, com mutações nos genes de controle, e ninguém recebe um tumor de outra pessoa. Câncer não é “sempre de família”: a maior parte das mutações é adquirida ao longo da vida, nas células do corpo, e não está nos gametas; segundo o INCA, os casos associados a fatores hereditários correspondem a cerca de 5 a 10 % do total, em famílias em que uma variante herdada já retira um dos freios desde o nascimento.
De onde vêm as mutações: fatores de risco
Toda vez que o DNA é copiado há uma chance minúscula de erro; toda vez que um agente químico ou físico altera uma base há uma chance de a alteração escapar do reparo. Fatores de risco são o que aumenta essas chances. Três deles têm consenso, mecanismo e número.
Tabaco. A fumaça do cigarro contém dezenas de substâncias reconhecidamente cancerígenas, que reagem com o DNA das células que a fumaça toca e das que a absorvem pelo sangue. O INCA responsabiliza o tabagismo por cerca de 90 % das mortes por câncer de pulmão e o relaciona a vários outros tipos de câncer. É o fator de risco evitável de maior peso.
Radiação ultravioleta. A luz do Sol, nas faixas UVA e UVB, tem energia suficiente para ligar quimicamente duas bases vizinhas do DNA, um erro que a célula em geral repara, mas não sempre. Acumulado ao longo de décadas, o resultado é o câncer mais frequente do Brasil em ambos os sexos, o de pele não melanoma, que raramente mata; o melanoma, mais raro, é o que exige atenção com sinais que mudam de forma ou cor. O INCA aponta a exposição solar excessiva como o principal fator de risco do câncer de pele e lembra que a exposição cumulativa nos primeiros 10 a 20 anos de vida pesa muito no risco adulto. Protetor solar, sombra nas horas de sol forte e chapéu são prevenção de câncer com base no ciclo celular.
Vírus. Alguns vírus, ao infectar uma célula, produzem proteínas que inativam a p53 e outros freios. O papilomavírus humano (HPV) faz isso: certos tipos dele, transmitidos por contato sexual, infectam as células do colo do útero e, numa fração das pessoas infectadas, ao longo de anos, levam ao câncer de colo do útero. Segundo o INCA, os tipos 16 e 18 respondem por cerca de 70 % desses cânceres, e o HPV também está ligado a cânceres de ânus, pênis, vulva, vagina e orofaringe. O que é contagioso é o vírus, não o câncer: o que se transmite é um agente que, em algumas das pessoas infectadas, muitos anos depois, contribui para a perda do freio. O mesmo raciocínio vale para o vírus da hepatite B e o câncer de fígado.
A vacina contra o HPV. É uma das vacinas do calendário que previnem um câncer. Ela previne a infecção pelos tipos de HPV mais associados a tumores; não trata infecções nem lesões já existentes, e por isso é mais eficaz antes do início da vida sexual. No Sistema Único de Saúde, o esquema adotado em 2024 é de dose única para meninas e meninos de 9 a 14 anos, com esquemas de mais doses para pessoas imunocomprometidas (recomendações vigentes na Nota Técnica n.º 16/2025 do Ministério da Saúde). O exame preventivo (Papanicolau) continua necessário na vida adulta, porque a vacina não cobre todos os tipos de HPV. Como uma vacina produz imunidade está em vacinas e soros.
Os números do INCA
A Estimativa 2026–2028: Incidência de Câncer no Brasil, publicada pelo INCA e divulgada em fevereiro de 2026, projeta cerca de 781 mil casos novos por ano no país em cada ano do triênio; excluídos os tumores de pele não melanoma, cerca de 518 mil. Entre os homens, os mais incidentes são próstata, cólon e reto, pulmão, estômago e cavidade oral; entre as mulheres, mama, cólon e reto, colo do útero, pulmão e tireoide. O câncer de pele não melanoma é o mais frequente nos dois sexos e é apresentado à parte por ter alta incidência e baixa letalidade. A publicação destaca o colo do útero e o colorretal como cânceres com grande potencial de prevenção e detecção precoce, e aponta diferenças regionais ligadas a fatores socioeconômicos, ambientais e ao acesso aos serviços de saúde. Leia estimativas como estimativas: são projeções a partir dos registros existentes, e o número de casos registrados depende de haver exame disponível. Onde faltam exames, faltam registros, não faltam casos.
Por que o tratamento atinge cabelo, boca e sangue
Os três tratamentos principais atacam o tumor por caminhos diferentes, e dois deles exploram o que esta página ensinou. A cirurgia retira o tumor quando ele está delimitado. A radioterapia dirige radiação de alta energia ao tumor: a radiação quebra o DNA, e uma célula que chega a um ponto de checagem com o DNA quebrado é barrada e morre; células que se dividem muito morrem mais. A quimioterapia usa substâncias que circulam pelo corpo inteiro e interferem na replicação (bloqueando a síntese de nucleotídeos ou travando a dupla-hélice) ou no fuso (impedindo os microtúbulos de se montar ou de se desmontar). Nos dois casos, quem está em ciclo é atingido; quem está em G0 quase não é.
Aí está a resposta para os efeitos colaterais mais conhecidos. As células que mais se dividem no corpo saudável são as do sangue, na medula óssea; as do forro do intestino e da boca; e as da base dos folículos dos pelos e cabelos. Um tratamento que atinge “célula em divisão” atinge todas elas: daí a queda de cabelo, as feridas na boca, os enjoos e a queda das defesas e das hemácias durante a quimioterapia, e a recuperação, em geral, depois que ela termina, porque as células-tronco desses tecidos retomam o ciclo. Tratamentos mais novos, dirigidos a uma proteína mutada específica do tumor ou ao sistema imune, buscam escapar desse efeito sobre as células normais. Nada nesta seção substitui orientação médica: o que vale para o item de prova é o mecanismo, e o que vale para uma pessoa é a avaliação de profissionais de saúde.
Exemplo resolvido: julgar a frase “câncer é contagioso porque o HPV é contagioso”. Separe o que está certo do que está errado. Certo: certos tipos de HPV são transmissíveis, a infecção persistente por eles é a principal causa do câncer de colo do útero e a vacina previne a infecção. Errado: o adjetivo “contagioso” pertence ao vírus e foi transferido para o câncer. O tumor é o resultado, em algumas das pessoas infectadas, de mutações acumuladas nas células do próprio colo do útero, que nunca saíram daquele corpo. Prova por contraste: a maioria dos cânceres não tem vírus algum envolvido (pulmão e tabaco, pele e radiação, erros de cópia), e nenhum deles se transmite por contato. Reescrita: “o HPV é transmissível; o câncer que ele pode causar, anos depois, não é”.
Células-tronco: as que ainda não se especializaram
As suas hemácias duram cerca de 120 dias e não têm núcleo, logo não se dividem. Mesmo assim, você tem hemácias novas todo dia. Elas vêm de uma população de células da medula óssea que faz duas coisas ao mesmo tempo, e são essas duas coisas que definem uma célula-tronco: ela se renova (ao se dividir por mitose, ao menos uma das filhas continua célula-tronco) e se diferencia (a outra filha, ou as suas descendentes, especializa-se num tipo celular). É assim que a medula repõe hemácias, leucócitos e plaquetas por décadas sem se esgotar, e é assim que as criptas do intestino e a camada basal da pele repõem os seus forros.
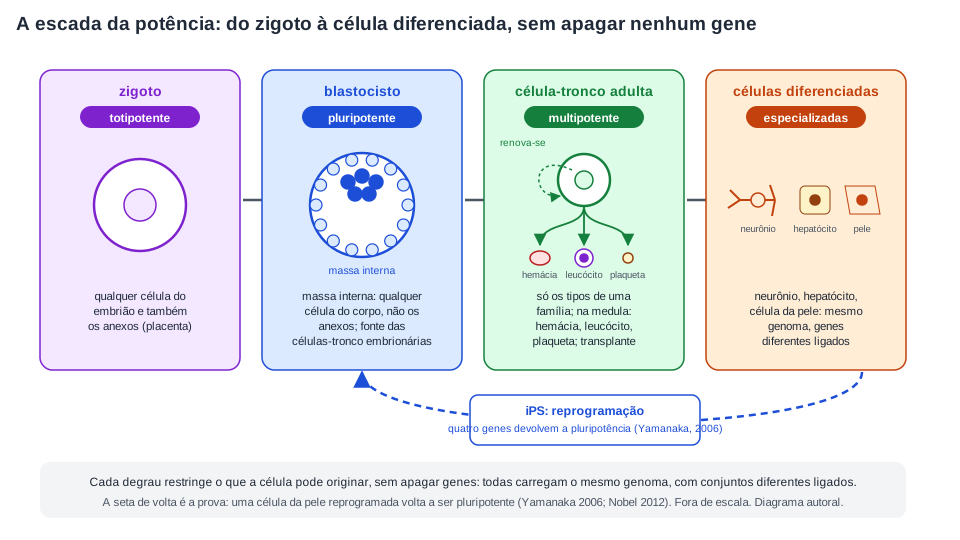
As células-tronco se classificam pelo que conseguem originar, a potência.
Totipotentes: o zigoto e as células das primeiras divisões. Originam qualquer célula do embrião e também os anexos embrionários, como a placenta.
Pluripotentes: as células da massa interna do blastocisto, o embrião de poucos dias. Originam qualquer tipo celular do corpo, mas não os anexos. Cultivadas em laboratório desde 1998, as células-tronco embrionárias são obtidas de embriões, e daí a controvérsia ética.
Multipotentes: as células-tronco adultas (ou de tecido), presentes ao longo da vida nos tecidos que se renovam. Originam os tipos celulares de uma família: a célula-tronco hematopoética da medula origina os tipos de célula do sangue, não um neurônio. É a fonte usada em medicina há décadas.
Há uma quarta fonte, criada em laboratório. Em 2006, Kazutoshi Takahashi e Shinya Yamanaka, na Universidade de Kyoto, mostraram que bastava introduzir em fibroblastos de camundongo (células comuns da pele) os genes de quatro proteínas reguladoras para reprogramá-los num estado semelhante ao das células embrionárias: as células-tronco pluripotentes induzidas (iPS). Em 2007 o mesmo foi feito com células humanas. Yamanaka dividiu o Nobel de Fisiologia ou Medicina de 2012 com John Gurdon “pela descoberta de que células maduras podem ser reprogramadas para se tornar pluripotentes”. As iPS não exigem embriões, mas trazem perguntas próprias: risco de formar tumores, custo alto e acesso desigual.
A escada da potência. Do zigoto totipotente ao blastocisto pluripotente, das células-tronco adultas multipotentes às células diferenciadas, cada degrau restringe o que a célula pode originar sem apagar nenhum gene. A seta tracejada de volta é a reprogramação de Yamanaka: uma célula da pele que volta a ser pluripotente é a prova de que o genoma inteiro continuava lá. Esquema fora de escala. Diagrama autoral.
Transplante de medula e o REDOME
O transplante de medula óssea é uma terapia com células-tronco adultas: as células hematopoéticas de um doador compatível são infundidas no paciente, cuja medula foi destruída pela doença ou pelo tratamento, e passam a repor o sangue dele. A compatibilidade depende de um conjunto de genes (o sistema HLA) que varia muito entre pessoas; segundo o INCA, a chance de compatibilidade entre irmãos é de cerca de 30 %, e é muito menor entre pessoas sem parentesco. Por isso existem registros de doadores voluntários: o REDOME, o registro brasileiro, mantido pelo INCA, é o terceiro maior do mundo, e os registros de todos os países somam mais de 38 milhões de doadores. O cadastro pede ter entre 18 e 35 anos, boa saúde e uma amostra de sangue de 5 mL para a tipagem HLA; a doação em si é a coleta de células-tronco do sangue ou da medula, que o doador repõe em semanas. Quanto mais diverso o conjunto de doadores, mais pacientes encontram um compatível.
A pesquisa com embriões humanos divide pessoas que concordam sobre os fatos. De um lado, a posição de que o embrião de poucos dias já é uma vida humana com dignidade própria. De outro, a de que embriões excedentes de fertilização in vitro, que seriam descartados, podem ser usados com consentimento dos genitores em pesquisas com potencial de tratar doenças hoje incuráveis. No Brasil, a Lei de Biossegurança (Lei 11.105/2005, artigo 5.º) permite a pesquisa com embriões de fertilização in vitro inviáveis ou congelados há três anos ou mais (contados na data da lei), com consentimento dos genitores e sem comercialização, e em 2008 o Supremo Tribunal Federal julgou a regra constitucional. Separar o que é fato (o que cada fonte de célula pode fazer, o que a lei diz) do que é valor (o que se considera aceitável) é o exercício que o assunto pede.
"Célula-tronco só existe no embrião" e "a da medula vira qualquer coisa"
As duas frases erram em sentidos opostos. Células-tronco adultas existem a vida inteira na medula, na pele, no intestino e, em menor grau, no músculo e no cérebro; é com elas que se faz o transplante de medula. E a célula-tronco da medula é multipotente: origina os tipos de célula do sangue, não um neurônio. “Qualquer tipo de célula do corpo” é propriedade das pluripotentes, embrionárias ou iPS.
Mesmo genoma, genes diferentes ligados
Um neurônio e uma célula do seu fígado vieram, por mitoses sucessivas, do mesmo zigoto. A pergunta sobre se elas têm o mesmo DNA foi respondida por um experimento, não por um argumento. Em 1962, John Gurdon, em Oxford, retirou o núcleo de células do intestino de girinos da rã Xenopus laevis, células já diferenciadas, e o injetou em óvulos cujo próprio núcleo tinha sido destruído. Se a diferenciação apagasse genes, o núcleo intestinal não teria a informação para fazer músculo, pele, olhos e cérebro. Uma fração dos óvulos se desenvolveu em girinos, e alguns em rãs adultas férteis. A conclusão: o núcleo de uma célula diferenciada ainda contém o genoma inteiro; a diferenciação silencia genes, não os elimina. A mesma lógica produziu, em 1996, a ovelha Dolly, a partir do núcleo de uma célula de glândula mamária, e a reprogramação de Yamanaka confirmou por outro caminho.
A taxa de sucesso de Gurdon foi baixa, da ordem de 1 a 2 %. Isso não refuta a conclusão: a hipótese “a diferenciação apaga genes” previa zero rãs, e uma única rã adulta formada de um núcleo intestinal já mostra que aquele núcleo tinha o genoma completo. A taxa baixa diz que reprogramar um núcleo é difícil, não que os outros 98 % tinham perdido genes.
Se todas as células com núcleo carregam o mesmo genoma, o que faz um neurônio ser neurônio é quais genes estão sendo lidos. Os genes da hemoglobina estão no mesmo lugar, nos cromossomos 11 e 16, em todas as suas células com núcleo; só na linhagem que vai virar hemácia eles são lidos em grande quantidade. A insulina só é fabricada nas células do pâncreas. Diferenciação é o processo pelo qual, ao longo do desenvolvimento, sinais recebidos por cada célula ligam alguns conjuntos de genes e silenciam outros de forma estável, tão estável que as filhas de uma célula do fígado, por mitose, nascem células do fígado. A analogia do livro de receitas ajuda e falha: ajuda porque o livro inteiro está em cada cozinha e cada cozinha prepara só algumas receitas; falha porque o livro não decide sozinho o que abrir. Na célula, os sinais que determinam as páginas abertas vêm de outras células, e o padrão, uma vez estabelecido, se herda. Células que se diferenciaram do mesmo modo e trabalham juntas formam um tecido, e esse é o próximo degrau: tecidos humanos.
Quantas vezes uma célula pode se dividir
Em 1961, Leonard Hayflick observou que fibroblastos humanos em cultura param de se dividir depois de 40 a 60 duplicações, mesmo com nutrientes à vontade. A explicação veio com os telômeros: a cada replicação, as pontas dos cromossomos perdem um trecho, porque a maquinaria de cópia não consegue completar a última extremidade; depois de dezenas de divisões, os telômeros encurtam a ponto de a célula acionar o freio de dano ao DNA e parar. Células-tronco e a maioria das células tumorais escapam do limite porque expressam a telomerase, a enzima que refaz as pontas, descoberta por Elizabeth Blackburn, Carol Greider e Jack Szostak, Nobel de 2009. O limite de Hayflick sugere que o fim das divisões é um freio contra a proliferação sem fim, e que o envelhecimento dos tecidos tem, entre outras, essa componente.
Roteiro de leitura: gráficos e cariogramas
Mais do que a definição de interfase, o que os exercícios deste assunto pedem é ler um gráfico, uma tabela ou um cariograma e tirar uma conclusão. Dois roteiros resolvem a maior parte dos casos.
Gráfico de DNA por célula contra o tempo. Primeiro identifique a unidade do eixo vertical (C, 2C, 4C; ou picogramas; ou “quantidade relativa”). Depois classifique cada trecho pelo estado do DNA: patamar baixo é G1; rampa é S; patamar alto é G2 (e o começo de M, até a anáfase); queda brusca é a divisão. Em seguida leia os tempos no eixo horizontal e some: a soma das etapas tem de dar o ciclo. Por fim, pergunte o que o item quer: duração de uma etapa, fração de células, número de cromossomos num ponto (não muda em S) ou número de moléculas (dobra em S). Se o gráfico for de meiose, haverá duas quedas depois de uma só rampa; a leitura está em mitose e meiose.
Fração de células por etapa. Monte a proporção: fração de células na etapa = duração da etapa ÷ duração do ciclo. A premissa é a distribuição ao acaso. Com a fração e o total de células, obtém-se o número esperado; com a fração e o ciclo, a duração.
Cariograma. Conte os centrômeros, não as cromátides. Separe os 22 pares de autossomos do par sexual. Procure um par com três cromossomos (trissomia) ou com um só (monossomia). Escreva a notação: total, sexuais, alteração. Conclua só o que o número permite.
Exemplo resolvido: uma tabela em vez de um gráfico. Uma tabela traz, para uma célula de cebola (2n=16), a quantidade relativa de DNA em quatro momentos: I = 2C; II = 3C; III = 4C; IV = 2C, numa célula menor. Em I, G1: 16 cromossomos de uma cromátide. Em II, meio de S: 16 cromossomos, parte deles já com duas cromátides. Em III, G2: 16 cromossomos de duas cromátides, 32 moléculas. Em IV, uma célula-filha: 16 cromossomos de uma cromátide. Conferência: em nenhum momento o número de cromossomos saiu de 16; o que variou foi o número de moléculas, de 16 a 32 e de volta a 16.
Os erros clássicos, e como a prova os explora
Nos itens reais reproduzidos nesta página e na página irmã, a banca escreve frases quase inteiramente corretas e troca um termo, um lugar ou uma causa. A lista abaixo reúne as trocas que o assunto permite.
a frase errada
o que está trocado
a versão correta
“Na interfase a célula não tem cromossomos, só cromatina.”
estado por objeto
Os cromossomos existem o tempo todo; na interfase, como cromatina.
“A célula passa a maior parte do tempo se dividindo.”
duração
A divisão ocupa cerca de 1 h em 24; a interfase, o resto.
“O DNA é duplicado durante a mitose.”
etapa
A duplicação é na fase S da interfase; a mitose reparte as cópias.
“Depois da fase S a célula humana tem 92 cromossomos.”
cromátide por cromossomo
Tem 46 cromossomos de duas cromátides: 92 moléculas de DNA.
“O ser humano tem 46 pares de cromossomos.”
pares por cromossomos
46 cromossomos em 23 pares.
“A hemácia tem núcleo e se divide para repor o sangue.”
célula
A hemácia madura dos mamíferos não tem núcleo; quem repõe o sangue são as células-tronco da medula.
“G0 é a morte da célula.”
estado
G0 é saída do ciclo com a célula ativa; morte programada é apoptose.
“Câncer é contagioso.”
adjetivo da causa no efeito
O que se transmite é um vírus como o HPV; o tumor se forma nas células da própria pessoa.
“A quimioterapia poupa os tecidos que se renovam rápido.”
sinal invertido
Ela atinge justamente as células em divisão: medula, mucosas, folículos.
“Célula-tronco só existe no embrião.”
fonte
Células-tronco adultas existem a vida inteira; o transplante de medula as usa.
“A célula do olho tem DNA de olho.”
genoma por expressão
Todas as células com núcleo têm o mesmo genoma; muda o que está ligado.
Núcleo: duas membranas (a externa contínua com o retículo rugoso), poros com transporte seletivo, lâmina por dentro, nucleoplasma, cromatina e nucléolo (sem membrana; fabrica RNA ribossômico e subunidades de ribossomo). Procarionte tem nucleoide, não núcleo.
Cromatina e cromossomo são o mesmo DNA enrolado em histonas em dois graus de compactação: frouxo para ser lido (eucromatina), compacto e silencioso (heterocromatina), bastão para ser transportado na divisão. O cromossomo não surge na divisão; fica visível nela.
Parte e todo: célula ⊃ núcleo ⊃ 46 cromossomos; cromossomo = uma molécula de DNA; gene = trecho dela. Cerca de 2 m de DNA num núcleo de 6 µm.
Cromossomo da divisão: duas cromátides-irmãs unidas pelo centrômero, telômeros nas pontas. Cromossomos contam-se pelos centrômeros; moléculas de DNA, pelas cromátides.
Número: n = cromossomos diferentes; haploide n (gametas, 23), diploide 2n (somáticas, 46 = 23 pares de homólogos: 22 pares de autossomos + XX ou XY). Fecundação: n+n=2n. Mais cromossomos não é mais complexidade (cão 78, chimpanzé 48).
Cariótipo: células em metáfase (colchicina), bandas G, pares ordenados por tamanho; notação 46,XX / 46,XY. Aneuploidias lidas direto do cariograma: 47,+21 (trissomia do 21), 45,X (Turner), 47,XXY (Klinefelter).
Ciclo: G1 (2C) → S (replicação, 2C → 4C, horas) → G2 (4C) → M (duas células com 2C). Em cultura, cerca de 24 h, com M em torno de 1 h. Cromossomos não mudam em S; moléculas dobram.
G0: fora do ciclo, célula ativa; permanente (neurônio, músculo cardíaco) ou reversível (hepatócito). Hemácia madura: sem núcleo, sem transcrição (PAS 3 2022, item 60).
Gráfico DNA × tempo: patamar, rampa, patamar, queda; a queda é repartição, não perda. Fração de células numa etapa = duração da etapa ÷ ciclo.
Pontos de checagem: G1/S (tamanho, nutrientes, DNA íntegro, sinal de crescimento), G2/M (cópia completa e sem quebras), metáfase (todos os cromossomos presos ao fuso). p53 pausa ou aciona apoptose. Aceleradores e freios são proteínas, produtos de genes.
Câncer: mutações acumuladas em proto-oncogenes (acelerador travado) e supressores de tumor (freio inutilizado) → divisão sem sinal → tumor; maligno invade e faz metástase. Mais de cem doenças (INCA); 5 a 10 % com fator hereditário; tabaco (90 % das mortes por câncer de pulmão), UV (pele não melanoma, o mais frequente), HPV (vacina em dose única aos 9–14 anos no SUS). Estimativa 2026–2028: 781 mil casos/ano. Radioterapia e quimioterapia atingem células em divisão: cabelo, mucosas, medula.
Células-tronco: autorrenovação + diferenciação. Totipotente (zigoto), pluripotente (embrionárias, iPS), multipotente (adultas; medula → sangue; transplante e REDOME). Yamanaka 2006; Nobel 2012 com Gurdon.
Diferenciação: mesmo genoma, genes diferentes ligados (Gurdon 1962, Dolly 1996). Limite de Hayflick e telômeros: uma célula comum para depois de dezenas de divisões; tumores e células-tronco expressam telomerase.
Exercícios temporariamente indisponíveis
Não foi possível consultar o banco de questões. O conteúdo da aula continua disponível.
Flashcards temporariamente indisponíveis
Não foi possível consultar os cartões de revisão.
Fases do ciclo da célula
Khan Academy Brasil · 7:01
Introdução. Em sete minutos, a aula apresenta as etapas da vida de uma célula, da interfase (G1, S e G2) à divisão, e mostra como a célula cresce e copia o DNA antes de se dividir. É o conteúdo da seção “O ciclo celular: a interfase é o trabalho pesado”. Assista antes de ler e anote, para cada etapa citada, o que acontece com a quantidade de DNA; depois confira com o anel do ciclo e com o gráfico de DNA por célula desta página.
Núcleo interfásico: carioteca, nucléolo, cromatina e cromossomos
Prof. Guilherme Goulart - Biologia · 13:35
Aprofundamento. A aula descreve o núcleo da célula que não está em divisão: carioteca, nucleoplasma, nucléolo e os níveis de espiralização do DNA, do cromonema e do solenoide à cromatina e ao cromossomo. Corresponde às seções “O núcleo é um cofre com portas” e “Cromatina e cromossomo são o mesmo DNA em dois estados”. Pause no trecho dos níveis de compactação e compare com o diagrama “Do fio ao bastão” desta página: o vocabulário do vídeo (cromonema, solenoide) é mais detalhado que o desta página, mas a ideia é a mesma.
Ciclo celular: interfase, duplicação do DNA, pontos de checagem e câncer
Prof. Guilherme Goulart - Biologia · 18:13
Aplicação. Além das fases e da duplicação do DNA, a aula explica os mecanismos que controlam a divisão e como falhas nos pontos de checagem permitem a multiplicação descontrolada de células, com apoptose e proteína p53. É o conteúdo das seções “Os pontos de checagem: freio e acelerador” e “Quando o freio falha: câncer”. O professor avisa que o assunto aparece em questões com gráficos do ciclo, quantidade de DNA, cromossomos e cromátides: use a lista de capítulos da descrição para ir direto ao trecho que falta.
Ciclo celular: exercícios
Biologia Daora com Profª Maura Brandão · 7:21
Resolução de questões. A professora resolve exercícios sobre o ciclo celular. Use depois da seção “Roteiro de leitura: gráficos e cariogramas”: pause em cada enunciado, classifique o trecho do gráfico ou o momento do ciclo pelo estado do DNA (patamar, rampa, queda) e conte cromossomos pelos centrômeros antes de ver a resolução. Se a resposta do vídeo divergir da sua, volte à tabela de contagem desta página e refaça.
Intérfase é uma etapa ativa. O material cromossômico existe mesmo quando não aparece condensado em figuras de divisão.O núcleo em corte. Duas membranas, com a externa contínua ao retículo rugoso; poros que deixam sair RNA e entrar proteína; a lâmina por dentro; cromatina em dois graus de compactação e o nucléolo sem membrana. No quadro à esquerda, o contraste com o nucleoide da bactéria, uma região sem envoltório. Esquema fora de escala. Diagrama autoral.Do fio ao bastão. A mesma molécula de DNA, enrolada em histonas (cromatina) e dobrada em níveis sucessivos, vira o cromossomo compactado da divisão, com duas cromátides unidas pelo centrômero e telômeros nas pontas. A relação parte e todo fecha o esquema: a célula contém o núcleo; o núcleo contém 46 cromossomos; cada cromossomo é uma molécula de DNA; cada gene é um trecho dela. Escalas aproximadas e fora de proporção entre painéis. Diagrama autoral.Cariograma esquemático 46,XY. Os pares são ordenados do maior para o menor, com o par sexual no fim; o Y é bem menor que o X. Para ler: conte os centrômeros (46), separe autossomos (22 pares) e sexuais (XY) e confira se algum grupo tem um cromossomo a mais ou a menos; a caixa inferior dá as notações das três aneuploidias mais citadas. Autossomos em verde, sexuais em roxo; tamanhos e bandas aproximados, fora de escala. Diagrama autoral.O ciclo de uma célula hipotética com 2n = 4, com os arcos proporcionais às durações típicas de uma célula humana em cultura. Em G1, cada cromossomo tem uma cromátide (2C); depois de S, duas cromátides unidas pelo centrômero (4C), ainda quatro cromossomos; M separa as cromátides e cada filha recebe quatro cromossomos simples (2C). A seta tracejada marca a saída para G0; as barras marcam os três pontos de checagem; a tabela traduz tudo para a célula humana. Cromossomos fora de escala. Diagrama autoral.À esquerda, a quantidade de DNA de uma célula ao longo de um ciclo de 24 h: patamar (G1), rampa (S), patamar (G2) e queda (M), que é repartição entre duas células, não degradação. À direita, o mesmo ciclo visto numa população: numa cultura com células espalhadas ao acaso pelo ciclo, a fração de células com 2C, com valores intermediários e com 4C reproduz a duração de G1, S e G2 + M. Valores calculados com G1 = 11 h, S = 8 h, G2 = 4 h e M = 1 h. Diagrama autoral.Três cancelas no ciclo. A de G1/S exige tamanho, nutrientes, DNA íntegro e sinal de crescimento; sem liberar, a célula vai para G0. A de G2/M exige cópia completa e sem quebras. A da metáfase exige todos os cromossomos presos ao fuso. A p53 é o sensor de dano: pausa para reparo ou apoptose. A metáfora do acelerador e do freio é a chave da seção sobre câncer. Diagrama autoral.A escada da potência. Do zigoto totipotente ao blastocisto pluripotente, das células-tronco adultas multipotentes às células diferenciadas, cada degrau restringe o que a célula pode originar sem apagar nenhum gene. A seta tracejada de volta é a reprogramação de Yamanaka: uma célula da pele que volta a ser pluripotente é a prova de que o genoma inteiro continuava lá. Esquema fora de escala. Diagrama autoral.A fase S aumenta a quantidade de DNA, mas não duplica imediatamente a ploidia. Duas cromátides associadas constituem um cromossomo duplicado.A proliferação depende de condições e mecanismos de controle. Divisão celular e diferenciação são processos distintos.Cromatina é DNA associado a proteínas. Sua condensação varia ao longo do ciclo sem criar cromossomos do nada.Complexos de poros participam da troca regulada entre núcleo e citosol. Dimensões e cores são esquemáticas.Na replicação semiconservativa, cada molécula resultante conserva uma fita anterior e incorpora uma recém-sintetizada.A radioterapia quebra DNA. Uma célula que chega a um ponto de checagem com o DNA quebrado é barrada e morre; quem se divide muito passa pelos pontos de checagem mais vezes, e é por isso que o tumor sofre mais que o tecido em G0.Cadastro de doador de medula: uma amostra de sangue para a tipagem HLA. As células-tronco da medula se renovam e se diferenciam, e por isso um doador repõe em semanas o que doa.No citômetro, as células passam uma a uma por um laser, coradas com um corante que se prende ao DNA. O brilho de cada uma diz quanto DNA ela tem: 2C, 4C ou algo entre os dois.Em 1962, um núcleo retirado do intestino de um girino e colocado num óvulo formou uma rã adulta. A célula diferenciada ainda tinha o genoma inteiro: a diferenciação silencia genes, não os apaga.Uma vacina do calendário que previne um câncer: ao impedir a infecção pelo HPV antes da exposição, ela impede que o vírus, anos depois, inative os freios do ciclo celular nas células do colo do útero.O núcleo visto de dentro: duas membranas interrompidas pelos poros, a cromatina granulosa, a heterocromatina mais escura junto à borda e o nucléolo, a fábrica de ribossomos de uma célula que secreta muita proteína.Um cariótipo nasce aqui: linfócitos do sangue cultivados por três dias, parados em metáfase pela colchicina, espalhados e corados. Depois, cada cromossomo é fotografado, recortado e posto no seu par.
Rota PAS 1
Citologia: a célula por dentro · PAS 1
Fontes desta página
Os materiais abaixo contribuíram para a explicação e os exemplos deste assunto.
Rota PAS 1 — Citologia: a célula por dentro · Antes de começar: dez minutos de aquecimento (ideia 4: DNA, genes e cromossomos); Núcleo e divisão celular: quando a célula copia e quando reduz? (carioteca, cromatina, cromossomos, diploide e haploide, ciclo celular e período S, moldura de saúde: câncer, quimioterapia e vacina contra o HPV; itens reais 2013/76, 77 e 79); Como a banca cobra este capítulo; Banco de treino (T19 e T20, variantes autorais sobre quimioterapia e HPV)
Recorte por assunto: núcleo, cromossomos, ciclo celular e a moldura de saúde. Mitose e meiose, do mesmo capítulo, ficam na página irmã.
Rota PAS 1 — Banco de treino da Citologia, resoluções · T19 (quimioterapia e tecidos de renovação rápida) e T20 (vacina contra o HPV e câncer de colo do útero)
Conferência da lógica dos itens de saúde.
Rota PAS 3 — Citologia e bioquímica: a célula em funcionamento · Organelas, núcleo e parede (item real 2022/60, hemácia madura sem núcleo e sem transcrição); Núcleo, ciclo celular e divisões: a contabilidade dos cromossomos (vocabulário: cromossomo, fase S, cromátides-irmãs, centrômero, diploide e haploide, homólogos; tabela de cromossomos e moléculas de DNA); Protocolo do item de célula (contabilidade de DNA)
Fonte do item real da 3.ª etapa e da tabela de contagem em G1 e G2. A gametogênese e as divisões, da mesma seção, ficam na página irmã.
Rota PAS 3 — Genética · Itens reais 2020/74 (aneuploidias e síndrome de Down) e 2010/65 (sexo genital nos cariótipos 47,XXY e 45,X)
Usado apenas para a citação de dois itens reais na seção sobre cariótipo; os itens pertencem às páginas de mutações e de herança ligada ao sexo.
Biologia EM1 — Capítulo 8: Núcleo, cromossomos e divisão celular · O núcleo: um cofre com portas; Cariótipo: 46 cromossomos, 23 pares; O ciclo celular: a interfase é o trabalho pesado (POE do gráfico de DNA, pontos de checagem, resolvidos de leitura de gráfico); box Três escalas (inibição por contato) e Quanto de você foi feito hoje; Quando o ciclo perde o freio: câncer; Células-tronco: as que ainda não se especializaram; Da célula ao tecido: mesma receita, pratos diferentes (Gurdon); Para ir além (limite de Hayflick)
Fonte principal da estrutura do núcleo, do cariótipo, do ciclo, do câncer, das células-tronco e da diferenciação. Números externos conferidos em fontes primárias: a Estimativa do INCA vigente é a de 2026–2028 (781 mil casos/ano; 518 mil sem pele não melanoma), que substitui a Estimativa 2023 citada no capítulo; a frequência da síndrome de Turner foi tomada do MedlinePlus (cerca de 1 em 2 000 meninas); o esquema da vacina contra o HPV foi conferido na Nota Técnica 16/2025 do Ministério da Saúde.
Biologia EM1 — Respostas do Capítulo 8 · Checagens 1, 2, 3, 7, 8 e 9; exercícios 1 a 4, 11, 12, 15, 17, 20 e 21; Para ir além C
Conferência das contas de cromossomos e DNA, da leitura de gráfico e dos distratores sobre câncer e células-tronco.
Biologia EM1 — Bloco PAS do Capítulo 8 (itens reais com textos-base) · Texto-base IV (PAS 1 2013, itens 76 a 79, projeto de lei da vacina contra o HPV, texto integral); gabarito comentado; item autoral tipo C sobre o gráfico de DNA por célula
Reprodução verbatim do texto-base de 2013 e dos quatro itens reais com os gabaritos oficiais.