Se o chimpanzé é o nosso parente vivo mais próximo e nunca virou gente, de onde viemos, por que andamos sobre duas pernas e desde quando falamos?
O que você vai aprender
Situar a espécie humana entre os primatas e ler a árvore dos hominoides: humanos e chimpanzés são primos, descendentes de um ancestral comum extinto de cerca de 6 a 7 milhões de anos, e nenhuma espécie atual é ancestral de outra espécie atual.
Reconhecer as evidências anatômicas do bipedalismo (posição do forame magno, formato da pelve, ângulo do fêmur, pé com arco e hálux alinhado, curvatura da coluna) e as pegadas de Laetoli, e explicar por que o bipedalismo veio antes do cérebro grande.
Distinguir hominoides, hominídeos e hominínios, e descrever os principais hominínios (Sahelanthropus, Australopithecus afarensis e Lucy, Paranthropus, Homo habilis, Homo erectus, Homo heidelbergensis, neandertais, denisovanos, Homo floresiensis, Homo naledi, Homo sapiens) com idade aproximada, região e o que cada um acrescenta.
Explicar a origem africana de Homo sapiens (Jebel Irhoud, cerca de 300 mil anos), a principal dispersão para fora da África (cerca de 70 a 60 mil anos) e o que o DNA antigo mostrou sobre a miscigenação com neandertais e denisovanos.
Relacionar encefalização ao custo energético do cérebro, à dieta, ao fogo e ao cozimento, e aos períodos longos de infância e cuidado parental.
Ordenar as indústrias líticas (Oldowan, Acheulense, Mousteriense, Paleolítico Superior) e ligá-las às espécies e às capacidades cognitivas que indicam.
Separar a capacidade biológica para a linguagem (área de Broca, laringe baixa, osso hioide, gene FOXP2, teoria da mente) de cada língua, que é herança cultural, e resolver itens que confundem inato com aprendido.
Descrever a evolução humana recente e a interação gene-cultura: persistência da lactase, adaptação à altitude, cor da pele e vitamina D, e domesticação de plantas e animais como seleção artificial.
Explicar por que raça não é categoria biológica na espécie humana (variação maior dentro de populações que entre elas, cor da pele como gradiente de poucas variantes), sem confundir com a realidade social do conceito.
Usar o povoamento das Américas (Beríngia, Lagoa Santa, Luzia, sambaquis) como contexto, remetendo a análise histórica à página de pré-história.
Ler árvores filogenéticas com escala de tempo, cronologias de espécies que coexistiram e comparações de crânios (capacidade craniana, prognatismo, arco supraorbital, queixo) e identificar os erros clássicos: o homem veio do macaco, a evolução em linha reta, o elo perdido, espécie atual como ancestral.
Uma camiseta vendida em qualquer feira mostra a fila: um macaco curvado à esquerda, depois figuras cada vez mais eretas, e à direita um homem de pé, às vezes de terno, às vezes com um celular na mão. A imagem é tão conhecida que parece resumo da ciência. Ela erra em quase tudo. Nenhuma das espécies vivas de macaco está no começo da nossa história; a figura da esquerda deveria ser um animal extinto que não era chimpanzé nem humano. As figuras do meio não formam uma fila, porque várias delas viveram ao mesmo tempo, em lugares diferentes, e a maioria se extinguiu sem deixar descendentes. E a figura da direita não é um ponto de chegada: a espécie humana continua mudando, em escala de milhares de anos, como qualquer outra.
Esta página desmonta a camiseta e monta no lugar dela o que fósseis, pegadas, ferramentas e DNA antigo permitem afirmar. Começa pela posição da espécie humana entre os primatas, com a árvore dos grandes primatas e a resposta à pergunta “o chimpanzé é nosso avô ou nosso primo?”. Passa pelo andar sobre duas pernas, que apareceu milhões de anos antes do cérebro grande e deixou marcas no esqueleto que um aluno consegue reconhecer num crânio ou numa pelve. Apresenta as principais espécies da linhagem humana, com idade aproximada, região e o que cada uma acrescenta à história, e mostra que elas coexistiram. Trata do cérebro caro, das ferramentas de pedra, da linguagem (capacidade da espécie, não língua particular), da cultura e da evolução recente, que ainda está em curso. Explica por que “raça” não é categoria biológica em Homo sapiens. Chega às Américas e ao Brasil, com Lagoa Santa, Luzia e os sambaquis. E termina com a leitura de árvores, cronologias e crânios, e com os erros que os itens de prova exploram.
Os mecanismos que produzem a mudança (seleção natural, deriva, mutação, fluxo gênico) estão em teorias evolutivas e em seleção natural; as linhas gerais de evidência e os modos de especiação, em evidências da evolução e especiação; a construção e a leitura formal de cladogramas, em taxonomia e sistemática; a matemática das frequências alélicas, em genética de populações; a pré-história como período histórico (Paleolítico, Neolítico, revolução agrícola), em pré-história. Aqui, o assunto é a história evolutiva da nossa linhagem.
Somos primatas: onde a espécie humana fica na árvore
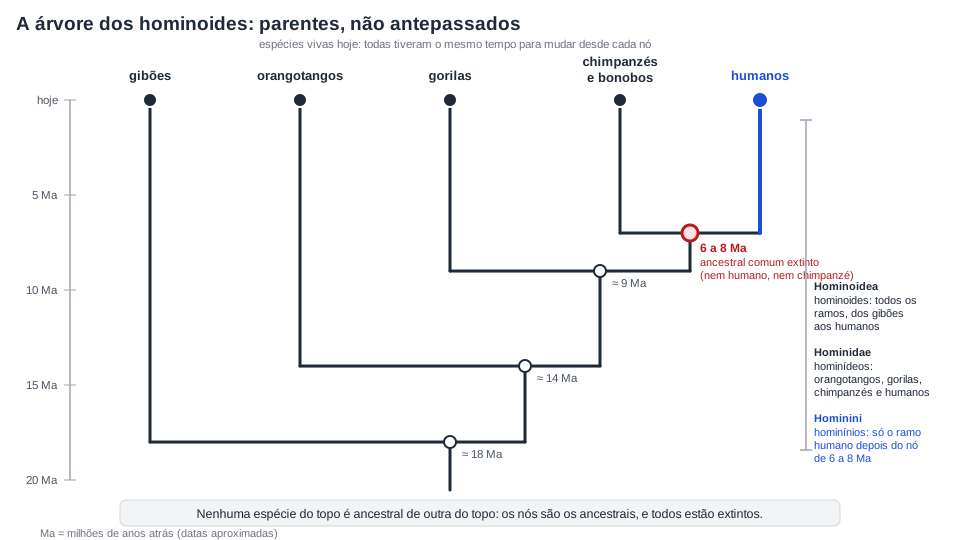
A espécie humana é um mamífero da ordem dos primatas, o grupo que inclui lêmures, macacos do Novo Mundo (como o mico e o bugio), macacos do Velho Mundo (como o babuíno) e os hominoides, que são os gibões e os grandes primatas. Os grandes primatas formam a família Hominidae: orangotangos, gorilas, chimpanzés, bonobos e humanos. A árvore dessa família, reconstruída por anatomia e confirmada por DNA, tem uma forma precisa. O ramo dos orangotangos se separa primeiro, há cerca de 14 milhões de anos. Depois, o dos gorilas, há cerca de 9 milhões. Por último, a linhagem que levaria aos humanos se separa da que levaria a chimpanzés e bonobos, há cerca de 6 a 8 milhões de anos. É por isso que chimpanzé e bonobo são os nossos parentes vivos mais próximos, e nós somos os parentes vivos mais próximos deles: os dois ramos saem do mesmo nó.
A árvore dos hominoides. Humanos e chimpanzés são os ramos mais próximos; o ponto onde eles se juntam é uma espécie extinta, que não era nenhuma das duas. Datas aproximadas, conforme o Programa de Origens Humanas do Smithsonian. Diagrama autoral.
Esse desenho responde à pergunta da camiseta. O chimpanzé não é nosso ancestral: é nosso primo. O ancestral comum de humanos e chimpanzés viveu na África há 6 a 8 milhões de anos e está extinto; a partir dele, uma linhagem foi acumulando as mudanças que levaram aos chimpanzés atuais, e outra, as que levaram a nós. Nenhuma espécie viva hoje é ancestral de outra espécie viva hoje, pelo simples motivo de que as duas tiveram o mesmo tempo para mudar desde a separação. O chimpanzé de hoje é tão “evoluído”, no sentido de distante do ancestral comum, quanto o humano de hoje; ele mudou em outras direções.
Três palavras parecidas, três grupos diferentes
Hominoides (superfamília Hominoidea) são todos os grandes primatas e os gibões: gibão, orangotango, gorila, chimpanzé, bonobo e humano. Hominídeos (família Hominidae) são, na classificação atual, os grandes primatas: orangotango, gorila, chimpanzé, bonobo e humano. Hominínios (tribo Hominini) são a linhagem humana depois da separação da linhagem dos chimpanzés: todas as espécies, extintas ou não, que estão do nosso lado do garfo, de Sahelanthropus a Homo sapiens. Livros e provas mais antigos usam “hominídeo” com o sentido que hoje se dá a “hominínio” (um item do PAS 1 de 2019 fala em “primeiros hominídeos” surgidos na África, no sentido de linhagem humana). Em prova, leia a palavra pelo contexto: se o texto trata da nossa linhagem, “hominídeo” significa o que a página chama de hominínio.
A proximidade com os chimpanzés aparece no genoma. Nos trechos que se alinham diretamente, as sequências de DNA de humanos e chimpanzés são idênticas em cerca de 98 a 99 %; contando inserções e deleções, a diferença cresce, mas continua pequena para duas espécies separadas há milhões de anos. A diferença mais visível está no número de cromossomos: 46 em humanos, 48 nos demais grandes primatas. Dois cromossomos do ancestral se fundiram no nosso cromossomo 2, e a marca da fusão (restos de telômeros no meio do cromossomo e um segundo centrômero inativo) está lá; a página de evidências da evolução detalha o caso.
"O homem veio do macaco"
A frase tem dois erros. O primeiro é de tempo: “macaco”, na frase, quer dizer uma espécie atual (chimpanzé, gorila), e espécie atual não é ancestral de espécie atual. O segundo é de forma: a frase imagina uma transformação, uma espécie que “virou” outra, quando a evolução é a divergência de populações a partir de um ancestral comum, com a maioria dos ramos extinta. A versão correta é mais longa e menos pitoresca: humanos e chimpanzés descendem de um primata africano extinto, que não era nem humano nem chimpanzé. Um item do PAS 3 de 2008 montou a escada “o chimpanzé deu origem ao Homo neandertalensis, que, por sua vez, originou o Homo sapiens” e saiu Errado; outro, de 2018, perguntou se “seria possível o surgimento de uma nova espécie do gênero Homo a partir de espécies como o gorila e o chimpanzé” e saiu Errado pelo mesmo motivo: gorila e chimpanzé são ramos já separados; uma nova espécie de Homo só poderia vir de uma população de Homo.
Andar sobre duas pernas veio milhões de anos antes do cérebro grande
Se a camiseta inverte a ordem dos parentes, ela também esconde a ordem dos acontecimentos. O que distingue a nossa linhagem desde o começo não é o cérebro, e sim o modo de andar. Os hominínios mais antigos, de 7 a 4 milhões de anos atrás, tinham cérebro do tamanho do de um chimpanzé e já mostravam sinais de bipedalismo, o deslocamento habitual sobre as duas pernas, com o tronco ereto. O cérebro só começou a crescer de modo claro a partir de 2 milhões de anos atrás. Bipedalismo primeiro, cérebro depois: essa ordem decide itens.
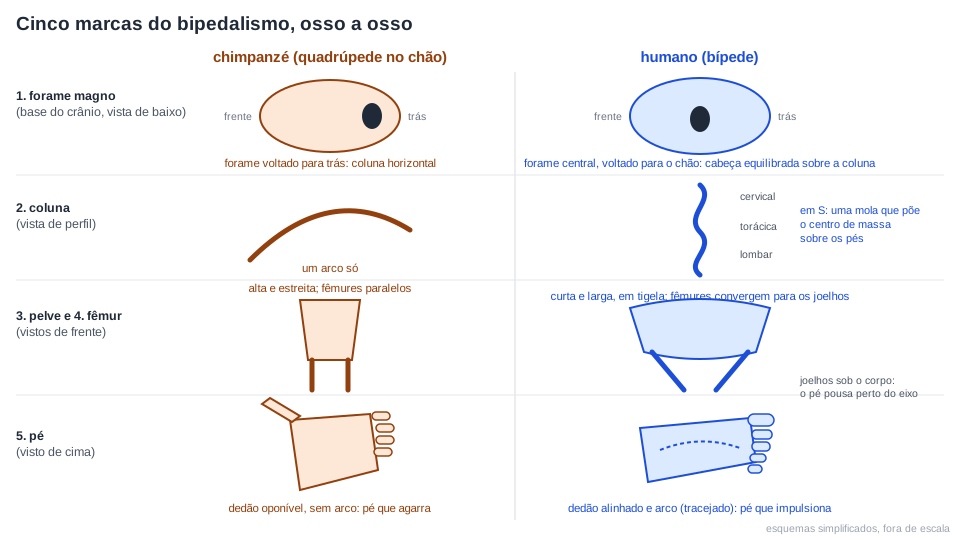
O bipedalismo deixou marcas no esqueleto, e elas permitem dizer, a partir de um osso, se o seu dono andava como nós. São cinco, e vale conhecer cada uma.
As cinco marcas do bipedalismo no esqueleto
Forame magno. É o furo na base do crânio por onde passa a medula espinhal. Em quem anda sobre quatro patas, com a coluna horizontal, ele fica voltado para trás; em quem anda ereto, com a coluna vertical e a cabeça equilibrada sobre ela, ele fica embaixo do crânio, voltado para o chão. É a marca mais usada para avaliar crânios sem o resto do esqueleto. Coluna em S. A coluna humana tem curvaturas alternadas (cervical, torácica, lombar, sacral) que funcionam como mola e trazem o centro de massa para cima dos pés; a coluna do chimpanzé é um arco único. Pelve curta e larga. A bacia humana é baixa e em forma de tigela, o que aproxima as articulações do quadril do centro de massa e dá apoio às vísceras; os músculos glúteos passam a estabilizar o corpo de lado quando só um pé está no chão. A do chimpanzé é alta e estreita. Fêmur inclinado para dentro. Os fêmures humanos descem da pelve larga em direção aos joelhos, que ficam próximos um do outro, sob o corpo (o chamado ângulo bicondilar ou valgo); assim, a cada passo, o pé pousa perto da linha central e o corpo não precisa balançar de lado. Pé com arco e dedão alinhado. O pé humano tem arco longitudinal, que amortece e devolve energia, e o hálux (o dedão) está alinhado com os outros dedos, pronto para o impulso final da passada; no chimpanzé, o hálux é oponível, como um polegar, e o pé é uma mão de agarrar. Em escala menor, os dedos das mãos encurtaram e os braços deixaram de ser mais longos que as pernas.
As marcas do bipedalismo, osso a osso. Um paleoantropólogo com um só crânio olha a posição do forame magno; com uma pelve ou um fêmur, olha a forma da bacia e o ângulo dos joelhos. Esquemas simplificados, fora de escala. Diagrama autoral.
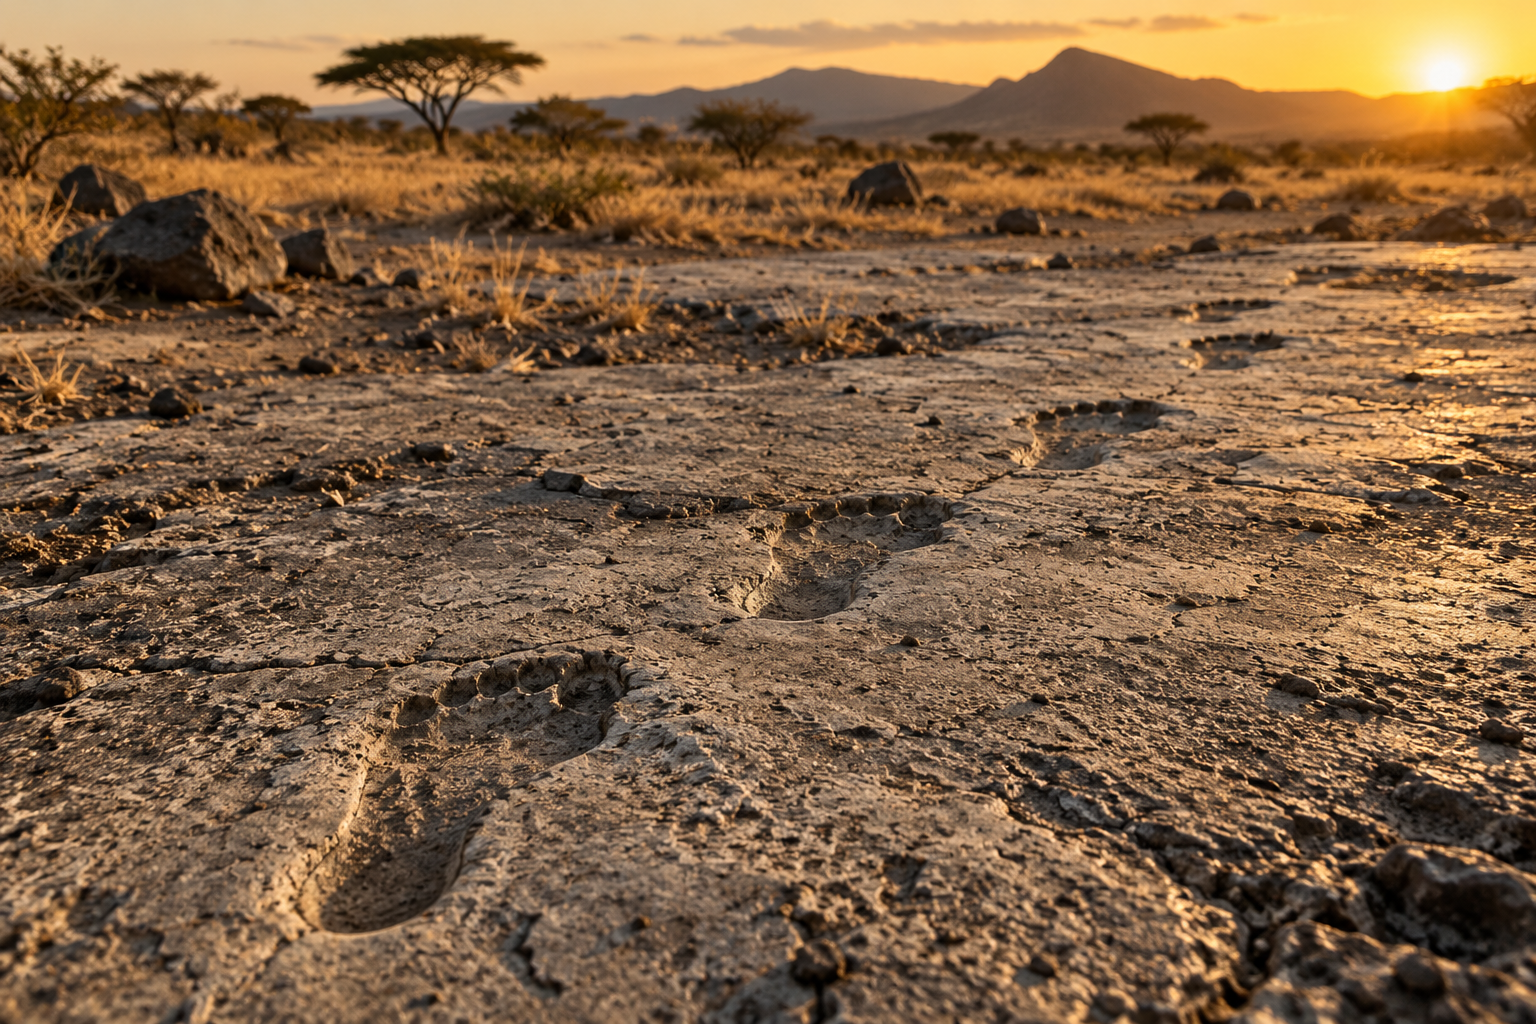
Há também uma marca que não é osso: as pegadas de Laetoli, na Tanzânia. Em 1978, a equipe de Mary Leakey encontrou, numa camada de cinza vulcânica endurecida de cerca de 3,66 milhões de anos, trilhas de pegadas deixadas por dois ou três indivíduos que caminhavam lado a lado. As pegadas têm calcanhar marcado, arco e dedão alinhado, sem a abertura do hálux de um chimpanzé. Os ossos encontrados na mesma região e idade pertencem a Australopithecus afarensis, a espécie de Lucy. Laetoli é a prova direta de que, há mais de 3,5 milhões de anos, um hominínio de cérebro pequeno já andava ereto, com um pé de quem anda e não de quem agarra. Em 2016, novas trilhas da mesma camada foram descritas, com um indivíduo bem maior que os demais.
Por que o bipedalismo foi favorecido? Esse é um dos problemas em aberto da área, e a honestidade pede que se diga isso. As hipóteses em discussão não se excluem. O custo energético: caminhar ereto, em ritmo lento, gasta menos energia por quilômetro que o deslocamento de um chimpanzé, o que importa quando a comida está dispersa. As mãos livres: carregar alimento, filhotes e, mais tarde, ferramentas. A termorregulação: um corpo ereto recebe menos sol a pino e mais vento em ambiente aberto. A visão por cima da vegetação. O cenário clássico de uma savana que se abre e força a descida das árvores foi relativizado quando se percebeu que os hominínios mais antigos viviam em ambientes de floresta e mosaico, não de campo aberto; a mudança climática em direção a ambientes mais secos e sazonais, ao longo de milhões de anos, continua sendo parte do quadro, mas como pano de fundo, não como gatilho único.
O cérebro não cresceu "porque as mãos ficaram livres"
Textos de divulgação costumam encadear: andar ereto liberou as mãos, as mãos fizeram ferramentas, as ferramentas fizeram o cérebro crescer. É uma narrativa, não um dado. O que o registro mostra é a ordem: bipedalismo claro há mais de 4 milhões de anos, primeiras ferramentas de pedra reconhecidas há cerca de 2,6 milhões, crescimento acentuado do cérebro a partir de cerca de 2 milhões. Entre a primeira e a última etapa há dois milhões de anos de hominínios bípedes com cérebro de chimpanzé. Um item que afirme que o bipedalismo possibilitou o desenvolvimento posterior de habilidades (ferramentas, fogo, comunicação) descreve uma condição prévia e pode estar correto; um que afirme que o bipedalismo causou o cérebro grande, ou que as duas coisas aconteceram juntas, inventa um nexo e uma simultaneidade que os fósseis não mostram.
Os hominínios: um arbusto com muitos galhos secos
Conhecem-se hoje mais de vinte espécies de hominínios, e o número cresce a cada década. Não é preciso decorar todas; é preciso conhecer um conjunto de referência, saber a ordem aproximada e entender que várias conviveram. A tabela abaixo reúne as espécies que aparecem em livros didáticos e em textos de prova, com datas arredondadas (as faixas seguem o Programa de Origens Humanas do Smithsonian e os artigos de descrição de cada espécie; “cerca de” está implícito em todas).
espécie
quando viveu (milhões de anos atrás)
onde
o que acrescenta
Sahelanthropus tchadensis
7 a 6
Chade
o mais antigo candidato a hominínio; crânio de 2001 com forame magno em posição sugestiva de bipedalismo; cérebro de 360 cm³
Orrorin tugenensis
6
Quênia
fêmur com traços de bipedalismo
Ardipithecus ramidus
4,4
Etiópia
esqueleto “Ardi” (descrito em 2009): bípede no chão e trepador nas árvores, com hálux ainda oponível
Australopithecus afarensis
3,9 a 2,9
Etiópia, Tanzânia, Quênia
Lucy (1974) e Laetoli; bipedalismo pleno com cérebro de 400 a 550 cm³
Australopithecus africanus
3,3 a 2,1
África do Sul
a criança de Taung (1924), primeiro australopiteco descrito
Paranthropus (aethiopicus, boisei, robustus)
2,7 a 1,2
África oriental e do Sul
hominínios “robustos”: molares enormes, crista no topo do crânio para músculos da mastigação; ramo lateral extinto
Homo habilis
2,4 a 1,4
África oriental e do Sul
cérebro de 550 a 690 cm³; associado às ferramentas Oldowan
Homo erectus
1,9 a 0,11
África, Ásia, Indonésia
proporções corporais modernas; machados Acheulenses; uso do fogo; primeiro a sair da África
Homo heidelbergensis
0,7 a 0,2
África, Europa
cérebro de 1 100 a 1 400 cm³; lanças de madeira; provável ancestral de neandertais e de H. sapiens
Homo neanderthalensis
0,4 a 0,04
Europa e Ásia ocidental
cérebro igual ou maior que o nosso; ferramentas Mousterienses; sepultamentos; cruzou com H. sapiens
denisovanos
ao menos 0,2 a 0,05
Sibéria, Tibete, sudeste da Ásia
conhecidos sobretudo por DNA (2010); cruzaram com H. sapiens
Homo floresiensis
0,1 a 0,05
ilha de Flores, Indonésia
cerca de 1 m de altura e cérebro de 420 cm³; descrito em 2004
Homo naledi
0,33 a 0,24
África do Sul
descrito em 2015 (caverna Rising Star); traços primitivos e modernos misturados, contemporâneo dos primeiros H. sapiens
Homo sapiens
0,3 até hoje
origem na África; depois, o mundo
Jebel Irhoud (Marrocos), cerca de 300 mil anos; única espécie de hominínio viva
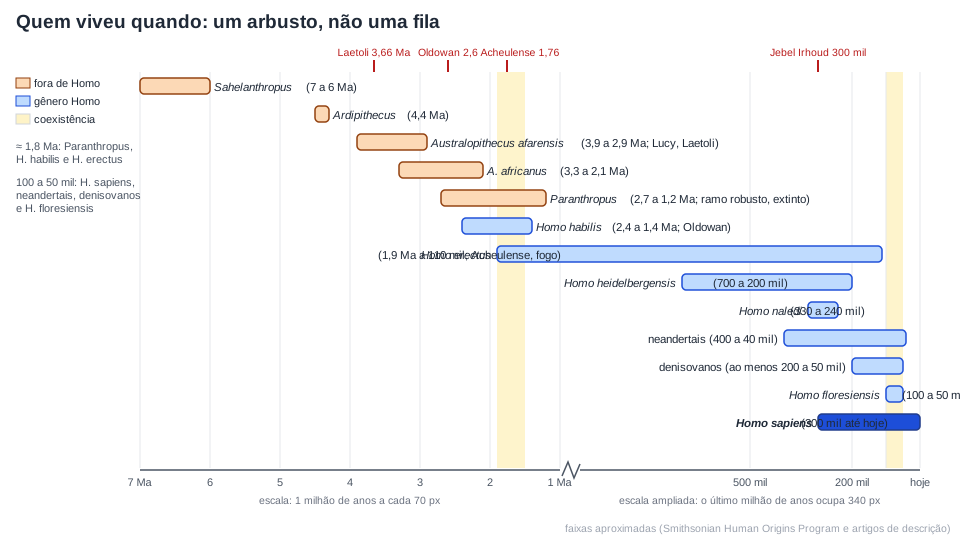
Quem viveu quando. O ponto central do gráfico não são as datas, e sim as sobreposições: em dois momentos da história, pelo menos quatro espécies de hominínios habitavam a Terra ao mesmo tempo. Faixas aproximadas. Diagrama autoral.
Três leituras do gráfico valem mais que qualquer data decorada.
Coexistência. Há cerca de 1,8 milhão de anos, Paranthropus boisei, Homo habilis e Homo erectus viviam na África oriental, às vezes nos mesmos vales. Entre 100 mil e 40 mil anos atrás, Homo sapiens, neandertais, denisovanos e Homo floresiensis viviam ao mesmo tempo em partes diferentes do mundo, e três deles se encontraram. Uma fila de silhuetas não consegue representar isso; um arbusto consegue.
Ramos sem descendentes.Paranthropus é o exemplo mais claro: um grupo que investiu em mastigação pesada de alimentos duros, prosperou por mais de um milhão de anos e desapareceu sem deixar descendentes. Neandertais e denisovanos deixaram um pouco de DNA em nós, mas também se extinguiram como espécies. A maior parte dos galhos da árvore secou.
Mosaico de traços. As espécies não “se completam” numa direção. Homo naledi tinha mãos e pés parecidos com os nossos e cérebro de 500 cm³, e viveu quando Homo sapiens já existia. Homo floresiensis era menor que qualquer humano atual e fabricava ferramentas. Ardipithecus andava ereto no chão e agarrava galhos com o dedão do pé. Traços evoluem em ritmos diferentes, em combinações que nenhuma escada prevê.
Lucy, a menina de Hadar
Em novembro de 1974, Donald Johanson e Tom Gray encontraram em Hadar, na Etiópia, centenas de fragmentos de um mesmo esqueleto, cerca de 40 % de um indivíduo de Australopithecus afarensis com 3,2 milhões de anos. Era uma fêmea adulta de pouco mais de um metro, com cérebro do tamanho do de um chimpanzé, e com pelve e fêmur de quem andava ereto. O apelido veio da música Lucy in the Sky with Diamonds, dos Beatles, que tocava no acampamento naquela noite. Na Etiópia ela é chamada Dinkinesh, “você é maravilhosa”, em amárico. Lucy fixou, em um esqueleto só, a tese de que o bipedalismo precedeu o cérebro grande.
Um cérebro caro: encefalização e o que a sustentou
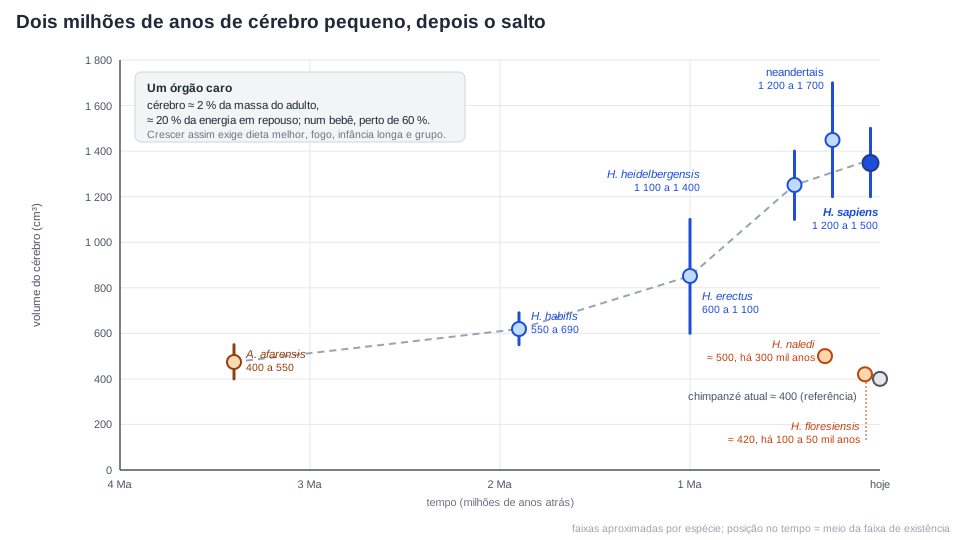
O cérebro humano adulto tem cerca de 1 300 a 1 400 cm³ de volume, três vezes o de um chimpanzé. O crescimento não foi gradual nem uniforme: ficou em torno de 400 a 550 cm³ nos australopitecos, passou a 550 a 690 em Homo habilis, variou de 600 a mais de 1 000 em Homo erectus ao longo de sua longa existência, e chegou aos valores atuais em neandertais e Homo sapiens. Chama-se encefalização esse aumento do cérebro em relação ao tamanho do corpo. Ele tem um preço que explica muito da biologia humana.
O cérebro é cerca de 2 % da massa de um adulto e consome em torno de 20 % da energia em repouso. Num bebê, a fração chega perto de 60 %. Um órgão assim só pode crescer se outra coisa paga a conta. Quatro respostas, não excludentes, estão em discussão.
Dieta e intestino. A hipótese do tecido caro (Aiello e Wheeler, 1995) observa que humanos têm intestino menor que o esperado para um primata do nosso tamanho: uma dieta de maior qualidade, com mais carne, tutano e tubérculos, permitiria um intestino menor e liberaria energia para o cérebro. Fogo e cozimento. Cozinhar amolece fibras, desnatura proteínas, torna o amido digerível e mata parasitas; a comida cozida rende mais calorias por hora de mastigação. Richard Wrangham propôs que o controle do fogo, atribuído a Homo erectus, teria sido decisivo; as evidências mais antigas aceitas de fogo controlado têm cerca de 1 milhão de anos (caverna de Wonderwerk, África do Sul), e o uso habitual é claro a partir de 400 mil anos. Infância longa e cuidado compartilhado. Um bebê humano nasce com o cérebro em cerca de um quarto do volume adulto e leva mais de uma década para amadurecer; esse período exige alimento e proteção de adultos, e o cuidado dividido entre mãe, pai, avós e grupo (a hipótese da avó) é uma marca humana. Vida social. Grupos maiores exigem lembrar quem é quem, quem deve o quê a quem, quem é aliado; a hipótese do cérebro social associa o tamanho do neocórtex, nos primatas, ao tamanho típico do grupo.
O dilema do parto
A pelve curta e larga do bipedalismo estreitou o canal de parto; o cérebro grande alargou a cabeça do bebê. O resultado é o parto humano, mais demorado e arriscado que o dos demais primatas, com a cabeça do bebê girando para passar pela bacia, e um recém-nascido que vem ao mundo com o cérebro ainda muito incompleto, justamente para caber. É um compromisso evolutivo: duas pressões em sentidos opostos, resolvidas por um meio-termo que não é ótimo para nenhuma delas. Nenhum projeto de engenharia escolheria essa solução; uma história de ajustes sucessivos, sim.
O cérebro ficou do tamanho do de um chimpanzé por dois milhões de anos de bipedalismo e depois triplicou. Os pontos fora da curva (*H. floresiensis*, *H. naledi*) mostram que o aumento não foi uma lei: linhagens com cérebro pequeno viveram até bem tarde. Faixas aproximadas. Diagrama autoral.
Pedra lascada: Oldowan, Acheulense e o que vem depois
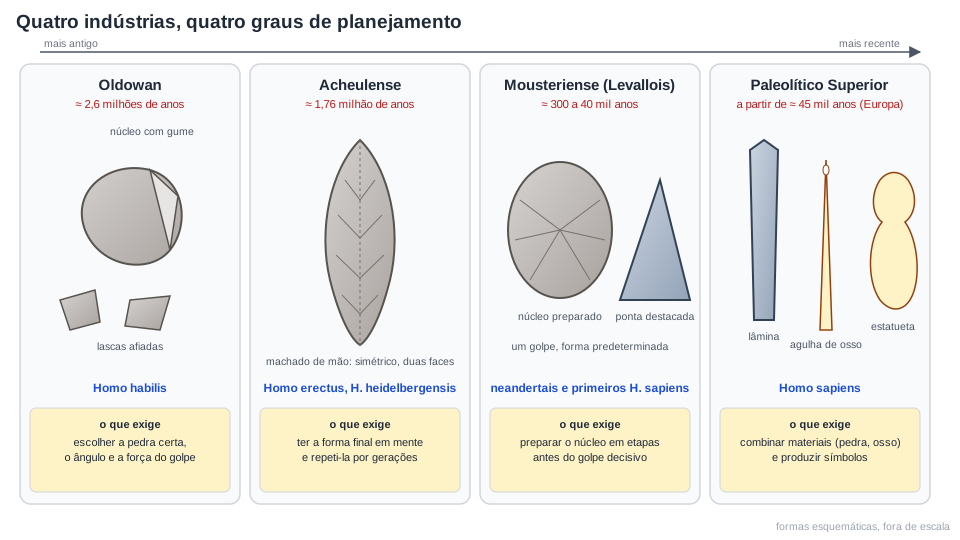
Ferramentas são o registro mais abundante da nossa linhagem, porque pedra lascada não apodrece. Elas se organizam em indústrias líticas, conjuntos de técnicas que se repetem no tempo e no espaço.
Oldowan (de Olduvai, na Tanzânia): a indústria mais antiga reconhecida sem controvérsia, de cerca de 2,6 milhões de anos (sítios de Gona, Etiópia). Consiste em bater um seixo com outro para obter lascas de gume afiado e núcleos com bordas cortantes. Simples, mas já exige escolher a pedra certa, o ângulo certo e a força certa. Está associada a Homo habilis e, possivelmente, a australopitecos tardios. Em 2015, ferramentas ainda mais antigas, de 3,3 milhões de anos, foram descritas em Lomekwi, no Quênia; a atribuição e a interpretação seguem em debate.
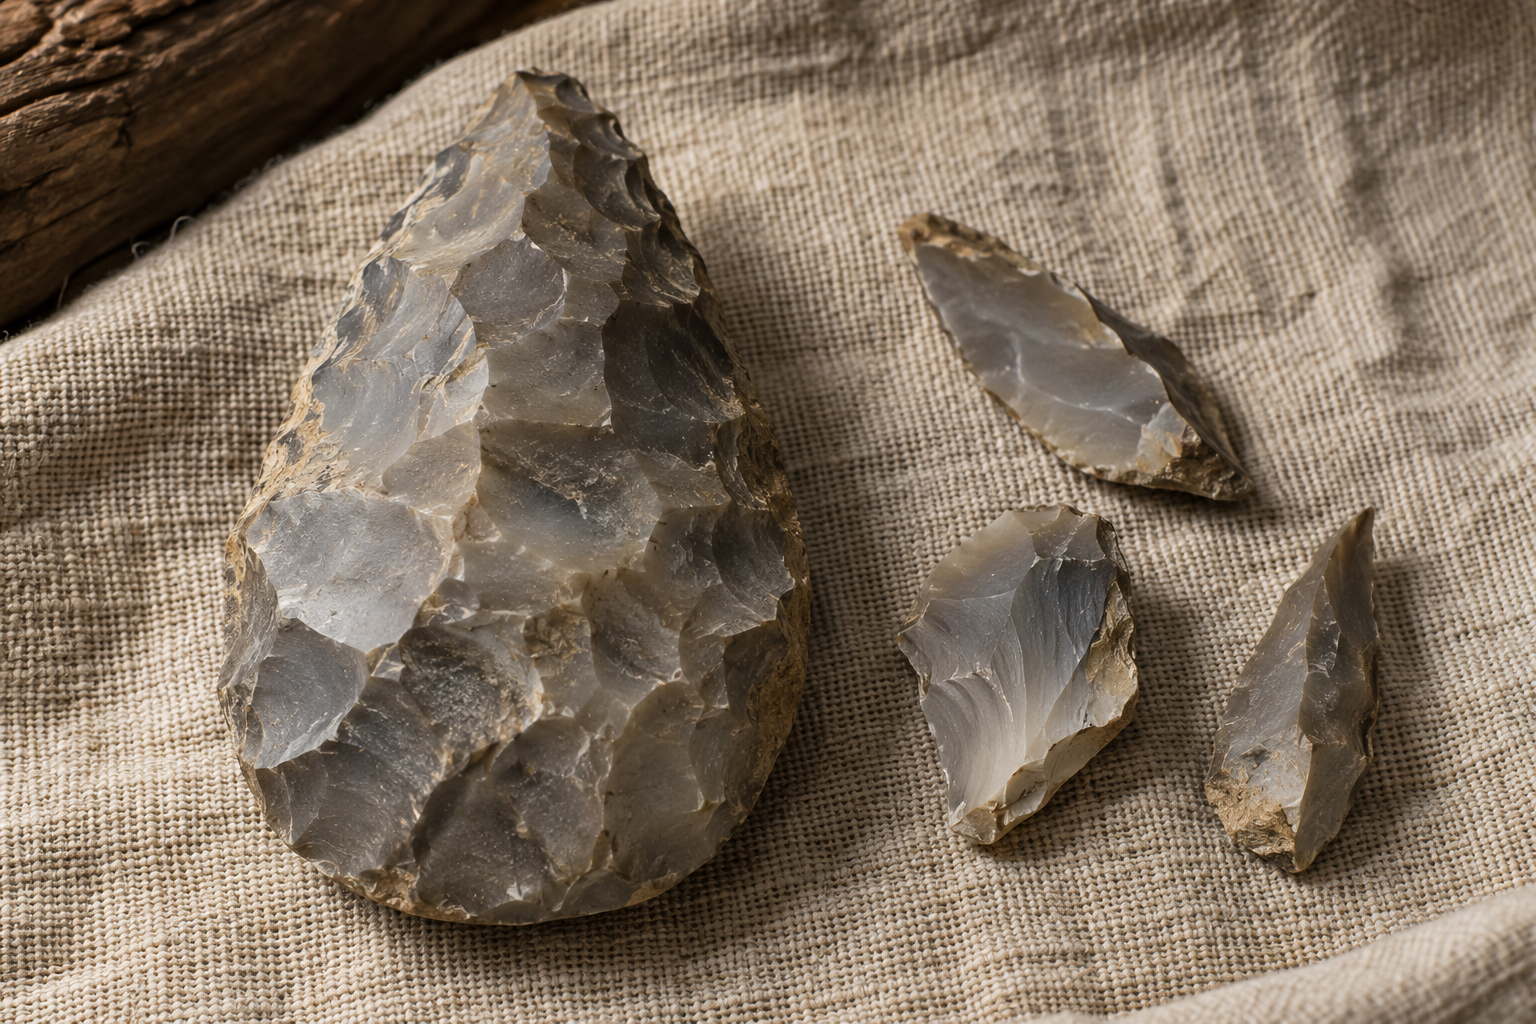
Acheulense (de Saint-Acheul, na França): aparece há cerca de 1,76 milhão de anos na África oriental e dura mais de um milhão de anos, associada a Homo erectus e a Homo heidelbergensis. A peça típica é o machado de mão (biface): um núcleo trabalhado nas duas faces até ganhar forma simétrica, em gota ou amêndoa. A simetria é a novidade: quem faz um biface tem na cabeça a forma final antes de começar, e repete essa forma por centenas de milhares de anos e milhares de quilômetros. É uma tradição transmitida, isto é, cultura.
Mousteriense (de Le Moustier, França) e a técnica Levallois: associadas aos neandertais e aos primeiros Homo sapiens, entre cerca de 300 mil e 40 mil anos atrás. O núcleo é preparado com cuidado para que, com um só golpe, se destaque uma lasca de forma predeterminada (ponta, raspador). Exige planejamento em etapas.
Paleolítico Superior (a partir de cerca de 45 mil anos na Europa, antes na África): lâminas longas e finas, ferramentas de osso e chifre (agulhas, arpões), propulsores, adornos, estatuetas e pinturas em cavernas. A diversidade regional e a mudança rápida de estilos são a marca de Homo sapiens, embora neandertais também tenham produzido adornos e pigmentos.
Quatro indústrias, quatro graus de planejamento. A pedra não registra pensamento, mas registra o que foi preciso prever para fazê-la. Formas esquemáticas, fora de escala. Diagrama autoral.
Exemplo resolvido: ordenar e atribuir. Um texto de divulgação descreve três achados: (1) um machado de mão simétrico, trabalhado nas duas faces, encontrado em camadas de 1,2 milhão de anos no Quênia; (2) lascas simples e um seixo com bordas cortantes em camadas de 2,5 milhões de anos na Etiópia; (3) uma ponta triangular destacada de um núcleo preparado, em camada de 60 mil anos na França. Ordene os achados do mais antigo ao mais recente, nomeie a indústria e indique a espécie mais provavelmente associada a cada um.
Resolução. Pela idade: (2), (1), (3). O achado (2) tem a assinatura Oldowan (lascas e núcleo, sem forma predeterminada), e a idade de 2,5 milhões de anos cai na janela de Homo habilis (2,4 a 1,4 milhão) e dos australopitecos tardios; a espécie mais provável é Homo habilis, com a ressalva de que a atribuição por idade e lugar é uma inferência, não um fato, a menos que haja ossos associados. O achado (1) é um biface Acheulense; a 1,2 milhão de anos na África, a espécie associada é Homo erectus. O achado (3) é uma ponta Levallois, da indústria Mousteriense; a 60 mil anos na França, antes da chegada de Homo sapiens à Europa ocidental (por volta de 45 a 40 mil anos), a espécie é o neandertal.
Conferência. A ordem das indústrias coincide com a ordem de complexidade do planejamento (lascar, dar forma, preparar o núcleo), e as três datas estão dentro das faixas da tabela de espécies. Se o achado (3) estivesse em camadas de 30 mil anos, a atribuição mudaria: o neandertal já teria desaparecido, e a ponta seria de Homo sapiens ou mereceria dúvida.
Homo sapiens: nasceu na África e se espalhou pelo mundo
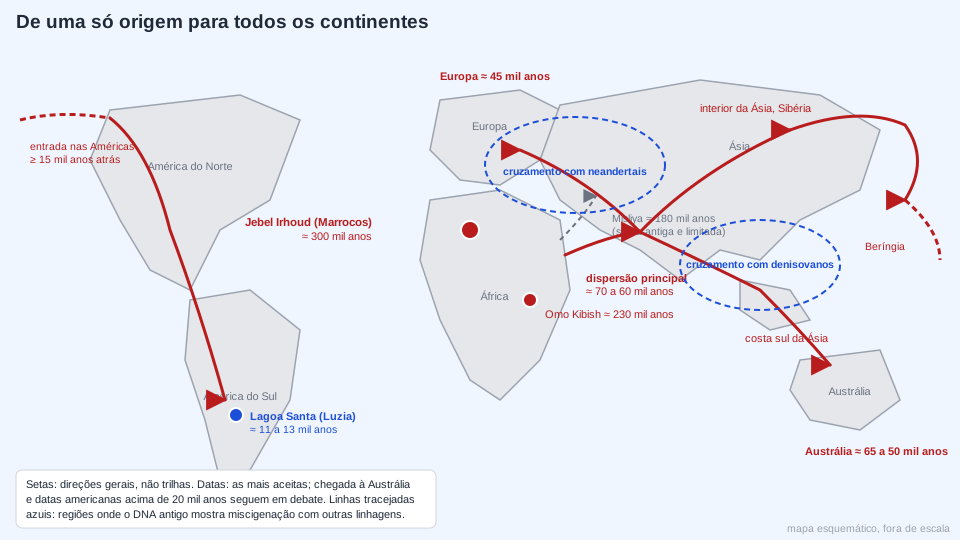
A espécie humana atual tem origem africana, e a afirmação se apoia em duas linhas independentes. A primeira são os fósseis. Os restos mais antigos atribuídos a Homo sapiens vêm de Jebel Irhoud, no Marrocos, redatados em 2017 em cerca de 300 mil anos (a estimativa publicada é de 315 mil, com margem de 34 mil para cada lado); seguem-se Omo Kibish, na Etiópia, com cerca de 230 mil anos, e Herto, também na Etiópia, com 160 mil. Fora da África, os fósseis de Homo sapiens são mais recentes: Misliya (Israel), com cerca de 180 mil anos, marca uma saída antiga e limitada; os da Austrália têm pelo menos 50 mil anos; os da Europa, cerca de 45 mil; os das Américas, menos de 25 mil. A segunda linha é o DNA das populações atuais. A diversidade genética humana é maior na África do que em qualquer outro continente, e todas as linhagens não africanas são um subconjunto da variação africana. É o padrão esperado quando uma população pequena sai de uma população grande e carrega só parte dos alelos. O DNA mitocondrial, herdado só pela linha materna, converge para uma ancestral africana que viveu há cerca de 150 a 200 mil anos (a chamada “Eva mitocondrial”, que não foi a única mulher da época, só aquela cuja linhagem materna não se interrompeu).
A dispersão principal que levou a espécie aos outros continentes começou há cerca de 70 a 60 mil anos, pelo nordeste da África, em direção ao Oriente Médio e à Ásia. Daí, grupos seguiram pela costa sul da Ásia até o sudeste asiático e a Austrália (chegada entre 65 e 50 mil anos atrás, a data mais antiga em debate), pelo interior da Ásia até a Sibéria, e para a Europa há cerca de 45 mil anos. As Américas foram o último grande território ocupado, a partir do nordeste da Ásia; a seção sobre o Brasil trata das rotas e datas.
Rotas e datas aproximadas da dispersão de *Homo sapiens*. As setas são direções gerais, não trilhas; as datas são as mais aceitas, com as controvérsias indicadas no texto. Diagrama autoral.
Durante décadas duas hipóteses competiram. O modelo da origem africana recente (às vezes chamado “Out of Africa”) dizia que Homo sapiens surgiu na África e substituiu, sem cruzamento, as outras espécies de Homo que encontrou. O modelo multirregional dizia que as populações de Homo erectus espalhadas pelo mundo teriam evoluído em paralelo até a forma moderna, com fluxo gênico entre elas. O DNA antigo decidiu a disputa de um modo que nenhum dos lados previa por completo: a origem é africana e recente, mas houve miscigenação com as espécies encontradas no caminho.
O que o DNA antigo mostrou
O primeiro DNA de neandertal lido, em 1997, foi mitocondrial, e não por acaso: cada célula tem só duas cópias de cada trecho do DNA nuclear, mas centenas a milhares de cópias do DNA mitocondrial, o que multiplica a chance de algum fragmento sobreviver em ossos de dezenas de milhares de anos (o PAS 3 de 2008 cobrou exatamente essa razão). Em 2010, a equipe de Svante Pääbo, no Instituto Max Planck, publicou o primeiro rascunho do genoma de um neandertal, lido a partir de ossos de dezenas de milhares de anos. A comparação com genomas humanos atuais mostrou que populações não africanas carregam cerca de 1 a 2 % de DNA de origem neandertal; populações africanas sem ancestralidade recente de fora do continente carregam muito pouco. Logo, houve cruzamento entre Homo sapiens e neandertais depois da saída da África, provavelmente no Oriente Médio e na Europa, entre 60 e 40 mil anos atrás. No mesmo ano, o DNA de um osso de dedo da caverna de Denisova, na Sibéria, revelou um grupo até então desconhecido, os denisovanos, cujo DNA sobrevive em populações da Melanésia (até cerca de 4 a 6 %) e, em menor grau, em outras da Ásia e da Oceania. Em 2018, um fragmento de osso da mesma caverna revelou uma menina com mãe neandertal e pai denisovano. O trabalho de Pääbo recebeu o Nobel de Fisiologia ou Medicina de 2022. Duas consequências para a prova: neandertais e denisovanos foram populações próximas o bastante de nós para gerar filhos férteis (o que reabre a discussão sobre chamá-los de espécies distintas, e explica por que muitos autores preferem “linhagens” ou “populações”); e a espécie atual é uma mistura, não uma linhagem pura.
Uma herança desse encontro tem efeito visível hoje. Uma variante do gene EPAS1, que ajuda os tibetanos a viver acima de 4 000 metros com menos hemoglobina do que um habitante da planície produziria ali, veio dos denisovanos. Outras variantes herdadas de neandertais estão ligadas a imunidade, pele e cabelo. A miscigenação não foi um detalhe: foi uma fonte de variação pronta para ambientes novos.
Migração não cria raças
O PAS 3 de 2018 propôs que a migração de Homo sapiens, que surgiu na África, “acarretou o surgimento de raças humanas”, e o item saiu Errado. A dispersão produziu populações com frequências alélicas diferentes e algumas adaptações locais (cor da pele, altitude, dieta), mas não produziu subdivisões biológicas: a espécie é recente, as populações continuaram trocando genes, e a variação dentro de cada uma é maior que a diferença média entre elas. A seção sobre raça retoma o argumento com números.
Falar é da espécie; falar português é da cultura
Entre todos os traços humanos, a linguagem é o que mais se parece com um salto, e o que mais exige cuidado para não virar mito. Convém separar duas coisas que a palavra “linguagem” mistura. A capacidade de linguagem é um traço biológico de Homo sapiens: toda criança saudável, exposta a qualquer língua, falada ou de sinais, a adquire em poucos anos, sem instrução formal, em ordem e calendário parecidos em qualquer cultura, e nenhum outro animal faz o mesmo nem com treino intensivo. Uma língua particular (o português, o guarani ou a libras) pertence à cultura: vem do grupo em que a criança cresce, muda em décadas e desaparece se ninguém a transmitir. Em famílias de imigrantes, a criança pequena adquire a língua do novo país em um ou dois anos de convívio, sem aula, enquanto os pais, com a mesma exposição, conservam sotaque e erros pelo resto da vida: a capacidade estava na criança, e a língua veio do ambiente.
A capacidade tem endereço no corpo e no genoma, e a evolução a construiu em partes.
No cérebro. Áreas do hemisfério esquerdo, como a área de Broca (produção da fala, descrita em 1861) e a área de Wernicke (compreensão), são especializadas em linguagem; lesões nelas produzem afasias específicas. Os moldes internos de crânios fósseis sugerem assimetrias parecidas em Homo desde cedo, mas um molde não diz o que o cérebro fazia.
No trato vocal. A laringe humana fica baixa no pescoço, e a língua é curta e arredondada, o que amplia o espaço de ressonância acima das cordas vocais e permite produzir muitos sons distintos. O preço é o risco de engasgar: em outros mamíferos, a laringe alta separa melhor as vias de ar e de alimento. O osso hioide, que sustenta a língua e a laringe, é um dos poucos ossos ligados à fala que fossilizam; o hioide de um neandertal de Kebara (Israel, cerca de 60 mil anos) é quase idêntico ao humano. O controle fino da respiração, necessário para falar longas frases numa expiração, deixa marcas no canal da medula na região torácica, mais largo em neandertais e humanos modernos do que em Homo erectus.
No genoma. O gene FOXP2 ficou conhecido em 2001, quando se descobriu que uma mutação nele, numa família inglesa, causava dificuldades graves de fala e gramática. A versão humana do gene difere da do chimpanzé em dois aminoácidos, e os neandertais compartilhavam essas duas substituições. Isso não faz de FOXP2 “o gene da linguagem”: ele regula outros genes no desenvolvimento do cérebro e também existe em camundongos e aves canoras; é um gene necessário à linguagem, entre muitos, não um gene suficiente.
Na cognição. Falar pressupõe representar o que o outro sabe e não sabe, a chamada teoria da mente; pressupõe referir-se ao que não está presente, o deslocamento (falar da caça de ontem e da chuva de amanhã); e pressupõe combinar unidades em frases novas sem limite, a sintaxe. Chimpanzés formam conceitos, usam ferramentas e aprendem dezenas de sinais, mas não combinam sinais em frases novas e têm teoria da mente limitada. A diferença entre nós e eles não está só no aparelho de produzir sons, e sim também na cognição.
Inato e aprendido não são alternativas
Dois erros simétricos aparecem em itens. O primeiro absolutiza o aprendizado: “a linguagem humana, por ser aprendida, não teria base biológica”. Errado: a capacidade é da espécie, com áreas cerebrais, anatomia e genes dedicados. O segundo absolutiza a biologia: “como a linguagem é inata, o português é transmitido geneticamente”. Errado: nenhuma língua particular está no genoma; está no grupo. Um item do PAS 1 de 2010, sobre um texto de Steven Pinker e Ray Jackendoff, propôs que a incapacidade dos chimpanzés de adquirir plenamente uma língua humana não se devia à ausência de competências cognitivas, “mas à sua incapacidade de produzir e interpretar as sequências de sons e gestos” dos humanos; saiu Errado, porque o texto atribuía a diferença também à cognição (a teoria da mente, a noção de essência, a moralidade). No mesmo bloco, o item que dizia ser esperado que cérebros humanos fossem mais “desenvolvidos” que os dos demais primatas, dado que as capacidades cognitivas são propriedades dos cérebros, saiu Certo.
Quando a fala surgiu? Não há data, e qualquer número preciso é invenção. O que se pode dizer: a anatomia necessária estava presente em neandertais e em Homo sapiens há mais de 100 mil anos; a versão humana de FOXP2 é anterior à separação entre as duas linhagens, portanto tem mais de 500 mil anos; o comportamento simbólico complexo (adornos, pigmentos, arte) se torna comum a partir de 100 a 50 mil anos atrás. Hipóteses sobre a função inicial (cooperar na caça e na coleta, avisar do perigo, coordenar o grupo, cuidar das crianças, cantar antes de falar) são plausíveis e não testadas diretamente. Um texto de divulgação da BBC impresso na prova do PAS 1 de 2023 reunia várias delas, com a linguista Maggie Tallerman ligando a fala à cooperação para explorar carcaças com segurança; os itens cobraram a leitura do texto (hipóteses, perspectiva evolucionista, deslocamento), não uma resposta definitiva à pergunta.
Cultura, domesticação e a evolução que não parou
A partir do momento em que a linhagem humana passou a transmitir conhecimento por aprendizado, a cultura virou uma força sobre a biologia. A coevolução gene-cultura descreve a via de mão dupla: a cultura muda o ambiente em que a seleção natural age, e a seleção muda os corpos que fazem cultura. Três exemplos, todos dos últimos 10 a 15 mil anos, mostram que a evolução humana não terminou no Paleolítico.
Leite e lactase. Todos os bebês humanos produzem lactase, a enzima que digere a lactose do leite. Na maioria dos mamíferos, e na maioria dos humanos adultos do planeta, a produção cai depois do desmame. Em populações que criaram gado leiteiro (Europa do norte, partes da África oriental e do Oriente Médio), variantes genéticas que mantêm a lactase ativa na vida adulta se tornaram comuns em poucos milhares de anos, por seleção natural: quem digeria leite tinha uma fonte extra de calorias, água e cálcio. A variante europeia mais estudada se espalhou nos últimos 10 mil anos; as africanas são diferentes e surgiram de modo independente, um caso de convergência. Hoje, cerca de um terço dos adultos do mundo digere lactose bem; a chamada “intolerância” é a condição ancestral, não uma doença.
Altitude. Tibetanos, andinos e etíopes das terras altas vivem acima de 3 500 metros com soluções genéticas diferentes para o mesmo problema, o ar rarefeito: os tibetanos, com a variante de EPAS1 herdada dos denisovanos, mantêm hemoglobina em níveis quase normais e respiram mais; os andinos produzem mais hemoglobina; os etíopes, outras variantes. Três respostas independentes à mesma pressão, em poucos milhares de anos.
Pele, sol e vitaminas. A cor da pele depende sobretudo da quantidade e do tipo de melanina, controlada por um número relativamente pequeno de genes. Perto do equador, a radiação ultravioleta intensa degrada o folato (vitamina do complexo B essencial à gestação) e lesa o DNA; a melanina abundante protege. Longe do equador, a radiação é fraca e a pele clara permite sintetizar vitamina D em quantidade suficiente. A cor da pele é, portanto, um gradiente latitudinal moldado por seleção, e populações de latitudes semelhantes em continentes diferentes convergiram para tons parecidos por caminhos genéticos distintos. Os primeiros Homo sapiens tinham pele escura; variantes de pele clara se espalharam na Europa e na Ásia oriental nas últimas dezenas de milhares de anos, de modo independente nas duas regiões.
Domesticação é seleção artificial, e não transgenia
Quando os povos do Neolítico, há cerca de 12 a 10 mil anos, começaram a plantar trigo e arroz e a criar ovelhas e bois, passaram a escolher, geração após geração, as plantas de grão maior e as ovelhas mais mansas. É a seleção artificial, o processo que Darwin usou como analogia para a seleção natural: a variação já existia (mutações, recombinação); a mão humana só decidiu quem se reproduzia. Milho, cão, banana sem semente e o cupuaçu amazônico são produtos dela. Um organismo geneticamente modificado (OGM), ao contrário, recebe em laboratório um gene que não teria por cruzamento. O PAS 3 de 2025 cobrou exatamente essa diferença: o cupuaçu, domesticado a partir do cupuí pelos povos indígenas, não é OGM. E a domesticação mudou também os domesticadores: a persistência da lactase é filha do gado leiteiro, e variantes ligadas ao metabolismo do amido acompanharam a agricultura.
Raça não é categoria biológica em Homo sapiens
Em biologia, subdividir uma espécie em raças ou subespécies exige populações separadas, com conjuntos de características herdadas que as distingam de modo consistente. A espécie humana não atende a esses critérios, e as razões são quantitativas.
A variação está dentro, não entre. Quando se mede a variação genética humana e se pergunta quanto dela separa os grandes grupos continentais e quanto existe dentro de qualquer população, o resultado, repetido desde o trabalho de Richard Lewontin em 1972 com dezenas de marcadores e confirmado com genomas inteiros, é que cerca de 85 a 90 % da variação existe dentro de qualquer população local. Dois moradores da mesma cidade podem ser geneticamente mais distantes entre si do que um deles de alguém de outro continente. Duas pessoas quaisquer diferem em cerca de 0,1 % do genoma; a parcela desse 0,1 % que acompanha o continente de origem é pequena.
As características variam em gradientes, não em blocos. A cor da pele muda gradualmente com a latitude; o formato do cabelo, a estatura, o grupo sanguíneo e a persistência da lactase variam cada um em seu próprio mapa, e os mapas não coincidem. Não existe um conjunto de traços que separe a humanidade em grupos nítidos; qualquer corte é arbitrário e muda conforme o traço escolhido.
A espécie é jovem e sempre trocou genes. Trezentos mil anos é pouco tempo evolutivo, e a dispersão de 70 a 60 mil anos é mais recente ainda. As populações humanas nunca ficaram isoladas por tempo suficiente para divergir em subespécies; migrações e casamentos entre grupos nunca cessaram. O que a migração produziu, como a seção anterior mostrou, foram diferenças de frequência e algumas adaptações locais, não subdivisões.
Raça: inexistente na biologia, real na sociedade
Dizer que raças biológicas não existem em Homo sapiens não é dizer que o racismo não existe nem que a palavra “raça” seja inútil nas ciências sociais. Raça é uma categoria social e histórica: pessoas são classificadas, tratadas e discriminadas por aparência e origem, e isso tem efeitos reais em renda, saúde, escolaridade e violência. O IBGE pergunta cor ou raça no censo porque mede uma realidade social, não uma realidade genética. A biologia desautoriza qualquer hierarquia natural entre grupos humanos; a sociologia e a história explicam como a hierarquia foi construída. Em prova, a palavra que decide é “biológica”: “com base na classificação biológica, é possível reconhecer as diversas raças” (PAS 3, 2008, sobre a tela Operários, de Tarsila do Amaral) saiu Errado. Um item que associe cor da pele a um alelo específico também cai: o PAS 3 de 2022 propôs que seria “necessariamente escura” a pele de quem carrega o alelo da anemia falciforme, e saiu Errado, porque o gene da hemoglobina e os genes da pigmentação são independentes e séculos de miscigenação espalharam o alelo por pessoas de todas as cores.
As Américas e o Brasil antigo: Beríngia, Lagoa Santa, Luzia e sambaquis
As Américas foram o último grande território ocupado por Homo sapiens. A rota mais aceita parte do nordeste da Ásia: durante a última glaciação, com o nível do mar mais de 100 metros abaixo do atual, a plataforma entre a Sibéria e o Alasca ficou exposta, formando a Beríngia, uma faixa de terra firme por onde passaram animais e pessoas. A entrada no continente ocorreu há pelo menos 15 mil anos; se por um corredor livre de gelo no interior ou pela costa do Pacífico, em barcos, é debate em curso, e a maioria dos pesquisadores hoje favorece a costa. Sítios bem datados como Monte Verde, no Chile (cerca de 14 500 anos), mostram que a ocupação chegou ao extremo sul em poucos milênios. Datas mais antigas, como as pegadas de White Sands, nos Estados Unidos (23 a 21 mil anos, publicadas em 2021), e as de sítios da Serra da Capivara, no Piauí (mais de 20 mil anos, defendidas por Niède Guidon), são discutidas e, em parte, contestadas; a hipótese de uma travessia direta da África pelo Atlântico, mencionada num texto de prova de 2019, não tem apoio genético: o DNA dos povos indígenas das Américas aponta para o nordeste da Ásia. Em 2019, o PAS 1 propôs que a forma anatomicamente moderna da espécie teria surgido na Europa e dali partido para a América, e o item saiu Errado: a origem é africana e a rota para a América passa pela Ásia.
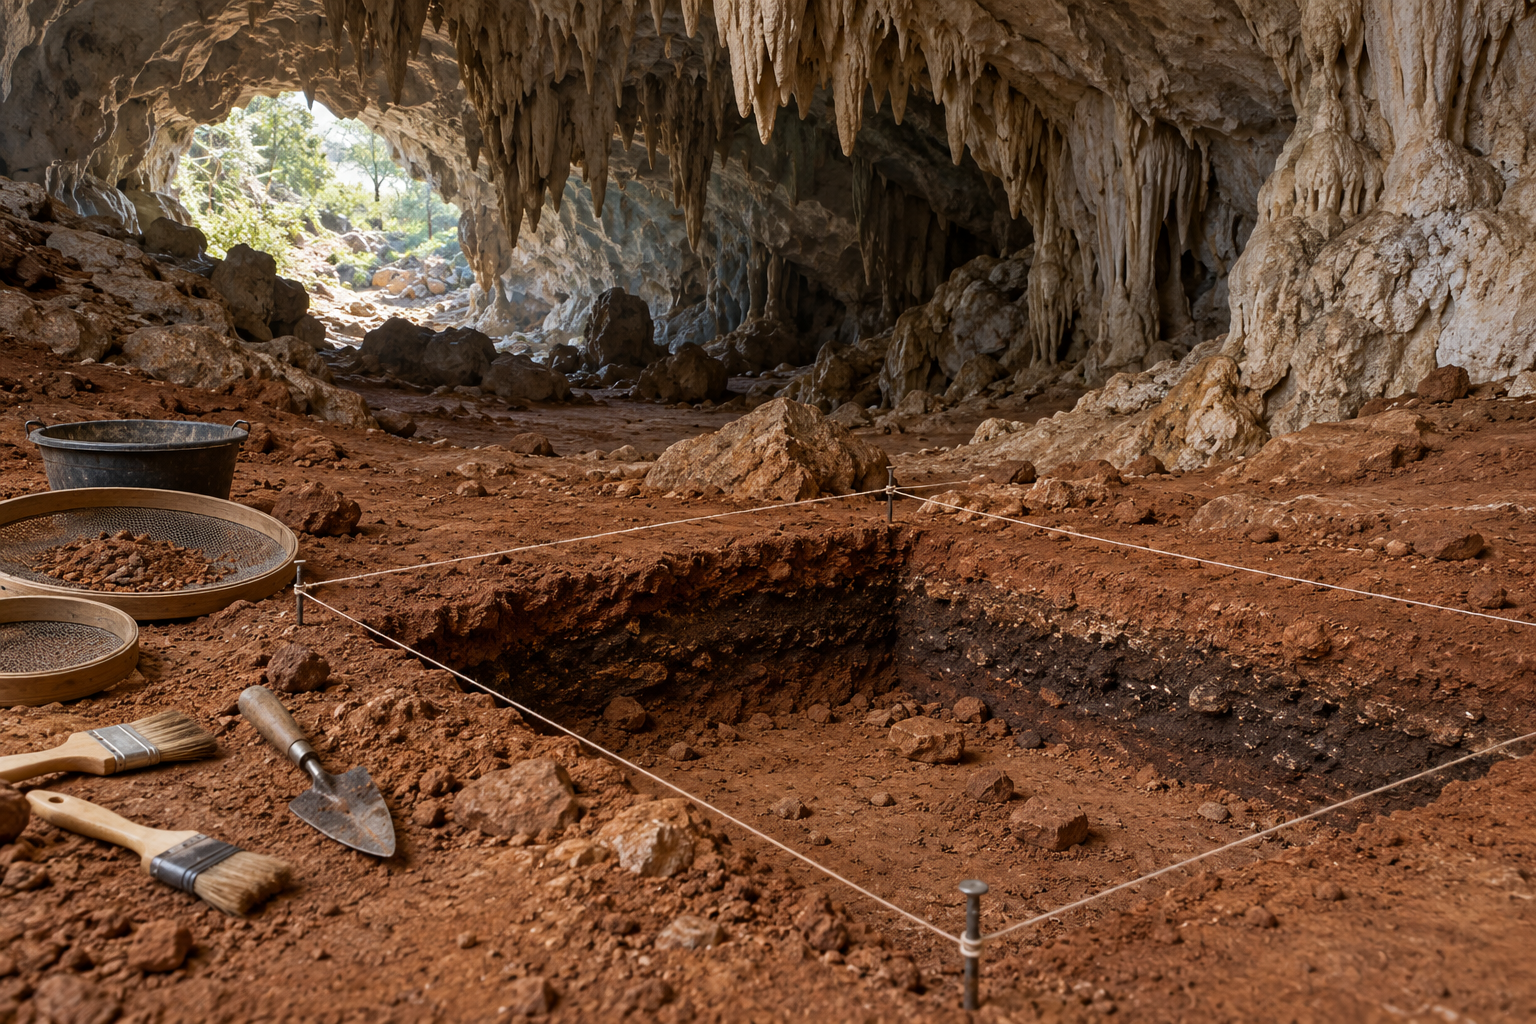
No Brasil, a região de Lagoa Santa, em Minas Gerais, é o sítio clássico. Nas grutas calcárias de lá, o naturalista dinamarquês Peter Lund escavou, entre 1835 e 1844, ossos humanos misturados a ossos de animais extintos (preguiças-gigantes, tigres-dentes-de-sabre), e levantou a pergunta, ainda no século XIX, sobre a antiguidade da presença humana nas Américas. Entre 1974 e 1975, a missão franco-brasileira dirigida por Annette Laming-Emperaire encontrou, na Lapa Vermelha IV, o crânio de uma mulher jovem, apelidado Luzia, com idade estimada entre 11 e 13 mil anos (as datações mais recentes do carvão associado dão cerca de 11,5 mil), um dos restos humanos mais antigos das Américas. Nos anos 1990, o antropólogo Walter Neves observou que os crânios de Lagoa Santa têm formato diferente dos indígenas atuais (mais alongados, com face mais projetada) e propôs que representariam uma primeira onda de povoamento, distinta da que originou os povos indígenas de hoje. Em 2018, dois estudos de genomas antigos de Lagoa Santa mostraram outra coisa: aquelas pessoas pertenciam à mesma grande linhagem dos demais povos indígenas das Américas, e a diferença de formato dos crânios se explica por variação dentro de uma só população que chegou pela Beríngia. O crânio de Luzia, guardado no Museu Nacional, no Rio de Janeiro, foi atingido pelo incêndio de setembro de 2018; a maior parte dos fragmentos foi recuperada dos escombros.
Os sambaquis
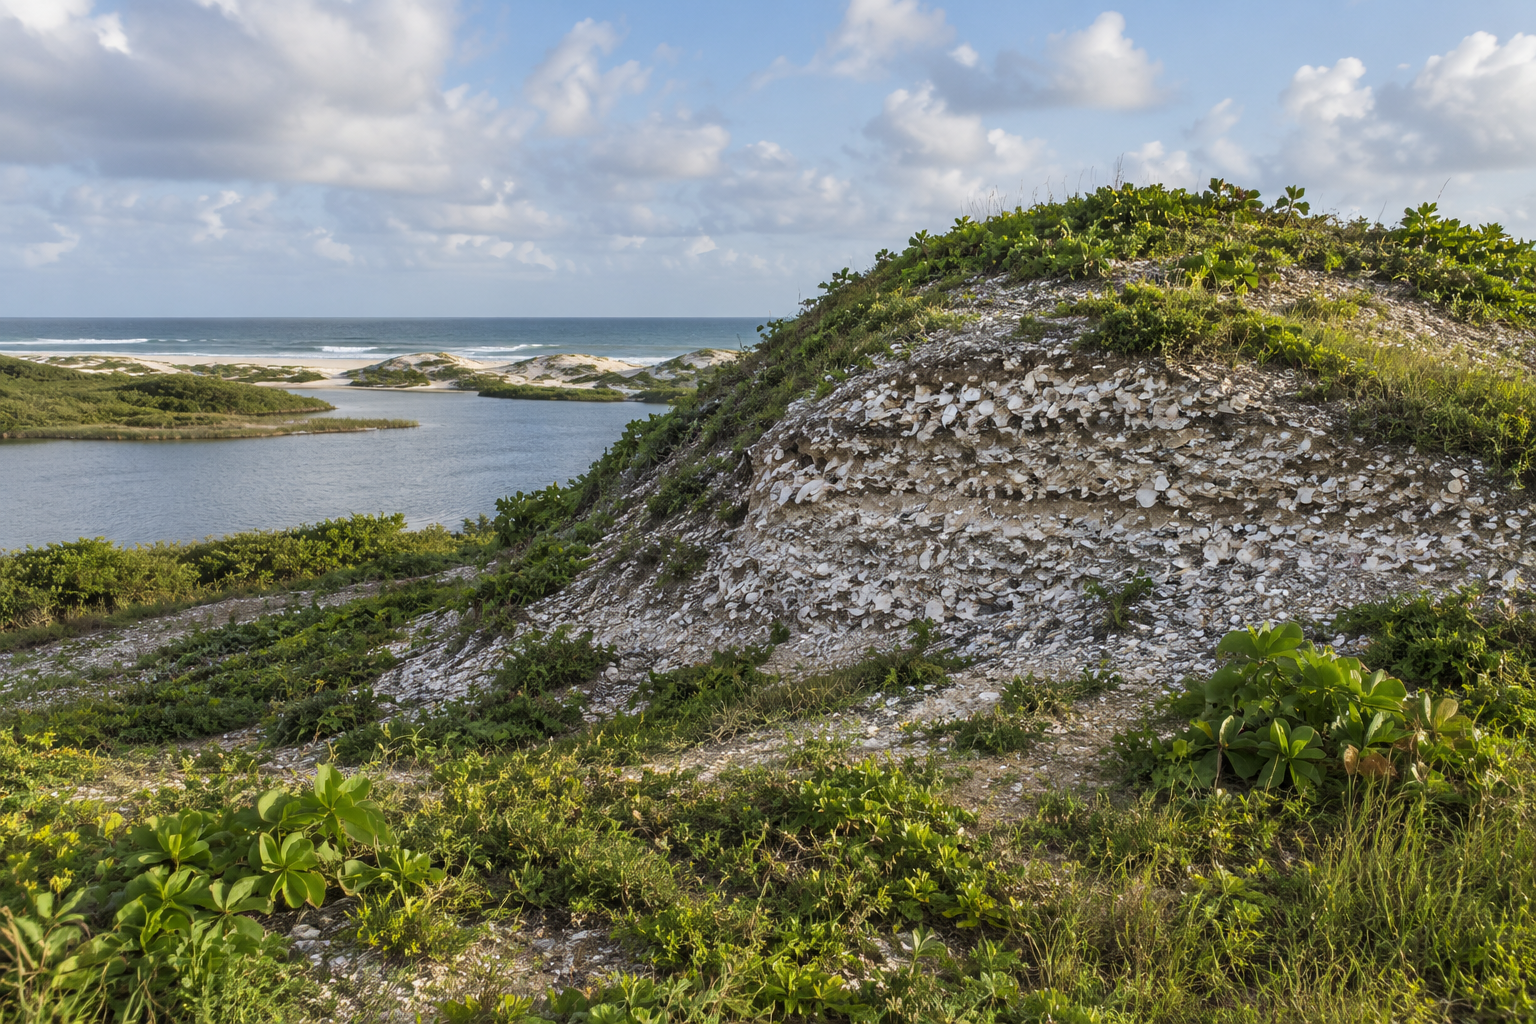
Ao longo do litoral do Brasil, do Espírito Santo ao Rio Grande do Sul, há centenas de sambaquis: montes de conchas, ossos de peixe, carvão e sepultamentos acumulados por povos pescadores-coletores entre cerca de 8 mil e mil anos atrás. Alguns chegam a 30 metros de altura, e o maior deles, em Santa Catarina, levou séculos para ser erguido. Não são lixeiras: são monumentos funerários e marcos territoriais, com esqueletos cuidadosamente dispostos e adornos. Para a biologia, os sambaquis importam porque os esqueletos preservados em meio às conchas, protegidos pela alcalinidade do cálcio, permitem estudar dieta (pelos isótopos dos ossos), saúde e DNA de populações que viveram milênios antes da chegada dos europeus. O nome vem do tupi: tamba (conchas) e ki (amontoado).
A história do povoamento e das sociedades que se seguiram, da Serra da Capivara aos povos que os portugueses encontraram, é assunto de pré-história. Aqui fica o que a biologia acrescenta: a direção (África, Ásia, Beríngia, Américas), as datas de referência (pelo menos 15 mil anos para a entrada; 11 a 13 mil para Luzia) e a lição metodológica de Lagoa Santa, onde o DNA antigo corrigiu uma hipótese construída só com a forma dos crânios.
Ler árvores, cronologias e crânios como a prova pede
Itens de evolução humana raramente pedem um nome ou uma data; pedem a leitura de uma figura ou de um texto. Três tipos se repetem.
A árvore. Numa árvore filogenética, dois ramos que saem do mesmo nó compartilham um ancestral comum, representado pelo nó; quanto mais recente o nó, mais próximo o parentesco. Nenhuma espécie do topo da árvore é ancestral de outra do topo. A ordem em que os ramos aparecem da esquerda para a direita não significa nada: pode-se girar qualquer nó sem mudar a informação, de modo que “estar à direita” não é “ser mais evoluído”. O PAS 2 de 2009 apresentou dois desenhos, a árvore de Ernst Haeckel (1874), em forma de carvalho com o “homem” num galho solitário no topo, e um cladograma moderno dos grandes primatas, e cobrou as duas leituras: que gibão, orangotango, gorila e homem têm ancestral comum (Certo) e que a árvore de Haeckel está desatualizada por se basear no postulado, superado, de que o homem é o ápice da evolução (Certo).
A cronologia. Num gráfico de barras no tempo, barras que se sobrepõem são espécies que coexistiram, e barra que termina sem continuação é extinção. Uma espécie cuja barra começa depois do fim da barra de outra não pode ter se cruzado com ela. A escala costuma estar em milhões de anos de um lado e em milhares do outro; conferir a unidade evita o erro de colocar a espécie humana no Cretáceo, como fez um item do PAS 3 de 2011 (o Cretáceo terminou há 66 milhões de anos; Homo sapiens tem cerca de 300 mil; e o Cretáceo é período, não era).
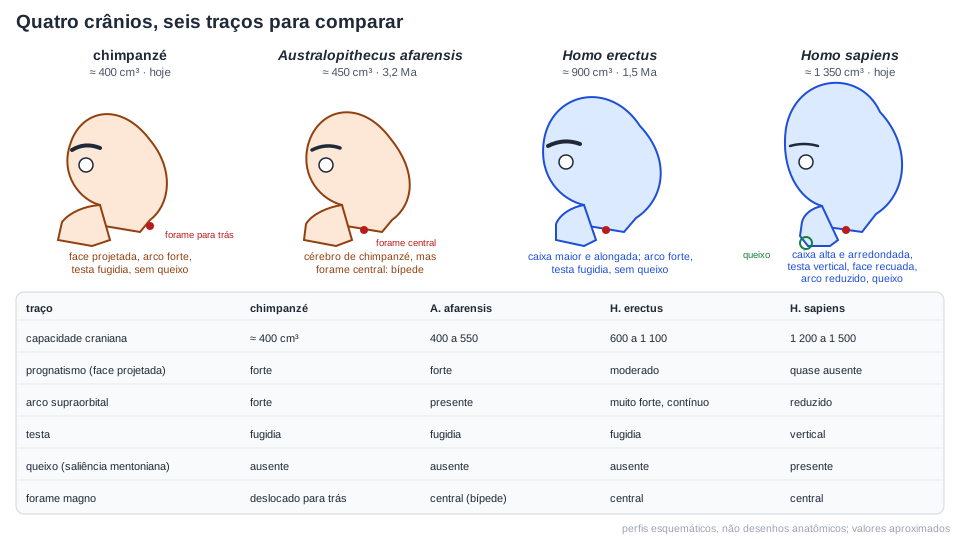
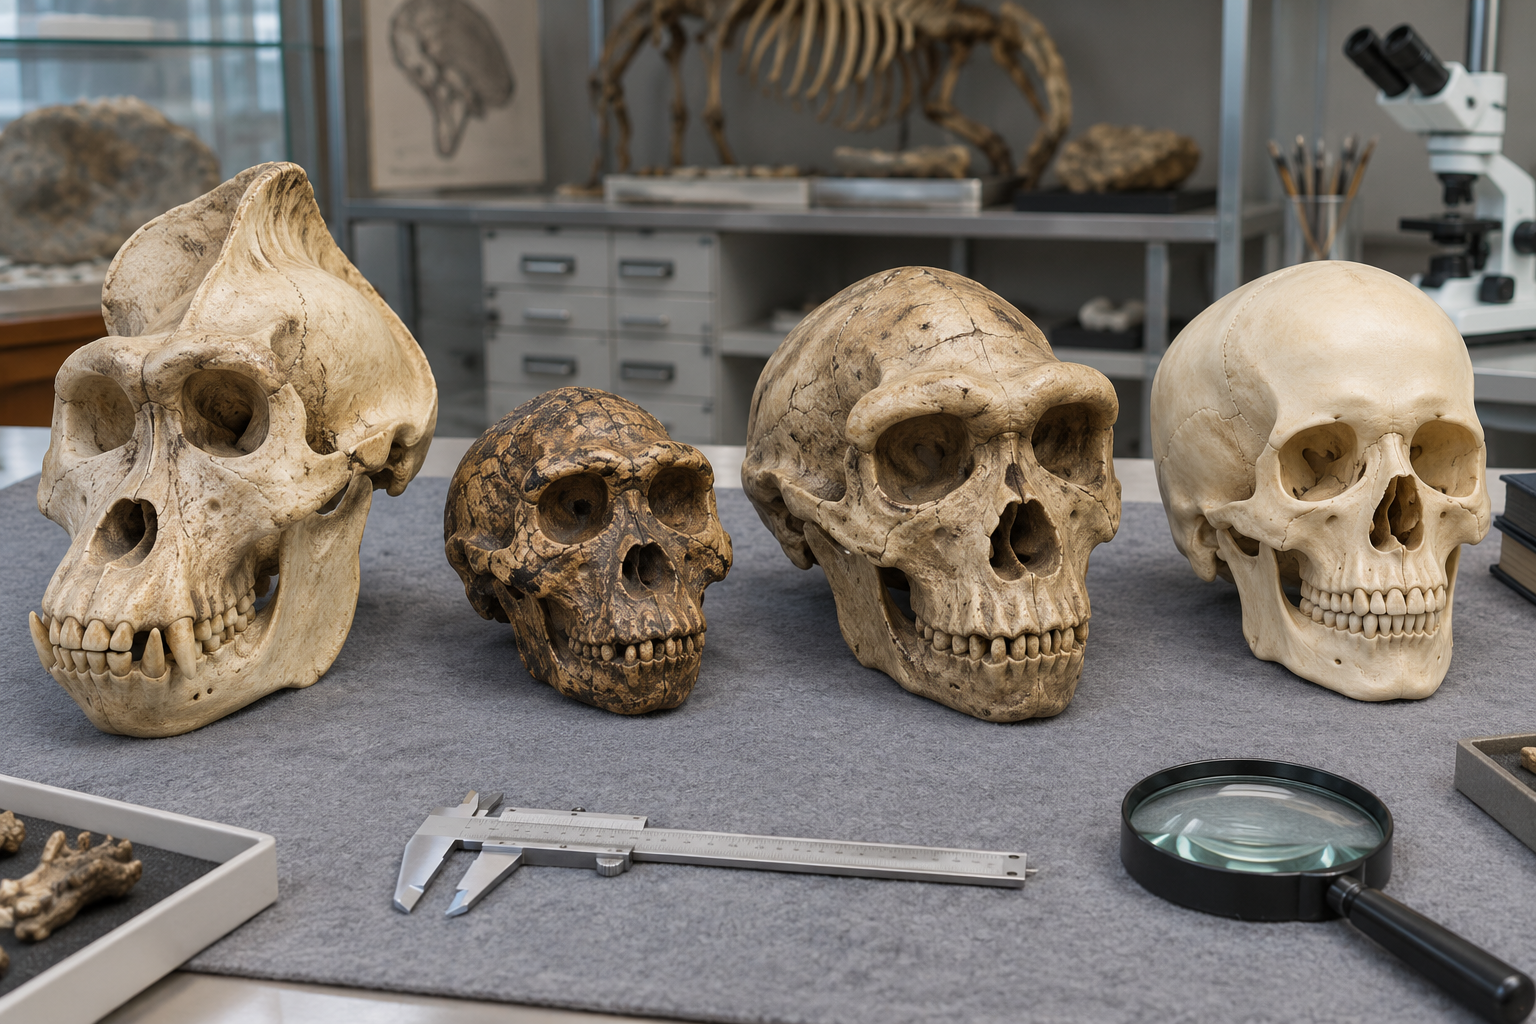
Os crânios. Comparar crânios é comparar meia dúzia de traços: a capacidade craniana; o prognatismo (face projetada para a frente, forte em australopitecos e chimpanzés, quase ausente em H. sapiens); o arco supraorbital (a saliência óssea acima dos olhos, marcante em H. erectus e neandertais, reduzida em nós); a testa (fugidia nos mais antigos, vertical em H. sapiens, acompanhando a expansão dos lobos frontais); o queixo (saliência mentoniana, exclusiva de H. sapiens); a posição do forame magno; e o tamanho dos dentes e das mandíbulas (molares enormes em Paranthropus, pequenos em nós). Nenhum traço isolado define uma espécie; o conjunto, com a idade e o lugar do achado, sim.
Quatro crânios, seis traços. Da esquerda para a direita a caixa cresce, a face recua, o arco acima dos olhos diminui e, só no último, aparece o queixo. Perfis esquemáticos, não desenhos anatômicos. Diagrama autoral.
Exemplo resolvido: um crânio sem etiqueta. Um crânio fóssil encontrado na África oriental tem capacidade de cerca de 850 cm³, arco supraorbital espesso, testa fugidia, face pouco projetada em comparação com um australopiteco, sem queixo, e forame magno em posição central na base. A camada de cinza vulcânica logo acima dele foi datada em 1,5 milhão de anos. Que gênero e espécie são mais compatíveis com o achado, e quais traços decidem?
Resolução. O forame magno central diz: bípede, portanto hominínio, não um grande primata atual. A capacidade de 850 cm³ exclui os australopitecos (400 a 550) e Homo habilis (até cerca de 690) e está abaixo dos neandertais e de H. sapiens (acima de 1 200). A idade de pelo menos 1,5 milhão de anos (a cinza está acima, logo o crânio é mais antigo que ela) exclui H. heidelbergensis (de 700 mil anos para cá), neandertais e H. sapiens. Sobra Homo erectus: cérebro intermediário, arco supraorbital forte, testa fugidia, sem queixo, África oriental, dentro da faixa de 1,9 milhão a 110 mil anos. Os traços que decidem são a capacidade craniana combinada com a idade; o arco e a ausência de queixo confirmam, mas sozinhos não bastariam, porque neandertais também têm arco forte e australopitecos também não têm queixo.
Conferência. Se a capacidade fosse 1 400 cm³ com a mesma idade, haveria um problema: nenhum hominínio conhecido de 1,5 milhão de anos tem esse cérebro, e a resposta certa seria desconfiar da datação ou da medida, não forçar uma espécie. Se a capacidade fosse 500 cm³ com arco forte e molares enormes, a resposta mudaria para Paranthropus.
Nas três etapas do PAS, a evolução humana aparece em blocos interdisciplinares, pendurados num texto de divulgação, e quase nunca como pergunta de nome e data. O padrão, nos itens reais desta página:
A escada que vira garfo. 2008/97 (chimpanzé → neandertal → sapiens, E) e 2018/75 (nova espécie de Homo a partir de gorila ou chimpanzé, E), ambos no PAS 3. Regra: espécie atual não é ancestral de espécie atual; novo Homo só de população de Homo.
Raça biológica. 2008/35 (Tarsila, E), 2018/77 (migração → raças, E), 2022/62 (alelo falciforme → pele escura, E), PAS 3. Regra: variação dentro > entre; cor e gene são independentes.
Escala de tempo. 2011/84 (espécie humana no Cretáceo, E), PAS 3. Regra: milhões versus milhares; período versus era.
Origem e direção. 2019/60 (sapiens surgiu na Europa, E), 2013/29 (bipedismo possibilitou habilidades culturais, C), 2013/30 (Beríngia, C), 2013/24 (Neolítico, C), PAS 1, em blocos de História. Regra: África, depois o mundo, América por último; bipedalismo como condição prévia, não como causa.
Leitura de árvore. 2009/90 (ancestral comum dos grandes primatas, C) e 2009/92 (Haeckel desatualizado: homem como ápice, C), PAS 2. Regra: nó = ancestral comum; não há ápice.
Linguagem. 2010/41 (cérebros humanos mais “desenvolvidos”, C), 2010/42 (só o aparelho fonador explica a diferença, E), 2023/36 a 39 (texto da BBC: cooperação, deslocamento, neandertais, perspectiva evolucionista), PAS 1. Regra: inato e aprendido em camadas; a resposta está no texto.
DNA antigo. 2008/103 (DNA mitocondrial em material antigo, C), PAS 3. Regra: muitas cópias por célula, mais chance de sobreviver.
Domesticação. 2025/68 (cupuaçu não é OGM, E), PAS 3. Regra: seleção artificial não é transgenia.
A matriz vigente do PAS lista “relações entre línguas, biologia, cultura e sociedade” como objeto e tem na lista de obras um artigo de divulgação sobre a origem da linguagem; é o terreno mais provável para um item novo, no molde das armadilhas inato/aprendido desta página.
Os erros que mais derrubam
“O homem veio do macaco.” Espécie atual não é ancestral de espécie atual; o ancestral comum é extinto e não era nenhuma das duas.
A linha reta. Várias espécies de hominínios coexistiram; a maioria se extinguiu sem descendentes; a árvore é um arbusto.
“Elo perdido.” Supõe uma corrente única; os fósseis de transição existem e estão em museus, e nenhum deles é “o” elo.
Cérebro antes do bipedalismo. A ordem é a inversa: andar ereto há mais de 4 milhões de anos; cérebro grande a partir de 2 milhões.
Bipedalismo como causa direta do cérebro. Condição prévia, sim; causa, não demonstrada.
Neandertal como ancestral do humano moderno. Linhagens irmãs, com ancestral comum há mais de 500 mil anos, que se cruzaram; não antepassado.
Raças biológicas. Não existem em H. sapiens; a categoria é social.
Língua no genoma. A capacidade é biológica; cada língua é cultural.
“Gene da linguagem”.FOXP2 é necessário, não suficiente.
Milhões por milhares. 300 mil anos para a espécie; 66 milhões para o fim do Cretáceo; 6 a 8 milhões para o nó com os chimpanzés.
“Mais evoluído”. Não há direção nem ápice; ramos atuais tiveram o mesmo tempo para mudar.
Domesticação como transgenia. Seleção artificial não é OGM.
Hipótese como fato. Por que ficamos bípedes, quando começamos a falar, qual rota exata para a América: perguntas em aberto; o item que afirma certeza onde há debate costuma estar errado.
O essencial em meia página
Somos primatas da família Hominidae; chimpanzés e bonobos são nossos primos, com ancestral comum extinto há cerca de 6 a 8 milhões de anos. Hominínios = linhagem humana depois desse nó.
Bipedalismo primeiro, cérebro depois. Marcas: forame magno central, coluna em S, pelve curta e larga, fêmur convergente, pé com arco e dedão alinhado. Pegadas de Laetoli (3,66 milhões de anos).
Espécies de referência, do mais antigo ao mais recente: Sahelanthropus (7 a 6 Ma), Ardipithecus (4,4), Australopithecus afarensis e Lucy (3,9 a 2,9), Paranthropus (ramo robusto, extinto), Homo habilis (Oldowan), Homo erectus (Acheulense, fogo, saída da África), H. heidelbergensis, neandertais, denisovanos, H. floresiensis, H. naledi, H. sapiens (Jebel Irhoud, cerca de 300 mil anos).
Coexistência: várias espécies ao mesmo tempo; a maioria extinta sem descendentes.
Encefalização: de 400 a 1 350 cm³; cérebro caro (20 % da energia em repouso); dieta, fogo, infância longa, vida social; dilema do parto.
Origem africana e dispersão principal há 70 a 60 mil anos; miscigenação com neandertais (1 a 2 % do DNA de não africanos) e denisovanos (Melanésia; EPAS1 no Tibete); Nobel de 2022 para o DNA antigo.
Linguagem: capacidade da espécie (Broca, laringe baixa, hioide, FOXP2 necessário e não suficiente, teoria da mente, deslocamento, sintaxe) × língua da cultura.
Evolução recente: lactase, altitude, cor da pele como gradiente; domesticação = seleção artificial; coevolução gene-cultura.
Raça: sem base biológica (85 a 90 % da variação dentro das populações; gradientes; espécie jovem); real como categoria social.
Américas: Beríngia, pelo menos 15 mil anos; Lagoa Santa, Luzia (11 a 13 mil anos); DNA de 2018 liga Lagoa Santa aos indígenas atuais; sambaquis (8 mil a mil anos).
Em prova: nó = ancestral comum; barras sobrepostas = coexistência; capacidade + idade decidem o crânio; “biológica” derruba item de raça; inato e aprendido são camadas, não alternativas.
Exercícios temporariamente indisponíveis
Não foi possível consultar o banco de questões. O conteúdo da aula continua disponível.
Flashcards temporariamente indisponíveis
Não foi possível consultar os cartões de revisão.
Visão geral sobre a evolução humana | Biologia | Khan Academy
Khan Academy Brasil · 10:29
Introdução. Em dez minutos, a aula situa a linhagem humana na escala do tempo, da extinção dos dinossauros à humanidade, e apresenta a ideia de ancestral comum entre humanos e grandes primatas. Corresponde às seções “Somos primatas: onde a espécie humana fica na árvore” e à leitura da escala de tempo em “Ler árvores, cronologias e crânios”. Assista antes de ler e anote as datas citadas para compará-las com a tabela de espécies da página.
Andando sobre duas pernas | Série Evolução Humana | Ep. 08
Canal USP · 14:08
Aprofundamento. Episódio produzido pelo Laboratório de Estudos Evolutivos Humanos do IB-USP, apresentado pela pesquisadora Mercedes Okumura, sobre a bipedia e sobre como se identifica, no esqueleto, uma espécie bípede da nossa linhagem. É a versão em vídeo da seção “Andar sobre duas pernas veio milhões de anos antes do cérebro grande”: confira, enquanto assiste, as cinco marcas do bipedalismo listadas na página.
Linha do Tempo da Evolução Humana: quem veio antes e o que mudou? | Prof. Gui
Prof. Guilherme Goulart - Biologia · 39:38
Aplicação para vestibular. Aula longa, com capítulos, que percorre o cladograma e a linha do tempo dos hominínios, de Sahelanthropus a Homo sapiens, com características, ferramentas e migrações de cada grupo, e com o cuidado explícito de desfazer a imagem da “escadinha”. Cobre a seção “Os hominínios: um arbusto com muitos galhos secos” e a tabela de espécies; use os capítulos do vídeo para rever uma espécie de cada vez.
O que se sabe sobre a convivência do Homo sapiens com outras espécies de humanos
BBC News Brasil · 7:44
Atualização e coexistência. Reportagem em vídeo sobre as espécies de humanos que conviveram com Homo sapiens (neandertais, denisovanos, Homo naledi, entre outras), os híbridos revelados pelo DNA antigo e as descobertas recentes. Corresponde às seções “Homo sapiens: nasceu na África e se espalhou pelo mundo” e ao quadro “O que o DNA antigo mostrou”; depois de assistir, refaça o exemplo resolvido da cronologia.
Evolução e dispersão dos seres humanos | História | Explica do Zero
Curso Enem Gratuito · 7:34
Aplicação interdisciplinar. Aula curta de História sobre a origem e a dispersão dos seres humanos pelo planeta, com ferramentas, caça e linguagem, no formato em que o PAS 1 cobra o assunto (blocos de História com conteúdo biológico, como os itens de 2013 e 2019). Corresponde à seção “As Américas e o Brasil antigo” e à lista de itens em “Como a banca pergunta”. Compare as datas citadas com as da página: onde houver diferença, prevalecem as fontes citadas na página.
Pegadas como as de Laetoli, deixadas há cerca de 3,66 milhões de anos por hominínios de cérebro pequeno que já andavam eretos: o bipedalismo veio primeiro, o cérebro grande veio depois. De onde viemos, por que andamos sobre duas pernas e desde quando falamos são as perguntas desta página.A árvore dos hominoides. Humanos e chimpanzés são os ramos mais próximos; o ponto onde eles se juntam é uma espécie extinta, que não era nenhuma das duas. Nenhuma espécie do topo é ancestral de outra do topo. Datas aproximadas (Smithsonian Human Origins Program). Diagrama autoral.As marcas do bipedalismo, osso a osso. Com um crânio isolado, olha-se a posição do forame magno; com uma pelve ou um fêmur, a forma da bacia e o ângulo dos joelhos. Esquemas simplificados, fora de escala. Diagrama autoral.Quem viveu quando. O que importa não são as datas isoladas, e sim as sobreposições: em dois momentos, pelo menos quatro espécies de hominínios habitavam a Terra ao mesmo tempo, e a maioria dos ramos se extinguiu sem descendentes. Faixas aproximadas. Diagrama autoral.Dois milhões de anos de cérebro pequeno, depois o salto. O cérebro custa cerca de 20 % da energia em repouso, e o aumento exigiu dieta, fogo, infância longa e grupo; os pontos fora da curva mostram que não houve lei de crescimento. Faixas aproximadas. Diagrama autoral.Quatro indústrias, quatro graus de planejamento: escolher a pedra, ter a forma final em mente, preparar o núcleo em etapas, combinar materiais e símbolos. A pedra não registra pensamento, mas registra o que foi preciso prever para fazê-la. Diagrama autoral.De uma só origem para todos os continentes. Setas são direções gerais, não trilhas; as datas são as mais aceitas, e as controvérsias (Austrália, Américas antes de 20 mil anos) estão no texto. Mapa esquemático, fora de escala. Diagrama autoral.Quatro crânios, seis traços. Da esquerda para a direita a caixa cresce, a face recua, o arco acima dos olhos diminui e, só no último, aparece o queixo; o forame magno central já está no australopiteco. Perfis esquemáticos, não desenhos anatômicos. Diagrama autoral.Comparar crânios é comparar meia dúzia de traços: capacidade craniana, prognatismo, arco supraorbital, testa, queixo e posição do forame magno. Nenhum traço isolado define uma espécie; o conjunto, com a idade e o lugar do achado, sim.Um biface Acheulense: para fazê-lo, é preciso ter a forma final em mente antes do primeiro golpe e repeti-la por centenas de milhares de anos. A pedra não registra pensamento, mas registra o que foi preciso prever.Nas grutas de Lagoa Santa, Peter Lund encontrou no século XIX ossos humanos misturados aos de animais extintos; de uma delas veio o crânio de Luzia, com 11 a 13 mil anos. Em 2018, o DNA antigo mostrou que aquela população pertence à mesma linhagem dos demais povos indígenas das Américas.Um sambaqui: monte de conchas, ossos de peixe e sepultamentos erguido por povos pescadores-coletores do litoral entre 8 mil e mil anos atrás. A alcalinidade das conchas preserva esqueletos que contam dieta, saúde e parentesco.De fragmentos de osso com dezenas de milhares de anos saíram o genoma do neandertal (2010) e a descoberta dos denisovanos. O DNA antigo decidiu o debate sobre a origem da espécie: africana e recente, com miscigenação no caminho.A domesticação de gado leiteiro criou um ambiente novo, e a seleção natural respondeu: em poucos milhares de anos, variantes que mantêm a lactase ativa na vida adulta se tornaram comuns nas populações que bebiam leite. A evolução humana não parou no Paleolítico.
Rota PAS 3
Origens da vida e evolução: quem seleciona o que vive · PAS 3
Fontes desta página
Os materiais abaixo contribuíram para a explicação e os exemplos deste assunto.
Rota PAS 3 — Origens da vida e evolução: quem seleciona o que vive · A evolução que fala: o segredo da linguagem humana (capacidade inata x língua aprendida, área de Broca, laringe baixa, genes necessários, universalidade; checagem); Evidências da evolução (parágrafo sobre a espécie humana: primos, não ancestrais; raças biológicas não existem; itens 2008/97, 2008/35, 2011/84, 2018/77); Especiação (item 2018/75); Como a banca cobra (resumo do histórico)
Recorte por assunto: a evolução da linhagem humana. Evidências gerais, especiação, seleção natural e genética de populações ficam nas páginas próprias; a página usa o capítulo como fonte de fatos, recorte e itens reais, com prosa e exemplos próprios.
Rota PAS 3 — Resoluções do Banco de treino do capítulo 3 de Biologia · Itens de evolução humana e de inferência a partir de texto-base (padrão da escada de espécies e das raças biológicas)
Conferência dos gabaritos dos itens reais reusados.
Rota PAS 1 — História: De onde viemos: a África como berço e o povoamento da América · Conceito (Jebel Irhoud, 300 mil anos; dispersão 70–60 mil anos; Beríngia; Neolítico); Na prova (2013: bipedismo, Beríngia; 2019/60); Banco de treino T5 (2013/29)
Fonte dos itens de PAS 1 sobre bipedismo e povoamento (2013/29, 2013/30, 2019/60), que a prova cobra em blocos de História com conteúdo biológico.
Rota PAS 1 — Língua Portuguesa: a origem da linguagem em texto de divulgação · Na prova (2010/42, texto de Pinker e Jackendoff sobre primatas; 2023/36–40, reportagem da BBC sobre a origem da fala, neandertais e medula espinhal)
Fonte dos itens interdisciplinares de linguagem e cognição comparada (2010/41, 2010/42, 2023/38, 2023/39).
Rota PAS 2 — Sistemática filogenética: a árvore de Haeckel e o cladograma dos grandes primatas · Na prova (itens 2009/90–92: ancestral comum de gibão, orangotango, gorila e homem; a árvore de Haeckel e o postulado superado do homem como ápice)
Fonte dos itens de leitura de árvore reusados por GUID (2009/90, 2009/92).
Rota PAS 3 — Genética: o bloco da neandertal Wilma · Itens 2008/98–103 (texto-base da National Geographic sobre a reconstituição de uma mulher neandertal; DNA nuclear e mitocondrial em ossos antigos)
Contexto do texto-base reusado pelos itens 2008/97 e 2008/103.