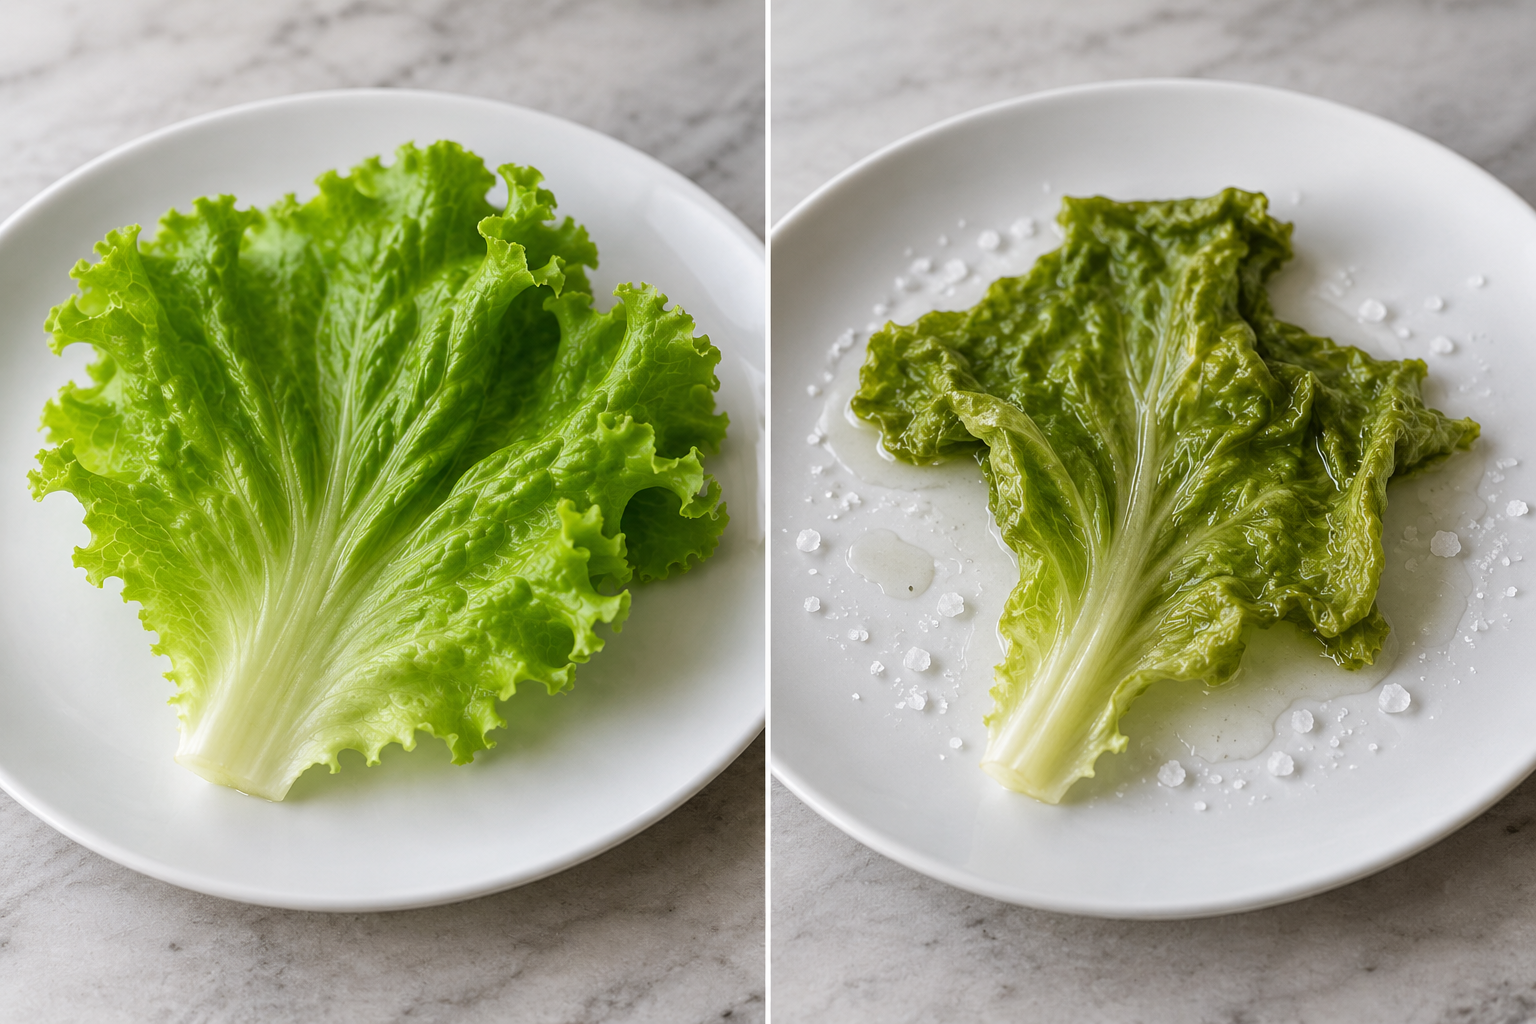
Uma alface temperada com sal murcha em meia hora, o soro do hospital tem exatamente 0,9 % de sal, o charque fica semanas fora da geladeira e um maratonista que bebeu água demais termina a prova confuso. As quatro cenas têm a mesma explicação. Qual é, e por que ela decide o que atravessa a membrana de toda célula?
O que você vai aprender
Descrever a membrana plasmática pelo modelo do mosaico fluido (bicamada de fosfolipídios, proteínas integrais e periféricas, colesterol, glicocálix), localizar cada componente pela polaridade e explicar por que se diz modelo.
Distinguir parede celular (plantas e algas, fungos, bactérias) de membrana plasmática (toda célula) e prever o que acontece com uma hemácia e com uma célula vegetal em água destilada.
Classificar uma substância pelo modo como atravessa a membrana (sozinha pela bicamada, por proteína a favor do gradiente, por bomba contra o gradiente com ATP, ou em vesícula) e justificar pela química da molécula, não pela velocidade.
Explicar a difusão pelo movimento térmico e pelo gradiente, listar os fatores que a aceleram e dizer por que a distância a limita.
Distinguir difusão simples de difusão facilitada pela forma da curva de velocidade contra concentração e explicar a saturação pelo número finito de transportadores.
Definir osmose pelo solvente e pela concentração de soluto, prever a direção da água entre uma célula e um meio hipotônico, isotônico ou hipertônico, e nomear hemólise, crenação, turgor, plasmólise e deplasmólise.
Explicar com osmose o soro fisiológico a 0,9 %, o soro de reidratação oral, a conservação de alimentos por sal e açúcar, a desidratação por água do mar, a hiponatremia por excesso de água, a osmorregulação de peixes e a plasmólise da raiz em solo salino.
Calcular a variação percentual de massa de um pedaço de batata em soluções diferentes e estimar a concentração interna pelo ponto em que a variação se anula.
Descrever a bomba de sódio e potássio (3 Na⁺ para fora, 2 K⁺ para dentro, 1 ATP), seu custo energético e seu papel na manutenção dos gradientes, e usar direção e energia, nunca velocidade, para separar transporte ativo de passivo.
Explicar o transporte ativo secundário pelo cotransporte de sódio e glicose no intestino e nos rins e pelo acúmulo de sais no vacúolo e na raiz.
Distinguir fagocitose, pinocitose, endocitose mediada por receptor e exocitose, dizer que células fazem cada uma e por que todas custam ATP.
Julgar itens no estilo Cebraspe sobre membrana e transportes, identificando o mecanismo trocado (eliminar por desidratar, pinocitose por exocitose, impermeável por seletiva, ativo por passivo).
Quatro cenas de uma mesma semana. A alface temperada com sal meia hora antes do almoço chega à mesa murcha; a folha gêmea, deixada numa tigela de água gelada, fica crocante. No hospital, uma bolsa de soro entra na veia de um paciente sem fazer nenhum mal às hemácias dele, e o rótulo diz 0,9 % de cloreto de sódio, nem 0,5 % nem 2 %. No mercado, uma manta de charque fica semanas fora da geladeira sem estragar, debaixo de uma crosta de sal. E, numa maratona, um corredor que bebeu água demais termina a prova confuso e vai parar no posto médico com sódio baixo no sangue.
As quatro cenas têm a mesma explicação, e ela cabe em duas frases: a água atravessa a membrana da célula do lado com menos soluto para o lado com mais soluto, e o sal não atravessa. Quem decide isso é uma película de 5 a 10 nanômetros de espessura que fecha toda célula, deixa a água e o oxigênio passarem, segura o açúcar até que uma proteína o carregue e empurra sódio para fora gastando energia. Esta página é sobre essa película e sobre os caminhos que atravessam ela. Começa pela estrutura, o modelo do mosaico fluido; separa a membrana da parede celular, que não é membrana; mostra o que passa sozinho e o que precisa de porta; trata da difusão simples, da difusão facilitada e da osmose, com as contas do soro e da batata na balança; chega ao transporte ativo e à bomba de sódio e potássio; e termina com os transportes em vesícula, a endocitose e a exocitose. No fim, os erros que os itens de prova exploram e um resumo de meia página.
O que fica para outras páginas: a molécula de fosfolipídio e por que ela forma bicamada estão em lipídios; o que toda célula tem e por que a membrana não aparece ao microscópio óptico, em teoria celular e tipos de células; as organelas que recebem as vesículas, em organelas celulares; as propriedades da água como solvente e os sais minerais, em água e sais minerais; o impulso nervoso que a bomba de sódio e potássio torna possível, em sistema nervoso; a absorção de água pela raiz e a condução de seiva, em fisiologia vegetal; o rim como órgão de regulação osmótica, em sistema excretor.
Antes da membrana: soluto, solvente, concentração e gradiente
Toda frase desta página compara concentrações. Se os quatro termos abaixo estiverem firmes, o resto é consequência.
Uma solução é uma mistura em que algo está dissolvido (o soluto) em um líquido (o solvente). Na água do mar, o sal é o soluto e a água é o solvente. A concentração diz quanto soluto há em cada porção de solução: 9 gramas de sal em 1 litro de água dão 9 g/L, que é o mesmo que 0,9 g em 100 mL, ou 0,9 %. Esse número é o do soro fisiológico. A água do mar tem cerca de 35 g de sais por litro, 3,5 %: quase quatro vezes mais concentrada que o soro.
Concentração em porcentagem e em gramas por litro
“0,9 %” em uma solução aquosa quer dizer 0,9 g de soluto em 100 mL. Multiplicando por 10, 9 g em 1 000 mL: 0,9 % = 9 g/L. Para qualquer porcentagem, o valor em g/L é a porcentagem vezes 10. Água do mar: 3,5 % = 35 g/L. Para saber quanto soluto há em um volume, multiplique a concentração pelo volume na mesma unidade: uma bolsa de 500 mL de soro a 0,9 % tem 0,9×5=4,5 g de sal.
Exemplo resolvido: a bolsa de soro e a bolsa de água do mar. Uma bolsa de soro fisiológico tem 500 mL a 0,9 %. Quanto sal ela contém? E se a mesma bolsa fosse enchida com água do mar a 3,5 %?
Soro: 0,9 g em cada 100 mL; em 500 mL, 0,9×5=4,5 g, menos que uma colher de chá. Água do mar: 3,5 g em cada 100 mL; em 500 mL, 3,5×5=17,5 g.
Conferência. Pela outra via: 9 g/L vezes 0,5 L dá 4,5 g; 35 g/L vezes 0,5 L dá 17,5 g. Os dois caminhos batem. A razão entre as duas bolsas, 17,5÷4,5≈3,9, é a razão entre as concentrações, como tem de ser.
O quarto termo é o gradiente: a diferença de concentração de uma substância entre dois lugares. Se há mais oxigênio no sangue do que dentro da célula, existe um gradiente de oxigênio entre o sangue e a célula, e ele tem uma direção, do lado com mais para o lado com menos. Quase tudo o que atravessa a membrana se classifica por uma pergunta sobre o gradiente: a substância vai a favor dele (do mais concentrado para o menos) ou contra ele (do menos para o mais)? Ir a favor não custa nada à célula. Ir contra custa energia, e a moeda da célula é o ATP, produzido na respiração celular (respiração celular).
Um mosaico que flui: a membrana por dentro
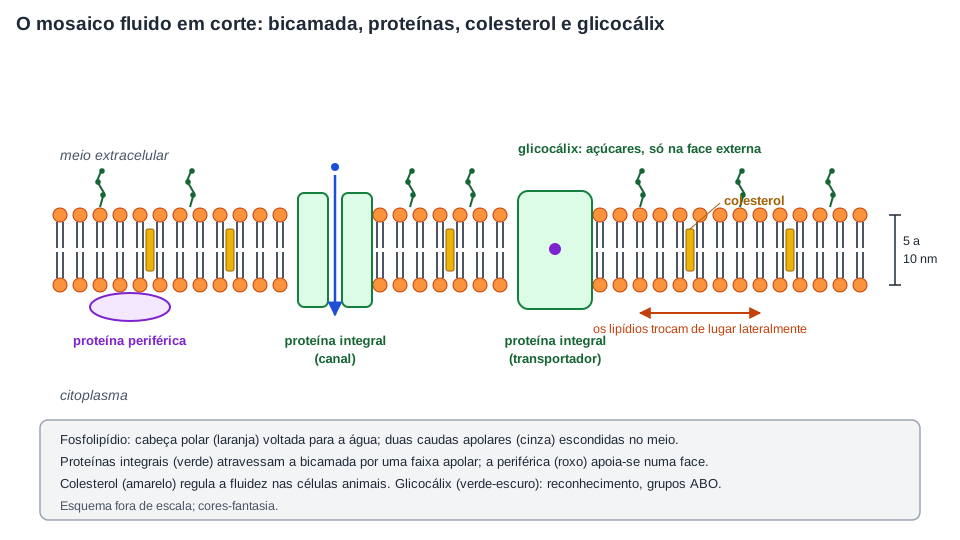
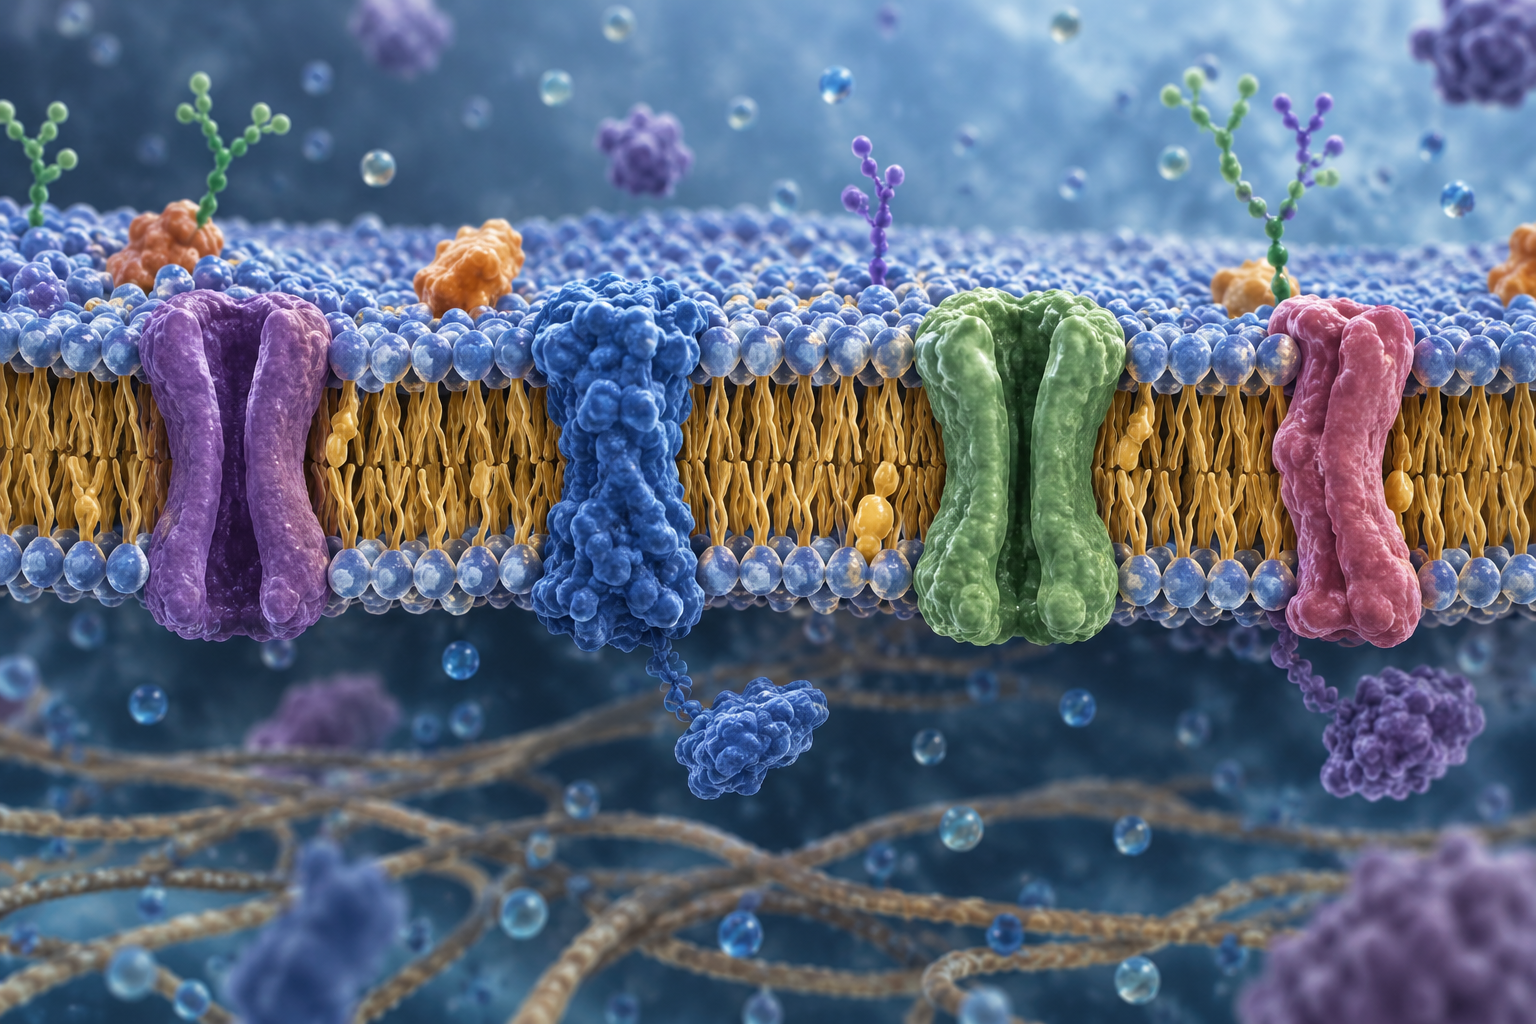
A base da membrana é a bicamada de fosfolipídios. Cada fosfolipídio tem uma cabeça polar, que se mistura com a água, e duas caudas apolares, que fogem dela: a molécula é anfipática. Em água, essas moléculas se arranjam sozinhas em duas fileiras, cabeças voltadas para a água de fora e de dentro da célula, caudas escondidas no meio. Esse arranjo, e por que ele é o mais estável, está explicado em lipídios. Aqui interessa o que ele não explica. Uma bolha de gordura com duas camadas não absorve glicose e recusa sacarose, não bombeia sódio para fora e potássio para dentro, não reconhece um hormônio nem gruda em outra célula do mesmo tecido. Nada disso é lipídio. Entre 30 e 50 % da massa de uma membrana típica é proteína, e é nas proteínas que está quase tudo o que a membrana faz.
O modelo que organiza esses componentes tem nome, autores e data: o modelo do mosaico fluido, proposto por S. Jonathan Singer e Garth Nicolson em 1972, na revista Science. A imagem é a de um mar de fosfolipídios, o “fluido”, com proteínas encaixadas como pedras de um mosaico; um mosaico em que as pedras se movem.
Os componentes do mosaico fluido
Bicamada de fosfolipídios: a base. As moléculas trocam de lugar lateralmente milhões de vezes por segundo, e é isso que “fluido” quer dizer. Trocar de camada (passar de uma fileira para a outra) é raro, porque exige levar a cabeça polar pelo meio apolar.
Proteínas integrais: atravessam a bicamada de lado a lado ou se enterram nela. Têm uma faixa de aminoácidos apolares do tamanho da região das caudas, que fica presa ali pelo mesmo motivo que as caudas: é o arranjo de menor energia na água. São os canais, os transportadores e as bombas desta página, e também os receptores de hormônios e de sinais.
Proteínas periféricas: apoiadas em uma das faces, presas a uma proteína integral ou às cabeças dos lipídios. Muitas ligam a membrana ao citoesqueleto por dentro e ajudam a dar forma à célula.
Colesterol: nas células animais, encaixado entre as caudas. Regula a fluidez: impede que a bicamada endureça no frio e que se desmanche no calor. Plantas, fungos e bactérias não têm colesterol e usam outros lipídios para o mesmo efeito.
Glicocálix: cadeias curtas de açúcares presas a proteínas (glicoproteínas) e a lipídios (glicolipídios), só na face externa. É por elas que uma célula é reconhecida: proteínas de outra célula, de um vírus ou de um anticorpo se encaixam nesses açúcares. Os grupos sanguíneos do sistema ABO são diferenças nos açúcares do glicocálix da hemácia.
O mosaico fluido em corte. Bicamada de fosfolipídios (cabeças laranja, caudas cinza), proteínas integrais (verde: um canal com poro e um transportador sem poro), proteína periférica (roxo) na face interna, colesterol (amarelo) entre as caudas e glicocálix (verde-escuro) só na face externa. A seta dupla laranja indica que os lipídios trocam de lugar lateralmente. Espessura real: 5 a 10 nm, abaixo do limite do microscópio óptico. Esquema fora de escala. Diagrama autoral.
Fluidez e temperatura. A bicamada se comporta como um óleo: quanto mais frio, mais viscosa; quanto mais quente, mais fluida. Caudas insaturadas, com dobras, se empilham mal e mantêm a membrana fluida no frio; caudas saturadas e longas se empilham bem e a enrijecem. Nas células animais, o colesterol trabalha nas duas pontas: no frio, impede que as caudas se encaixem e cristalizem; no calor, segura as caudas vizinhas e evita que a membrana se desfaça. Uma bactéria sem colesterol não endurece a 4 °C nem se desmancha a 40 °C porque ajusta a proporção de caudas insaturadas conforme a temperatura em que vive. O modelo prevê que a fluidez precisa ficar numa faixa; o colesterol é o regulador das células animais, não o único possível.
O que a membrana faz. Três funções resumem o resto da página. Fronteira seletiva: separa o citoplasma do meio e controla o que entra e o que sai; é a permeabilidade seletiva, e as próximas seções são sobre ela. Reconhecimento: pelo glicocálix e pelas proteínas da superfície, uma célula sabe se a vizinha é do mesmo tecido, e um anticorpo sabe se a célula é sua ou de um invasor. Comunicação: receptores da face externa ligam hormônios e neurotransmissores e transmitem o sinal para dentro sem que a molécula entre.
Ninguém viu o mosaico fluido
A membrana tem 5 a 10 nm. Ao microscópio eletrônico de transmissão ela aparece como duas linhas escuras com uma faixa clara no meio, e só. As proteínas, o colesterol e o movimento lateral foram inferidos. Em 1925, Evert Gorter e François Grendel extraíram os lipídios de hemácias, espalharam-nos sobre água e mediram a área: dava para cobrir cada hemácia duas vezes, e nasceu a ideia da bicamada. Em 1935, Hugh Davson e James Danielli propuseram que a bicamada era coberta por duas capas planas de proteína, um sanduíche; o modelo explicava a espessura medida e durou quase quarenta anos. Em 1970, Larry Frye e Michael Edidin fundiram uma célula de camundongo com uma célula humana, cada uma com suas proteínas de superfície marcadas por uma cor fluorescente; em cerca de quarenta minutos as duas cores estavam misturadas por toda a célula híbrida. Proteínas presas numa capa rígida não fariam isso; proteínas boiando num fluido, sim. Dois anos depois, Singer e Nicolson organizaram essa e outras evidências no mosaico fluido. O modelo de 1972 já foi refinado: hoje se sabe que muitas proteínas formam complexos, que as duas faces da bicamada têm lipídios diferentes e que há regiões de composição própria onde certas proteínas se concentram. Um modelo é uma aposta organizada sobre o que está lá; quando o instrumento melhora, a aposta é corrigida.
Exemplo resolvido: onde fica cada molécula, e por quê. Um esquema de membrana mostra quatro componentes: (I) uma proteína com uma faixa de aminoácidos apolares no meio e extremidades polares; (II) cadeias de açúcar; (III) uma proteína inteira polar; (IV) uma molécula pequena e rígida, de quatro anéis apolares, com um único grupo OH. Diga onde cada uma fica e justifique pela química, não pelo desenho.
A regra é uma só: o que é apolar fica entre as caudas; o que é polar fica na água, dentro ou fora da célula. (I) é uma proteína integral, atravessando a bicamada: a faixa apolar tem o comprimento das caudas e fica ali porque é o arranjo de menor energia; as pontas polares ficam uma fora, outra dentro. (II) é o glicocálix, na face externa: açúcares são polares e ficam na água, e a face é a externa porque é ali que as cadeias são montadas e reconhecidas. (III) é uma proteína periférica: inteira polar, não atravessa as caudas; apoia-se numa das faces. (IV) é o colesterol, entre as caudas: os anéis apolares ficam na região apolar e o OH aponta para as cabeças.
Conferência pelo caso-limite. Se a proteína (I) perdesse a faixa apolar por uma mutação que trocasse esses aminoácidos por polares, ela não ficaria na membrana: viraria uma proteína solúvel. É o que acontece com algumas proteínas defeituosas em doenças de membrana. A regra prevê o defeito, o que é um bom sinal de que ela está certa.
"Membrana" não é "casca"
A figura mais vista da célula é a da célula vegetal, com uma parede grossa em volta, e a palavra “parede” soa como sinônimo de “limite”. Daí vem a ideia de que a membrana é uma casca rígida ou uma parede fina. Não é. A membrana é um fluido organizado, de lipídios e proteínas, presente em toda célula, inclusive nas que têm parede. A parede é outra estrutura, de outro material, por fora da membrana, e só algumas células a têm. A próxima seção é sobre essa diferença, e um item real da prova a cobrou.
O item 80 do PAS 3 de 2014 mostrava uma figura de livro didático com a bicamada e uma proteína transportadora e afirmava que ela ilustrava o padrão básico da estrutura de uma membrana plasmática, independentemente do estágio de diferenciação em que a célula se encontre. Gabarito: certo. É um absoluto verdadeiro. O mosaico fluido é o mesmo em qualquer célula e em qualquer estágio; o que muda de uma célula para outra são as proteínas específicas, não a arquitetura. A figura do caderno não está reproduzida nesta página, por isso o item fica só como leitura.
Parede não é membrana
Toda célula tem membrana plasmática. Algumas têm, por fora dela, uma parede celular: de celulose nas plantas e algas, de quitina nos fungos, de peptidoglicano nas bactérias. Célula animal não tem parede nenhuma. A comparação entre os tipos de célula está em teoria celular e tipos de células; aqui importa o que a parede faz e o que ela não faz.
A parede é uma malha rígida e porosa. Sustenta (é ela que mantém uma árvore em pé sem esqueleto), protege e limita o volume. Mas não seleciona o que passa: água, íons e moléculas pequenas atravessam a malha de celulose como atravessam um pano. Quem seleciona é a membrana, por dentro. Uma célula vegetal tem, portanto, duas fronteiras com funções diferentes: a parede limita até onde a célula pode inchar; a membrana determina o que entra.
membrana plasmática
parede celular
quem tem
toda célula
plantas e algas, fungos, bactérias; célula animal não
material
bicamada de fosfolipídios com proteínas
celulose; quitina; peptidoglicano
espessura
5 a 10 nm
de dezenas de nanômetros a vários micrômetros
seleciona o que passa?
sim: permeabilidade seletiva
não: malha porosa, permeável à água e a solutos pequenos
o que controla
o que entra e o que sai
o volume máximo e a forma; sustentação
em água destilada
deixa a água entrar
segura a célula inchada: ela não estoura
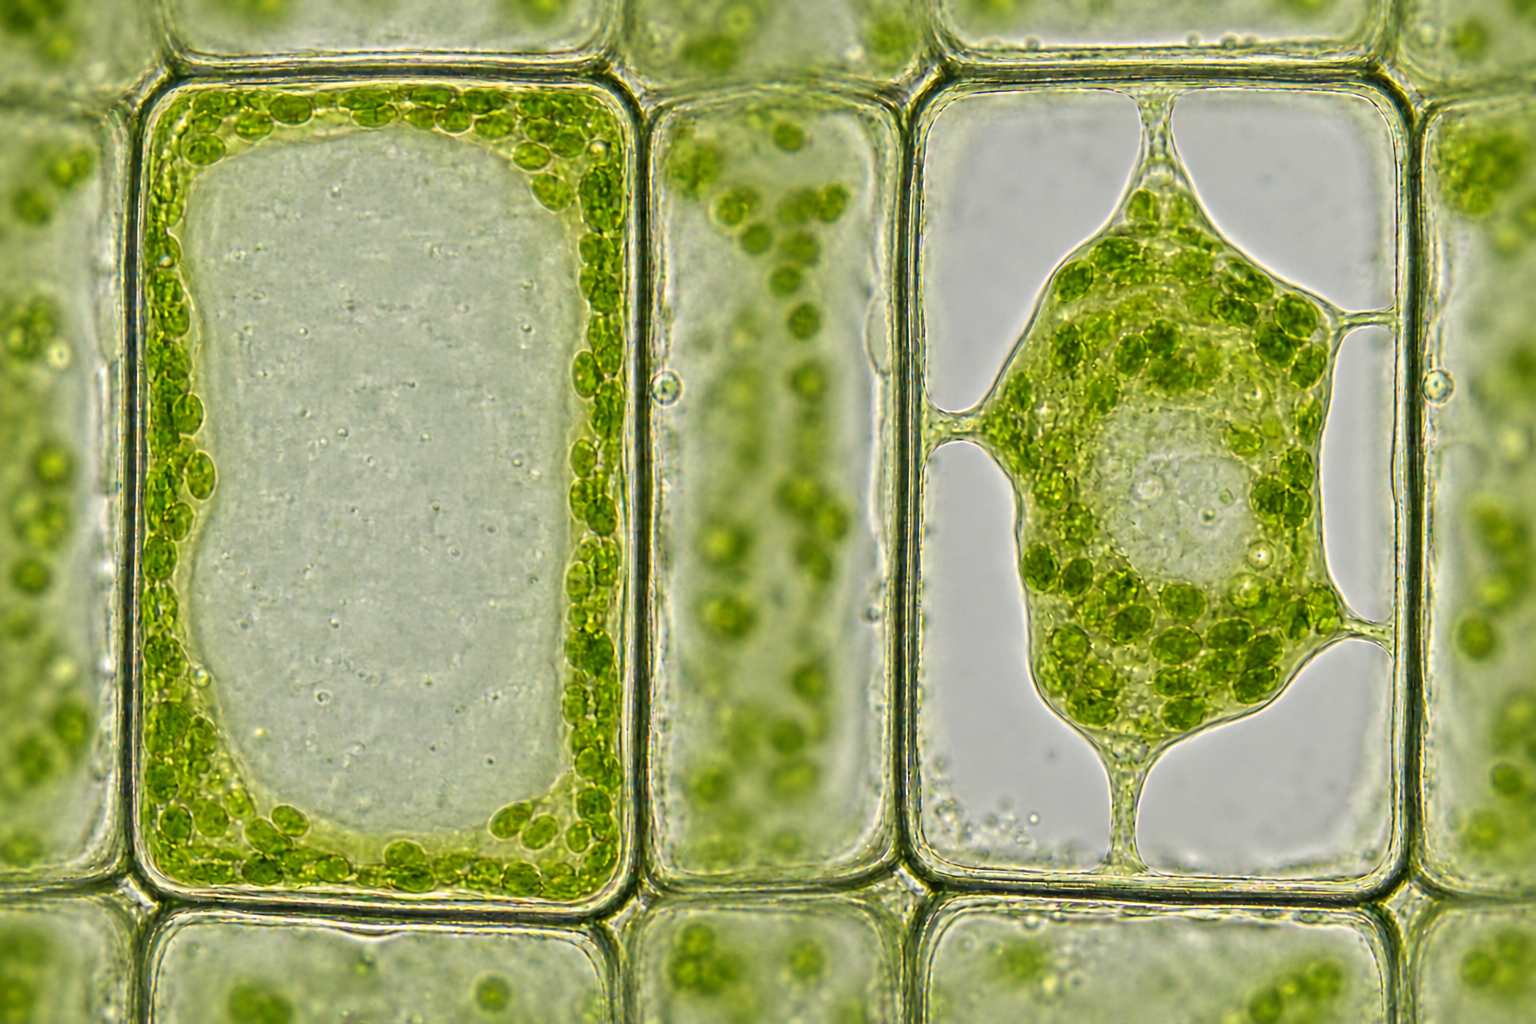
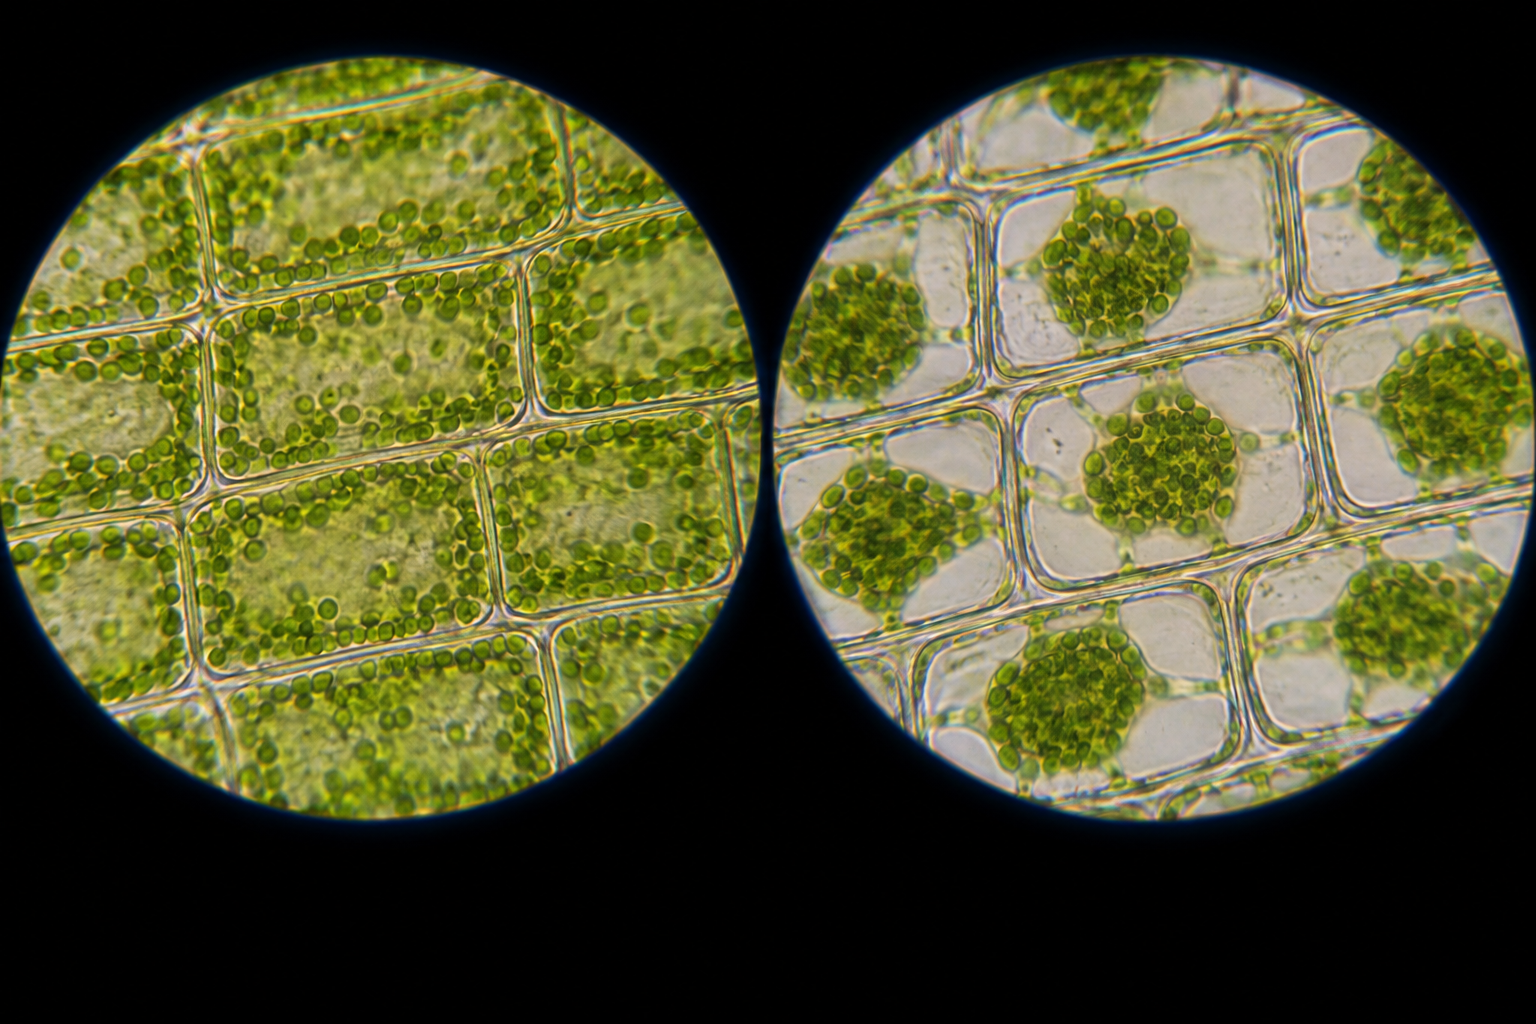
A consequência aparece em duas lâminas. Na primeira, hemácias numa gota de água destilada; na segunda, uma folha de elódea, a planta de aquário, na mesma água. Nos dois casos as células estão cercadas por um líquido muito menos concentrado do que o citoplasma delas, e nos dois casos a água entra. Em poucos minutos a lâmina das hemácias fica rosada e quase sem células inteiras: elas incharam até virar esferas e romperam (hemólise), liberando a hemoglobina. As células de elódea continuam retangulares, com a membrana encostada na parede e o vacúolo cheio: estão túrgidas, firmes, e não estouram. A diferença não está na água nem na membrana. As duas membranas são igualmente permeáveis à água. Está na parede: a célula de elódea incha até a membrana encostar na parede, a parede resiste, e a entrada de água para. A hemácia não tem nada que a segure.
Exemplo resolvido: critique a argumentação. Um resumo afirma: “Toda célula tem uma parede que a protege e controla o que entra e sai. Nas células animais, a parede é mais fina e recebe o nome de membrana plasmática.” Que observação desmonta o resumo?
Há dois erros. O primeiro é de estrutura: parede e membrana não são a mesma coisa em versões grossa e fina. A parede é uma malha de polissacarídeo ou de peptidoglicano, por fora da membrana, presente em plantas, fungos e bactérias; a membrana é uma bicamada de lipídios com proteínas, presente em todas as células, inclusive nas que têm parede. Uma célula vegetal tem as duas, uma dentro da outra. O segundo erro é de função: o controle do que entra e sai é da membrana; a parede é porosa e controla o volume. A observação que desmonta o resumo é a hemácia em água destilada: se a “parede fina” da hemácia fosse uma parede, ela incharia até um limite e pararia, como a elódea. Ela rompe. O resumo prevê o resultado errado.
Conferência por outro caso. A penicilina mata bactérias impedindo a montagem da parede, e uma bactéria sem parede, em meio diluído, estoura pelo mesmo motivo que a hemácia. Se parede e membrana fossem a mesma coisa, a penicilina teria de destruir também a membrana e afetaria as células do paciente. Não afeta: as células humanas nunca tiveram parede.
Dois itens reais da prova se decidem nessa fronteira. O item 61 do PAS 1 de 2014 chamou a membrana plasmática de impermeável e visível ao microscópio óptico e lhe deu função estrutural: errado, e por mais de um motivo. A membrana é seletivamente permeável, o oposto de impermeável; tem menos de 10 nm e só aparece ao microscópio eletrônico; e a sustentação, quando existe, é da parede. O item está resolvido em teoria celular e tipos de células e reaparece na lista de questões desta página. O item 115 do PAS 3 de 2023 afirmou que, na célula vegetal, o processo de osmose sofre resistência da parede celular quando a célula está túrgida: certo. É o freio da parede: túrgida, a célula pressiona a parede, e a parede devolve a pressão, resistindo à entrada de mais água. A seção sobre osmose volta a ele.
O que atravessa sozinho e o que precisa de porta
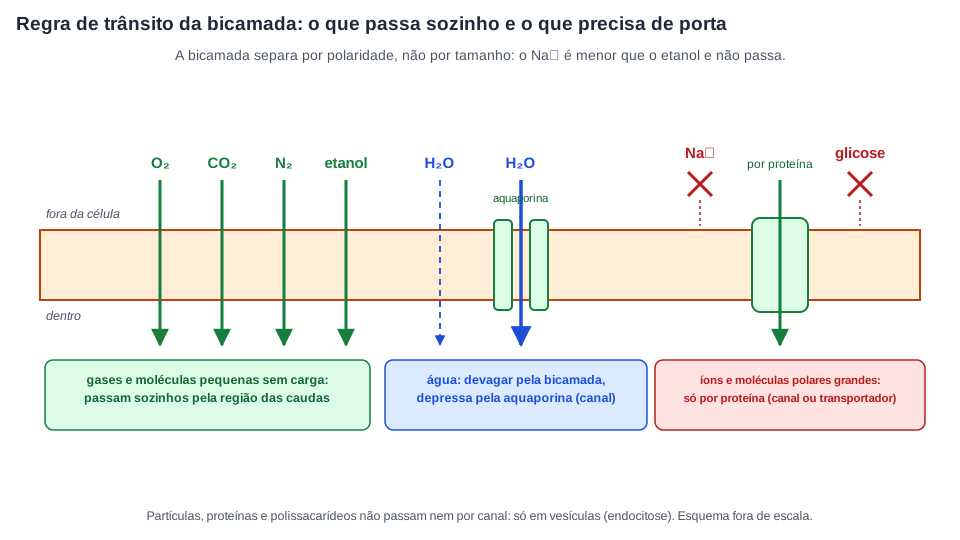
Uma peneira comum separa por tamanho. A bicamada separa, antes de tudo, por polaridade: para atravessá-la, uma molécula tem de passar pela região das caudas, que é gordura. O que se dissolve em gordura passa; o que só se dissolve em água, não.
A regra de trânsito da bicamada. Setas verdes cheias: atravessam a região das caudas por conta própria. Água: passa pela bicamada, mas devagar; as aquaporinas (canal verde ao centro) multiplicam a velocidade. Íons (com carga) e moléculas polares grandes, como a glicose, não atravessam a gordura e dependem de uma proteína, canal ou transportador. Esquema fora de escala. Diagrama autoral.
Passam sozinhos: gases (O2, CO2, N2) e moléculas pequenas sem carga (etanol, ureia, muitos anestésicos e medicamentos lipossolúveis). É por isso que o oxigênio entra em qualquer célula sem nenhuma proteína, e que o álcool chega ao cérebro em minutos.
Água: pequena e polar. Passa pela bicamada, mas lentamente: o bastante para uma bactéria, insuficiente para uma hemácia que precisa mudar de forma em fração de segundo ou para um túbulo do rim que reabsorve mais de cem litros por dia. Nessas células a membrana tem aquaporinas, canais de proteína pelos quais só água passa, em fila, bilhões de moléculas por segundo por canal.
Só por proteína: íons (Na+, K+, Cl−, Ca2+), porque a carga elétrica os mantém cercados de moléculas de água, e essa capa não entra na gordura; e moléculas polares grandes (glicose, aminoácidos, nucleotídeos). Para cada uma há uma proteína específica. A glicose entra por uma família de transportadores chamados GLUT, e nenhum deles transporta sacarose: a sacarose só entra depois de quebrada em glicose e frutose.
Não passam de jeito nenhum pela bicamada nem por canal: proteínas, polissacarídeos, partículas, bactérias. Para elas existe a última seção desta página: a membrana se dobra e as engole.
É a isso que se chama permeabilidade seletiva. A membrana não é impermeável (gases e água a atravessam) nem é uma peneira por tamanho (o Na+ é menor que o etanol e não passa). Ela seleciona pela química de cada substância e pelas proteínas que esta célula tem. Duas células com bicamadas idênticas e proteínas diferentes deixam passar coisas diferentes: é o mosaico, não o fluido, que faz a seleção.
Uma proteína que ninguém queria e um Nobel
No fim dos anos 1980, o médico Peter Agre, em Baltimore, estudava as proteínas do grupo sanguíneo Rh nas hemácias e ficava com uma contaminante de 28 mil dáltons que aparecia sempre, às centenas de milhares de cópias por hemácia, e cuja função ninguém conhecia. O grupo dele notou que hemácias e células do túbulo renal, os dois lugares em que a proteína era abundante, são justamente as células que precisam mover água depressa. O teste foi simples: injetaram em oócitos de rã, células que incham devagar em água diluída, o RNA que as faz fabricar a proteína. Os oócitos que passaram a ter a proteína na membrana incharam e estouraram em minutos; os sem o RNA, o controle, não. Era um canal de água. O artigo saiu na Science em 1992, a proteína foi batizada de aquaporina-1 e Agre dividiu o Nobel de Química de 2003 “pela descoberta dos canais de água”. Hoje se conhecem treze aquaporinas humanas; a aquaporina-2, do rim, é inserida na membrana sob o comando de um hormônio, e é assim que o corpo regula quanta água o rim devolve ao sangue (sistema excretor).
Difusão: o movimento que ninguém empurra
Ninguém sopra o cheiro do café da cozinha até o quarto. As moléculas voláteis se movem sozinhas, batendo umas nas outras e nas moléculas do ar bilhões de vezes por segundo, em direções ao acaso. É o movimento térmico, a mesma agitação que a Física chama de temperatura. Numa região onde há muitas moléculas de café e pouca ao lado, mais moléculas cruzam a fronteira do lado cheio para o vazio do que ao contrário, só porque há mais moléculas de um lado para cruzar. O resultado líquido é um fluxo do mais concentrado para o menos concentrado, e é só isso que difusão significa. Nenhuma molécula procura o lado vazio; cada uma se move ao acaso, e a soma de muitos acasos tem direção. Quando as concentrações se igualam, as moléculas continuam se movendo tanto quanto antes; o que zera é o fluxo líquido. É o equilíbrio dinâmico: parado por fora, agitado por dentro.
Difusão, gradiente e transporte passivo
Difusão é o fluxo líquido de uma substância do local de maior para o de menor concentração, produzido pelo movimento térmico ao acaso das moléculas. Gradiente é a diferença de concentração entre dois pontos; é o gradiente, não a célula, que dá a direção. Transporte passivo quer dizer: a favor do gradiente, sem gasto de ATP. A energia que move as moléculas é a térmica, e a célula não a paga. “Passivo” não quer dizer lento nem fraco: o oxigênio que entra em cada célula sua neste instante entra por difusão, na velocidade certa.
O que acelera a difusão. Três fatores, todos previsíveis pelo mecanismo. Temperatura: mais quente, moléculas mais rápidas, difusão mais rápida; uma gota de corante se espalha mais depressa na água morna do que na gelada. Gradiente: quanto maior a diferença de concentração, mais moléculas sobram para cruzar de um lado, e maior o fluxo líquido. Tamanho da molécula: moléculas pequenas se movem mais depressa que grandes à mesma temperatura.
O que a limita: a distância. O tempo de difusão cresce com o quadrado da distância. Uma molécula de glicose atravessa 10 µm de citoplasma em cerca de sete centésimos de segundo, 1 mm em cerca de 12 minutos e 1 cm em quase um dia. Por difusão pura, sem correntes, uma gota de corante leva semanas para colorir um copo de água; o que se vê em minutos num copo real são correntes de convecção. É por isso que células são pequenas (a conta da superfície e do volume está em teoria celular e tipos de células), que o oxigênio precisa do sangue para chegar ao dedo do pé e que o café precisa do ar em movimento para chegar ao quarto.
Difusão simples. O O2 entra na célula por difusão simples: atravessa a bicamada por conta própria, a favor do gradiente. O gradiente existe porque as mitocôndrias consomem O2 sem parar, o que mantém a concentração baixa dentro, e o sangue repõe fora. O CO2 sai pelo mesmo motivo ao contrário: é produzido dentro e removido fora. Um colega que diga “a difusão do oxigênio gasta ATP, porque nada se move de graça” troca a fonte da energia: a que move as moléculas é térmica, e a célula gasta ATP para consumir o oxigênio nas mitocôndrias, não para fazê-lo atravessar a membrana.
Simples ou facilitada: a diferença aparece no gráfico
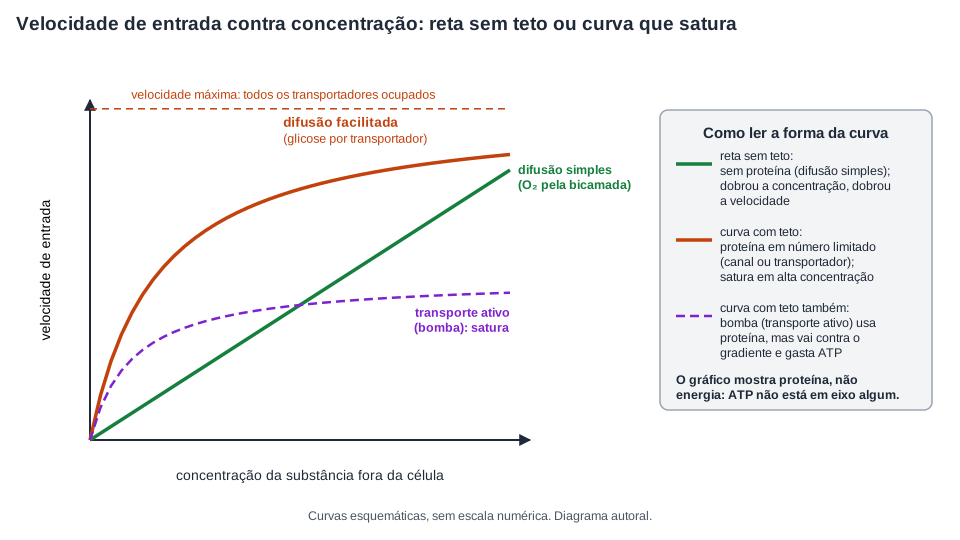
A glicose também entra na célula a favor do gradiente e sem ATP, mas não consegue atravessar a gordura: precisa de uma proteína integral. Íons entram e saem por canais, poros de proteína que se abrem e fecham. Glicose e aminoácidos entram por transportadores (ou permeases, ou carreadores), proteínas que ligam a molécula de um lado, mudam de forma e a soltam do outro. Nos dois casos o nome é difusão facilitada: passiva, sem ATP e a favor do gradiente, mas dependente de uma proteína.
difusão simples
difusão facilitada
atravessa
a bicamada, sozinha
uma proteína (canal ou transportador)
sentido
a favor do gradiente
a favor do gradiente
gasta ATP?
não
não
exemplos
O2, CO2, etanol, ureia
glicose (GLUT), aminoácidos, íons por canais, água por aquaporinas
velocidade × concentração
reta: dobrou a concentração, dobrou a velocidade
sobe e satura: há um número finito de proteínas
específica?
não: depende só da química da molécula
sim: cada proteína transporta um tipo de molécula
A diferença entre simples e facilitada aparece num gráfico de velocidade de entrada contra concentração externa, e é esse gráfico que a prova costuma cobrar.
Velocidade de entrada contra concentração externa. Na difusão simples (verde), dobrar a concentração fora dobra a velocidade, sem limite. Na difusão facilitada (laranja), a velocidade cresce e depois satura: todos os transportadores estão ocupados o tempo todo, e mais substância fora não entra mais depressa. Um transporte ativo por bomba (roxo) também satura, porque também usa proteínas em número finito: a forma da curva revela proteína, não energia. Curvas esquemáticas, sem escala. Diagrama autoral.
Conferência pelo caso-limite. Em concentração muito baixa, as duas curvas são quase retas, porque quase nenhum transportador está ocupado e a facilitada se comporta como se não houvesse limite. O teto só aparece quando há substância de sobra. É a mesma lógica da curva de velocidade contra concentração de substrato de uma enzima (proteínas e enzimas): um número finito de sítios. No rim, quando a glicose do sangue passa de certa concentração, como no diabetes sem controle, os transportadores do túbulo saturam e a glicose sobra na urina.
O item 81 do PAS 3 de 2014, do tipo C, perguntou o nome do processo que permite a passagem de uma substância do meio extracelular para o meio intracelular por intermédio de proteínas de membrana, ou permeases, entre pinocitose, difusão facilitada, exocitose e transporte ativo. Resposta: difusão facilitada. “Por intermédio de permeases”, sentido de entrada e nenhuma menção a gasto de energia ou a gradiente contrário fecham a opção. Pinocitose engloba líquido em vesículas, sem permease; exocitose é saída; transporte ativo exigiria a menção ao ATP e ao gradiente contrário. O item está reproduzido na lista de questões.
Proteína não é energia
“A difusão facilitada gasta ATP porque depende de proteínas” é um erro que custa item. Depender de proteína não é depender de energia. O critério que separa passivo de ativo é a direção em relação ao gradiente: a favor, sem ATP; contra, com ATP. A glicose entrando pelo GLUT a favor do gradiente é passiva, por mais proteína que use. O sódio saindo pela bomba contra o gradiente é ativo. A tabela de três perguntas (proteína? a favor ou contra? ATP?) decide qualquer caso.
Osmose: a água segue o soluto
Imagine um saquinho de celofane, uma membrana que deixa passar água mas não açúcar, cheio de água com açúcar e mergulhado num copo de água pura. Ele incha. Inverta: saquinho com água pura num copo de água com açúcar. Ele murcha. Se a sua regra foi “a água vai para onde tem menos água”, ela acertou os dois saquinhos e vai errar na primeira situação um pouco mais complicada, porque essa frase não é uma regra: é uma descrição que funciona só quando há um soluto e ele não atravessa. A regra segura conta o que não atravessa.
Osmose
Osmose é a difusão da água (o solvente) através de uma membrana seletivamente permeável, do meio com menor concentração de soluto para o meio com maior concentração de soluto. Quem se move é a água; a concentração que se compara é a das partículas dissolvidas que não atravessam a membrana. Não gasta ATP: é transporte passivo. A água pode atravessar pela bicamada (devagar) e pelas aquaporinas (depressa); usar um canal não muda a classificação.
Por que insistir em “soluto” e não em “água”? Três motivos. Primeiro, o sal não atravessa a bicamada: quando você põe uma célula em água salgada, o que muda de lado é a água, não o sal. “A osmose puxa o sal” descreve um movimento que não acontece. Segundo, o que decide a direção é o número de partículas dissolvidas, não o tipo: 1 mol de cloreto de sódio se dissolve em 2 mols de partículas (Na+ e Cl−) e conta o dobro de 1 mol de sacarose; “concentração de água” não captura isso. Terceiro, quando o soluto atravessa (o etanol, por exemplo), ele se difunde até se igualar dos dois lados e deixa de contar para a osmose: só o soluto retido cria a diferença. Por isso a Biologia mede a força osmótica de uma solução em osmóis por litro, partículas dissolvidas de qualquer tipo por volume. O plasma humano tem cerca de 290 mOsm/kg (faixa normal de 275 a 295); a água do mar, cerca de 1 000 mOsm/L.
O tubo em U. Duas colunas de água ligadas pelo fundo, separadas por uma membrana que deixa passar água e não açúcar. Do lado A, água pura; do lado B, água com açúcar. Moléculas de água cruzam a membrana nos dois sentidos, mas do lado A, sem soluto, há mais moléculas de água por volume batendo na membrana, e o fluxo líquido é de A para B. O nível de B sobe e o de A desce. O desnível não cresce para sempre: a pressão da coluna extra de B empurra água de volta, e o fluxo líquido para quando essa pressão equilibra a tendência osmótica. A pressão que seria preciso aplicar sobre a solução para impedir a entrada de água é a pressão osmótica da solução: quanto mais concentrada em soluto retido, maior. Para a água do mar, ela passa de 20 atmosferas; uma usina de dessalinização empurra a água do mar contra uma membrana com pressão maior que essa e faz a água atravessar ao contrário da osmose. Chama-se osmose reversa, e é cara em energia por esse motivo.
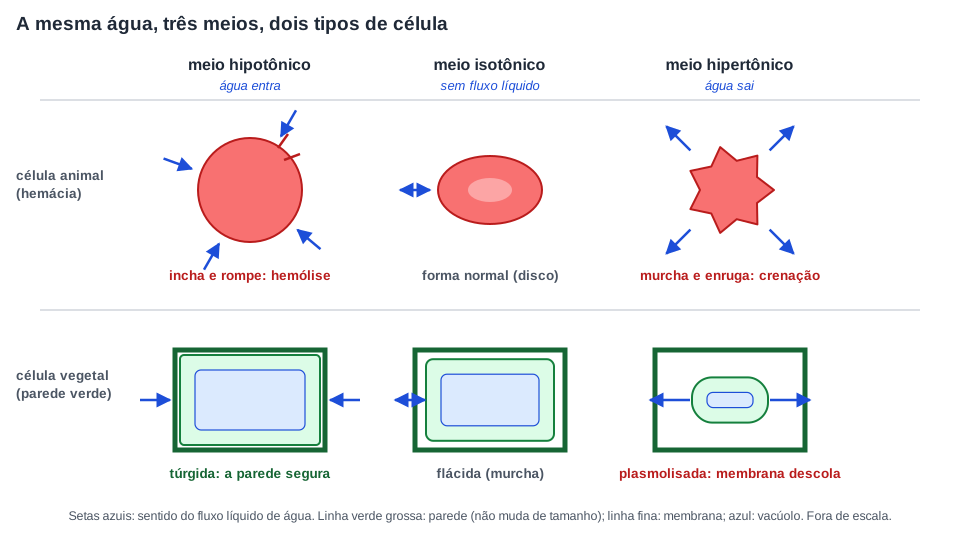
Hipotônico, isotônico, hipertônico. Compare a concentração de soluto do meio com a do citoplasma. Se o meio tem menos soluto que a célula, ele é hipotônico, e a água entra. Se tem mais, é hipertônico, e a água sai. Se tem o mesmo, é isotônico: a água cruza nos dois sentidos sem fluxo líquido, e o volume fica estável. As três palavras são relativas, sempre em par: a mesma solução de 0,9 % de sal é isotônica para uma hemácia e hipotônica para uma célula de bacalhau salgado. Um item que diga “a solução é hipertônica” sem dizer em relação a quê está incompleto.
"Hipertônico" não é "com mais água"
Hiper se refere ao soluto. Meio hipertônico é o que tem mais soluto (e, por consequência, menos água livre) que a célula; a água sai da célula. Meio hipotônico tem menos soluto; a água entra. Quem lê “hiper” como “mais água” inverte todas as previsões. Antes de julgar um item, traduza: hipertônico = mais soluto = água sai; hipotônico = menos soluto = água entra.
Hemácia e célula vegetal nos três meios
O que acontece com a célula depende de duas coisas: da tonicidade do meio e de ela ter ou não parede.
A mesma água, três meios, dois tipos de célula. Setas azuis mostram o sentido do fluxo líquido de água. Na célula vegetal, a linha grossa é a parede, que não muda de tamanho; a linha fina é a membrana e o retângulo azul é o vacúolo. Na plasmólise a membrana se descola da parede porque o conteúdo da célula encolheu. Esquema fora de escala. Diagrama autoral.
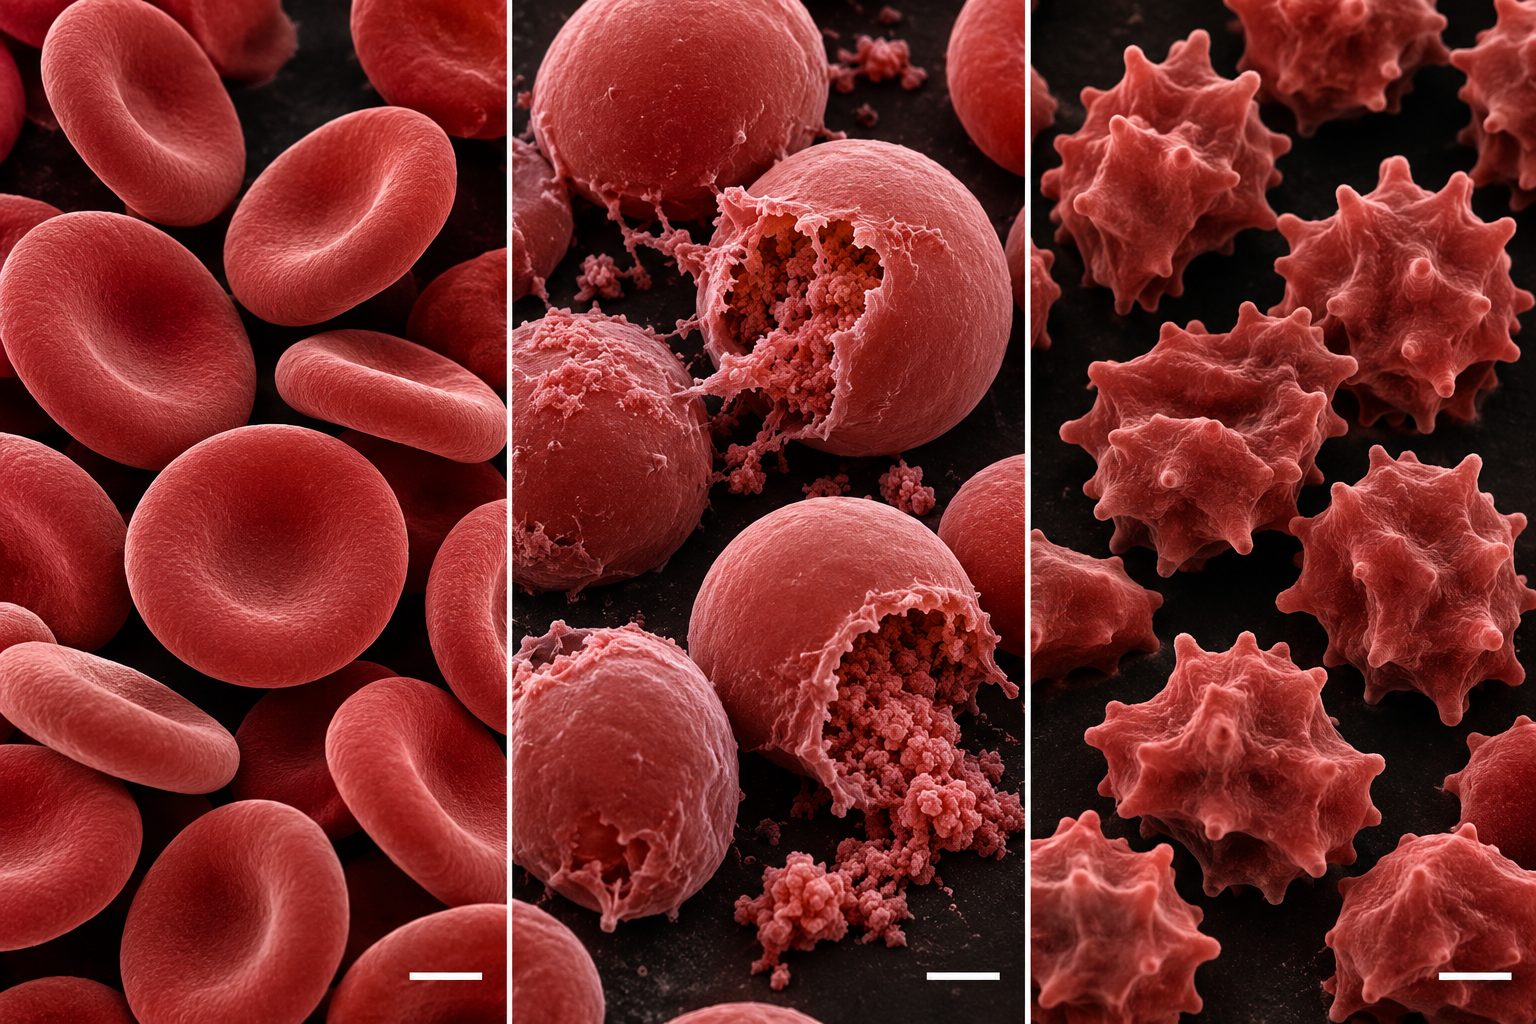
Célula animal. A hemácia é o exemplo clássico porque não tem parede e muda de forma à vista. Em meio hipotônico (água destilada), a água entra, a célula incha, vira uma esfera e rompe: hemólise. Em meio isotônico (soro a 0,9 %), nada muda: o disco bicôncavo continua disco. Em meio hipertônico (água do mar), a água sai, a célula murcha e a superfície enruga: crenação. O item 39 do PAS 1 de 2011, do tipo C, usou exatamente esse experimento: três lâminas de sangue, uma com solução hipotônica (I), uma isotônica (II) e uma hipertônica (III), e a pergunta de como os alunos constatariam o efeito da água do mar nas hemácias. A resposta é comparar as lâminas II e III. A água do mar é hipertônica, e seu efeito, a crenação, aparece na lâmina III; mas constatar um efeito exige um controle, e o controle é a lâmina isotônica, com a hemácia na forma normal. A lâmina I mostra hemólise, o efeito oposto. O item está reproduzido na lista de questões, com o texto-base original.
Célula vegetal. Em meio hipotônico, a água entra, o vacúolo cresce e a membrana pressiona a parede; a parede resiste, e a pressão com que o conteúdo empurra a parede (e que a parede devolve) é a pressão de turgor. A célula fica túrgida e não estoura. É o turgor que mantém uma folha esticada e um caule de alface firme: sem madeira, uma planta se sustenta com água sob pressão. Em meio isotônico, não há pressão contra a parede: a célula fica flácida, e a folha murcha. Em meio hipertônico, a água sai, o conteúdo encolhe e a membrana se descola da parede, que não encolhe: plasmólise. Se a célula plasmolisada volta a um meio hipotônico antes de morrer, a água entra de novo e a membrana se recola à parede: deplasmólise. É a alface que murcha com sal e volta a ficar crocante na água gelada.
É aqui que o item 115 do PAS 3 de 2023 se decide: “na célula vegetal, o processo de osmose sofre resistência da parede celular quando a célula está túrgida”, gabarito certo. A parede devolve a pressão e freia a entrada de água. A hemácia não tem esse freio.
Protozoários de água doce. Uma ameba ou um paramécio vive em água doce, um meio muito hipotônico, sem parede. A água entra sem parar. O que impede o rompimento é o vacúolo contrátil, uma bolsa que recolhe o excesso de água do citoplasma e a expulsa por contrações periódicas, com gasto de ATP. É a exceção que mostra o custo de viver sem parede em meio hipotônico: se a energia acabar, a célula incha. Mais sobre esses organismos em protozoários e protozooses.
Exemplo resolvido: classificar casos. Cinco células vão para a água destilada: uma bactéria do iogurte, uma levedura de padaria, uma célula da sua bochecha, uma célula de folha de alface e uma ameba. O que acontece com cada uma?
Bactéria (parede de peptidoglicano), levedura (parede de quitina) e alface (parede de celulose): a água entra, a célula incha até a membrana encostar na parede e para. Túrgidas, não estouram. A resposta é a mesma para as três porque o que segura é a existência de uma malha rígida, não o material dela. Célula da bochecha: sem parede, incha e rompe. Ameba: sem parede, mas expulsa continuamente o excesso de água pelo vacúolo contrátil; não estoura enquanto tiver ATP.
Conferência. Em meio hipertônico a conta inverte, e a parede deixa de proteger: as três células com parede plasmolisam, a célula da bochecha crena, e a ameba perde água do mesmo jeito, porque o vacúolo contrátil só resolve o excesso de água, não a falta.
Por que o soro é 0,9 %, e por que a água do mar não serve
O soro fisiológico tem 9 g de cloreto de sódio por litro, 0,9 %. Isso dá 154 mmol/L de Na+ e 154 mmol/L de Cl−: 308 milimols de partículas por litro no papel e, na prática, cerca de 290 mOsm/L, porque os íons não se comportam como partículas totalmente independentes. É quase exatamente a concentração de partículas do plasma. “Fisiológico” quer dizer isso: isotônico com o sangue. Um soro a 0,5 % faria as hemácias incharem e romperem; a 2 %, encolherem. O sangue não tem 0,9 % de sal (tem menos: o resto das partículas são outros íons, glicose, ureia). O que importa para a osmose é a contagem de partículas, não a identidade delas. O número vem de experimentos do fisiologista holandês Hartog Hamburger, nos anos 1880, que mediu em que concentração de sal as hemácias em suspensão paravam de romper; a história do soro está contada por Awad, Allison e Lobo em um artigo de revisão de 2008 na Clinical Nutrition.
Soro na boca. O soro de reidratação oral trata a desidratação por diarreia com água, sal e glicose. A fórmula da Organização Mundial da Saúde tem 245 mOsm/L, um pouco menos concentrada que o plasma: o intestino absorve Na+ junto com glicose, e a água segue os solutos absorvidos por osmose, do intestino (que ficou mais diluído) para o sangue. Se a solução fosse hipertônica, com sal ou açúcar demais, a água iria no sentido oposto, do sangue para o intestino, e a pessoa perderia ainda mais líquido. É por isso que a proporção de sal e açúcar do soro caseiro importa, e por isso o preparo segue a medida indicada pelo serviço de saúde, não uma estimativa. Na cólera, a toxina da bactéria faz as células do intestino secretar Cl−, a água segue o cloreto por osmose, e um doente sem tratamento pode perder de 10 a 20 litros por dia; a reidratação oral derrubou a mortalidade da doença de mais da metade dos casos para menos de 1 %.
Água do mar. Um náufrago num vídeo afirma: “Beber um pouco de água do mar não faz mal; afinal, 96,5 % dela é água. O corpo aproveita a água e joga o sal fora na urina.” O número está certo (a água do mar tem cerca de 3,5 % de sais) e a conclusão está errada. No intestino, a água do mar tem cerca de 1 000 mOsm/L contra uns 290 do plasma: o conteúdo intestinal fica hipertônico em relação ao sangue, e a água se move do sangue para o intestino. Diarreia, e mais desidratação. No sangue, o sal absorvido eleva a concentração de soluto do plasma; a água sai das células, inclusive dos neurônios. No rim, para “jogar o sal fora”, é preciso dissolvê-lo em urina, e o rim humano não produz urina mais concentrada em sal do que a própria água do mar. Para eliminar o sal de um litro de água do mar, o corpo gasta mais de um litro de água. O saldo é negativo: beber água do mar acelera a desidratação. As aves marinhas bebem água do mar e sobrevivem porque têm uma glândula acima dos olhos que excreta uma solução mais salgada que o mar, coisa que o nosso rim não faz. A exceção confirma a lógica: o que decide é a capacidade de concentrar o sal, não a porcentagem de água.
Água demais. O princípio virado do avesso. Uma equipe do Hospital Infantil de Boston colheu sangue de 488 corredores na chegada da Maratona de Boston de 2002 e publicou o resultado no New England Journal of Medicine em 2005: 13 % estavam com hiponatremia, sódio no plasma igual ou abaixo de 135 mmol/L, e três corredores em nível crítico, igual ou abaixo de 120 mmol/L. Os fatores associados foram ganho de peso durante a prova, consumo de mais de 3 litros de líquido e corrida com mais de 4 horas. O mecanismo é osmose: água em excesso dilui o plasma, que fica hipotônico em relação às células; a água entra nas células, inclusive nos neurônios, que ficam dentro de uma caixa de osso sem espaço para inchar. Confusão, convulsão e, em casos raros, morte. A orientação de hidratação em provas longas é assunto para o serviço médico da prova; o que esta página explica é o mecanismo.
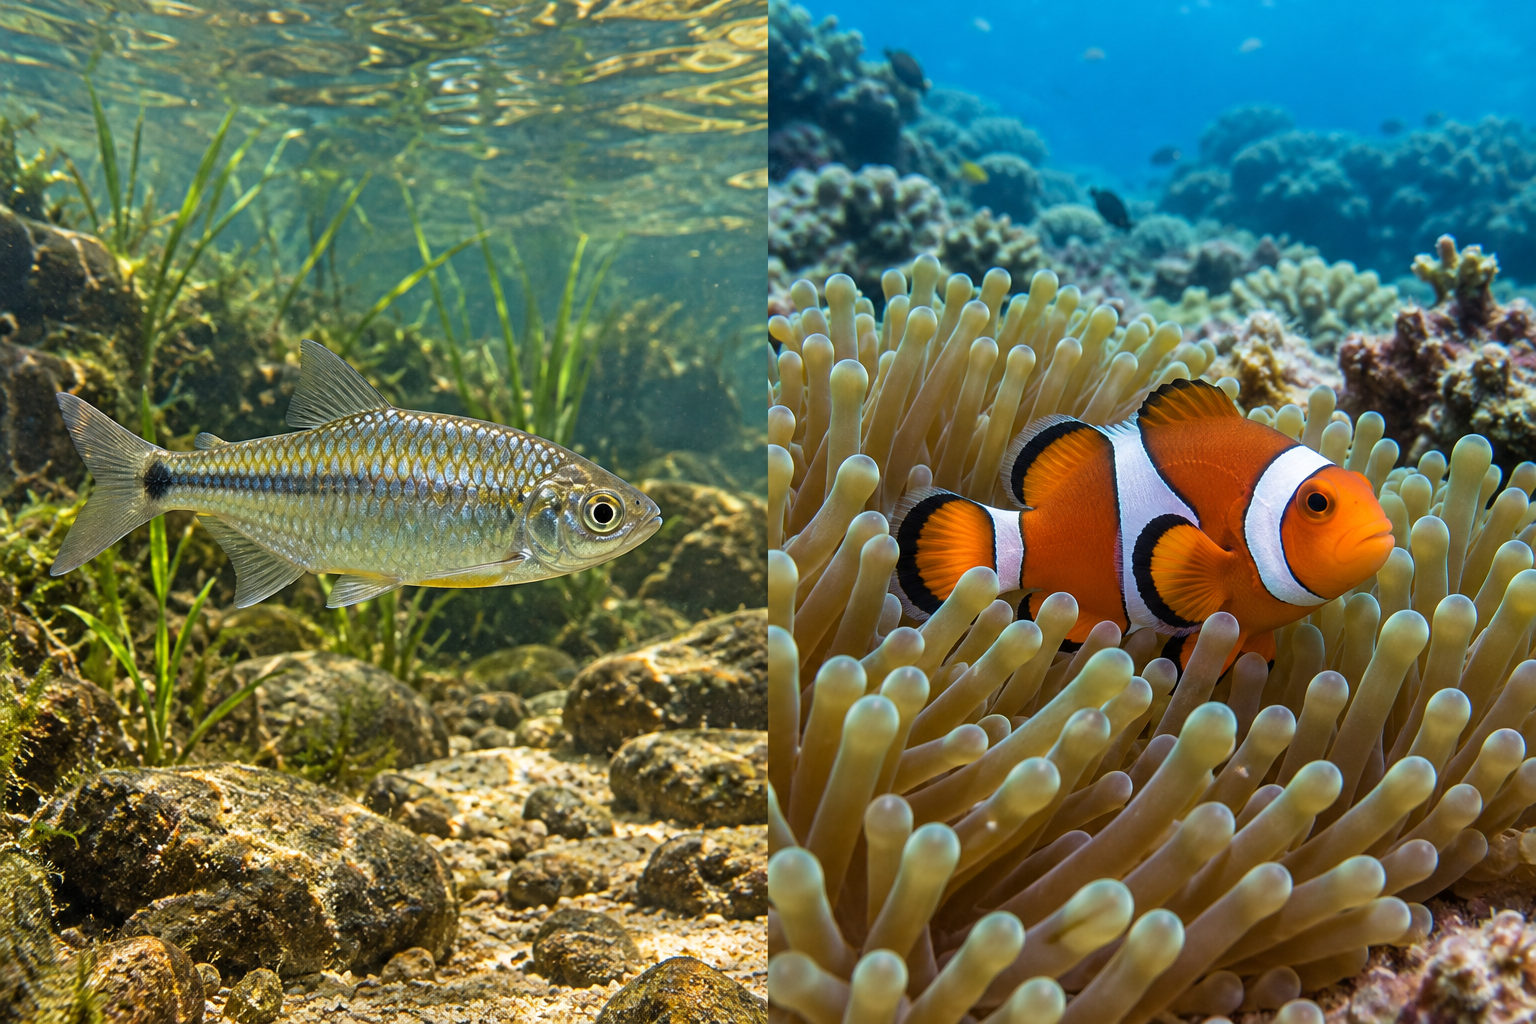
Peixe de água doce e peixe marinho. Um peixe de água doce vive num meio muito hipotônico: a água entra sem parar pelas brânquias, e o peixe produz urina abundante e diluída, enquanto células das brânquias captam sal do rio. Um peixe marinho vive num meio hipertônico (cerca de 1 000 mOsm/L contra uns 300 no sangue dele): perde água pelas brânquias, bebe água do mar e excreta o sal pelas brânquias, com urina escassa. Ponha um no ambiente do outro e o desequilíbrio mata em horas. A osmose é um fator limitante do ambiente tão real quanto a temperatura.
Raiz no solo salino. Regue uma planta com água salgada e o solo fica hipertônico em relação à raiz: a água sai da raiz para o solo, a célula perde o turgor e, se a diferença for grande, plasmolisa. A planta “morre de sede” com o solo molhado. A cada rega, a água evapora e o sal fica, e o solo se torna cada vez mais hipertônico: é a salinização de solos irrigados, um problema agrícola de regiões secas. Como a raiz absorve água e sais em condições normais está em fisiologia vegetal.
Charque, bacalhau e doce em calda: o sal e o açúcar não esterilizam, desidratam
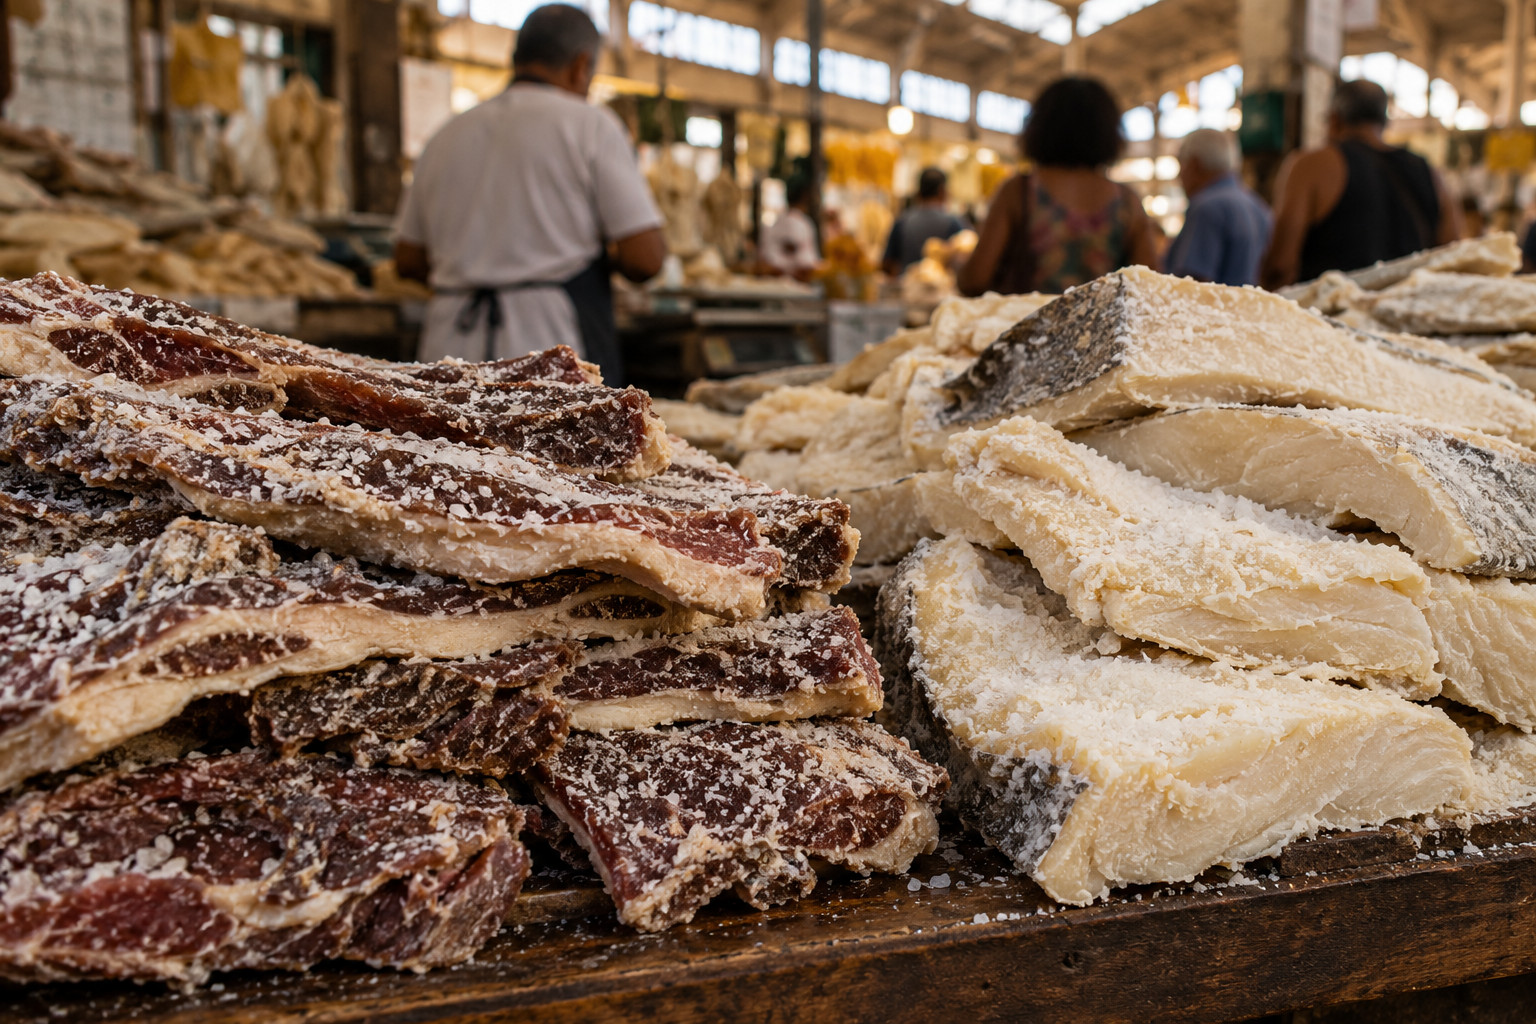
A Tabela Brasileira de Composição de Alimentos (TACO, 4.ª edição, NEPA/Unicamp, 2011) registra, no charque cru, cerca de 5,9 g de sódio em 100 g de carne, o equivalente a uns 15 g de sal, uma colher de sopa cheia, em cada 100 g; a umidade cai de 73 % na carne bovina crua para 44,5 % no charque. No bacalhau salgado cru, mais de um quinto da massa é mineral, quase tudo sal, e a umidade é de 47,9 %. Para uma bactéria ou um fungo que caia nessa carne, o ambiente é um meio hipertônico extremo: a água sai das células do microrganismo, o citoplasma se concentra e as reações que o fariam se multiplicar param. O sal não mata todos: muitos ficam vivos e desidratados, e é por isso que carne-seca úmida ou mal salgada estraga. Ao dessalgar o bacalhau em água por um dia, a osmose corre ao contrário: a água entra no peixe (ele ganha massa) e o sal, agora dissolvido na água do pote, se difunde para fora; o bacalhau refogado da mesma tabela tem 65,9 % de umidade e um quarto dos minerais do cru. O açúcar faz o mesmo em goiabadas, doces em calda e geleias: uma calda com mais açúcar do que água é hipertônica para qualquer mofo. Mel e leite condensado são a mesma ideia; é por isso que o mel não estraga na despensa, mas mofa se pegar umidade.
Esse mecanismo foi cobrado três vezes na primeira etapa do PAS, sempre a partir de um texto sobre alimento. O item 85 de 2005 afirmou que, na preparação da carne-seca e salgada, o excesso de sal torna o ambiente desfavorável à sobrevivência de bactérias, fungos e outros organismos, e que pouca água e muito sal retardam significativamente a decomposição: certo. Repare no verbo: retardam, não eliminam. Em 2011, dois itens no mesmo caderno, sobre um texto a respeito da história do sal. O item 48 disse que alimentos salgados não se deterioram facilmente porque os microrganismos foram eliminados durante a salga: errado, porque troca o mecanismo; o sal desidrata e inibe, não elimina. O item 51 disse que salgar os alimentos para conservá-los tem como objetivo promover, por processo passivo, a desidratação deles: certo, com as duas palavras técnicas exatas, “passivo” e “desidratação”. Os três itens estão na lista de questões, com os textos-base.
Dois deslizes que pagam item em osmose
Trocar o viajante: quem atravessa a membrana é a água. “O sal entra na célula por osmose” já é erro, e “os microrganismos foram eliminados durante o processo de salga” foi a forma que a troca tomou num item real (item 48 de 2011): o sal não entra nem mata; a água sai. Inverter a direção: a água vai para o meio mais concentrado em soluto. “Por ser transporte passivo, a osmose desloca a água do meio mais concentrado para o menos concentrado” tem a primeira metade certa e a segunda invertida; meia verdade embalando uma inversão é padrão de banca.
Batata na balança: ler o experimento e calcular a variação de massa
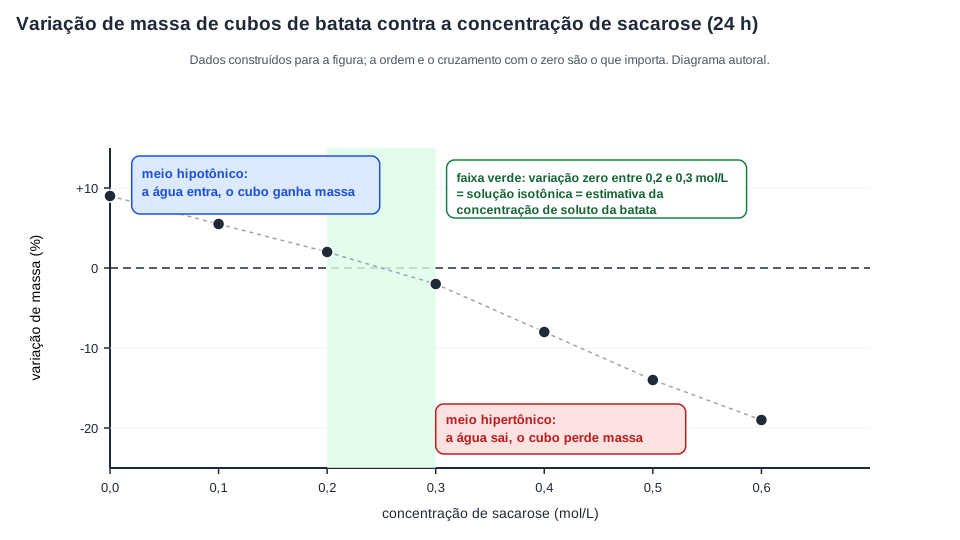
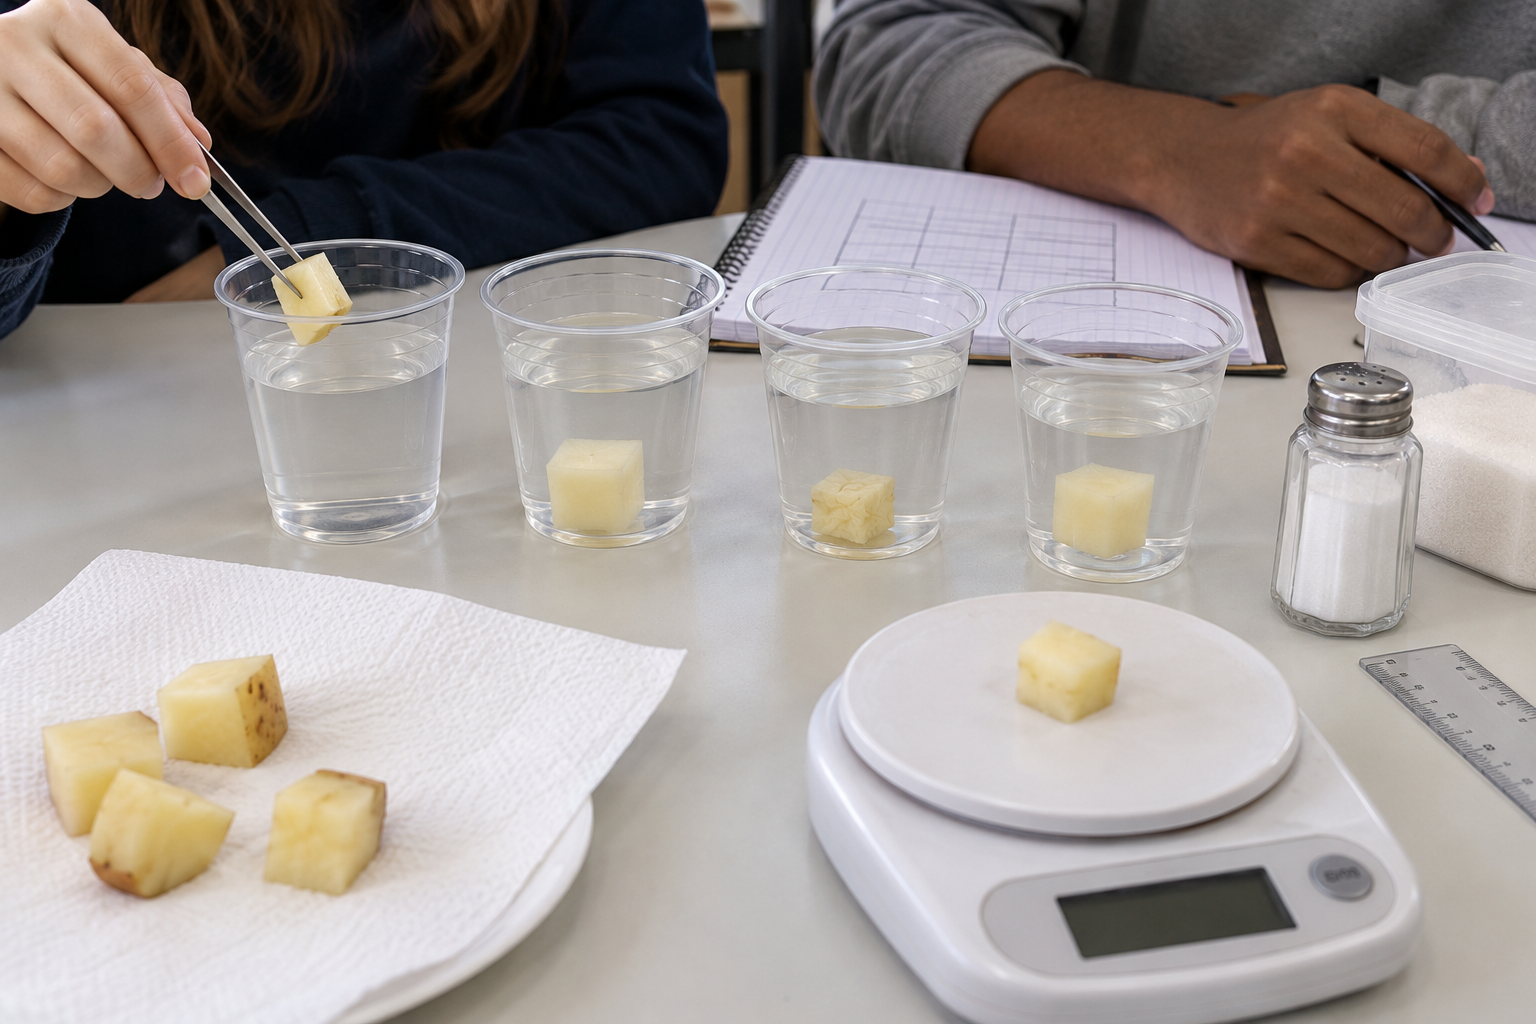
Antes de ler o resultado, preveja: em cada pote, a massa vai aumentar, diminuir ou ficar igual? Ordene os quatro do maior ganho à maior perda. Depois compare com faixas típicas de um pote-piloto (os seus números serão outros; a ordem é o que a previsão precisa acertar).
O cubo em água fica túrgido e rígido, quebra com estalo; o cubo em sal 10 % fica mole e dobra sem quebrar. O pote (b) quase não muda a massa: a solução a 1 % é quase isotônica com o citoplasma da batata, o que diz algo sobre a concentração de soluto dentro dela. O cubo em água não incha indefinidamente porque cada célula tem parede: o turgor freia a entrada.
O sinal dá a direção (negativo: perdeu água; positivo: ganhou); o módulo dá a intensidade. Usa-se porcentagem, e não a diferença em gramas, porque cubos de tamanhos diferentes só são comparáveis em porcentagem: 0,9 g num cubo de 12 g e 0,9 g num cubo de 40 g não significam o mesmo.
Conferência. Se a batata em água pura fosse uma hemácia, incharia até romper; ela para em uns 7 % porque cada célula tem parede. E a perda de 25 % em sal a 10 % é coerente com a batata ser 83 % água: sobrou muita água dentro, e a saída para quando a concentração de soluto dentro, agora maior, se aproxima da de fora.
O gráfico que estima a concentração de dentro. Repita o experimento com uma série de soluções de sacarose de concentrações crescentes e marque a variação percentual de massa contra a concentração. Os pontos descem: ganho de massa nas soluções diluídas, perda nas concentradas. Onde a curva cruza o zero, a solução é isotônica com o citoplasma da batata, e esse ponto é uma estimativa da concentração de soluto de dentro dela.
Variação percentual de massa de cubos de batata contra a concentração de sacarose do meio, após 24 horas. À esquerda do zero a água entra (meio hipotônico); à direita, sai (hipertônico). O cruzamento com o zero, entre 0,2 e 0,3 mol/L, é a concentração isotônica, uma estimativa da concentração de soluto do citoplasma da batata. Dados construídos para a figura. Diagrama autoral.
Dois cuidados de leitura. A massa não separa água que saiu de sal que entrou: o experimento permite afirmar a direção e a ordem, não que “o sal entrou na batata”. E réplicas importam: três cubos por condição, da mesma batata, com a mesma secagem, mostram quanto a medida varia entre cubos iguais; se as faixas de duas condições se sobrepõem, os dados não distinguem as duas.
Outros experimentos escolares com a mesma lógica. Um ovo cru deixado dois dias em vinagre perde a casca (o ácido dissolve o carbonato de cálcio) e fica envolvido só pela membrana da casca; em água ele incha, em xarope de açúcar murcha. É uma célula gigante de mentira: a membrana da casca não tem proteínas de transporte nem gasta ATP, e modela só a osmose. Um saco de celofane com solução de amido, mergulhado em água com lugol (iodo), fica azul-escuro por dentro, e a água de fora não: o iodo, pequeno, atravessa a membrana; o amido, grande, não. É a permeabilidade seletiva vista a olho nu, e mostra que a passagem depende do tamanho e da natureza da molécula. Hemácias em três soluções ao microscópio reproduzem o item de 2011. Batata ou cenoura em água e em sal reproduzem a balança. Em todos, a pergunta é a mesma: quem se moveu, para onde e por quê.
Transporte ativo: subir contra o gradiente custa ATP
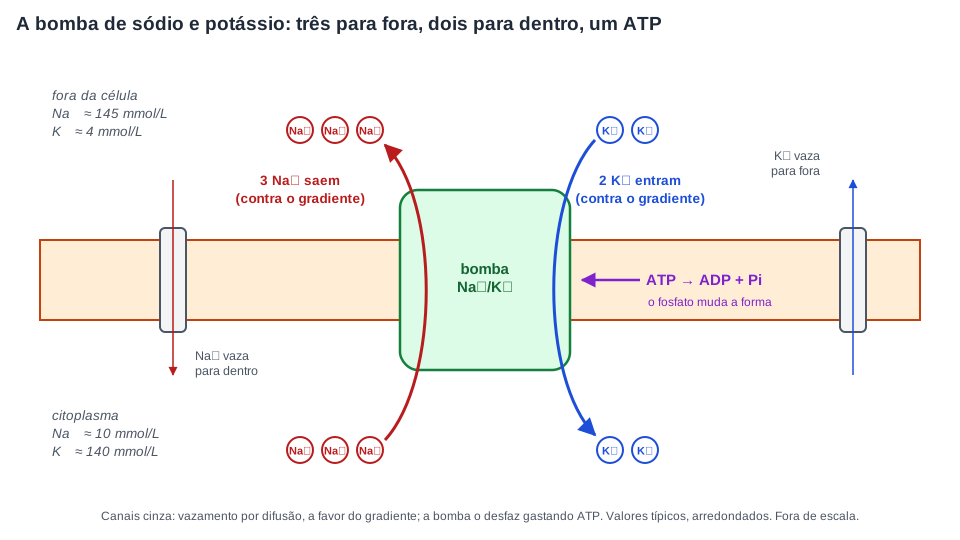
Dentro de um neurônio seu há cerca de 10 mmol/L de Na+ e uns 140 mmol/L de K+; no líquido de fora, cerca de 145 mmol/L de Na+ e 4 mmol/L de K+. A membrana tem canais por onde os dois íons vazam, devagar. Se só houvesse difusão, em pouco tempo o sódio de fora entraria, o potássio de dentro sairia, e as concentrações se igualariam. Um neurônio com as concentrações igualadas não dispara. O neurônio mantém o desequilíbrio a vida inteira; logo, algo está faltando na descrição.
A difusão só faz uma coisa: desfazer diferenças. O que mantém o desequilíbrio é uma proteína integral que move íons contra o gradiente, do lado onde há menos para o lado onde há mais, e paga por isso com ATP: a bomba de sódio e potássio. A cada ciclo, ela liga três Na+ do lado de dentro, recebe um fosfato de uma molécula de ATP, muda de forma, solta os três Na+ do lado de fora, liga dois K+ de fora, perde o fosfato, volta à forma original e solta os dois K+ dentro. Três para fora, dois para dentro, um ATP. O balanço de cargas (sai uma carga positiva a mais por ciclo) deixa o interior da célula ligeiramente negativo em relação ao exterior, e é esse desequilíbrio que o sistema nervoso usa para gerar o impulso nervoso.
A bomba de sódio e potássio. A cada ATP, três Na⁺ saem e dois K⁺ entram, os dois contra os gradientes que os canais de vazamento (cinza), por difusão, tendem a desfazer. A bomba não "sabe" que precisa bombear: a fosforilação pelo ATP muda a forma da proteína, e a mudança de forma move os íons. Concentrações típicas, arredondadas. Esquema fora de escala. Diagrama autoral.
O custo é alto. Uma revisão publicada por Rolfe e Brown na Physiological Reviews em 1997 estimou que, do oxigênio que um mamífero em repouso consome para produzir ATP, 19 a 28 % vão para a bomba de sódio e potássio: da ordem de um quinto a um quarto da conta de energia de quem está sentado numa cadeira. Em neurônios, que disparam o tempo todo, a fração é bem maior, porque quase todo o custo de disparar e de receber sinais é o custo de devolver Na+ para fora e K+ para dentro. A enzima foi identificada em 1957 pelo dinamarquês Jens Skou, em nervos de caranguejo, e lhe valeu metade do Nobel de Química de 1997.
Transporte ativo
Transporte ativo é o transporte contra o gradiente de concentração, feito por uma proteína (bomba) com gasto direto de ATP. O que o define é a direção em relação ao gradiente e o gasto de energia, não a velocidade: a difusão do O2 é passiva e rapidíssima; a bomba é ativa e trabalha íon a íon. Transporte ativo secundário: a substância sobe contra o gradiente dela, mas a energia vem de outro íon descendo o gradiente que uma bomba construiu; o ATP foi gasto antes, pela bomba.
A escada rolante, e onde a analogia falha. Pense numa escada rolante que desce. Descer nela é o transporte passivo: você chega embaixo sem gastar nada, porque o movimento da escada (o gradiente) já vai naquele sentido; é a difusão simples. Descer por uma escada comum ao lado exige uma escada (a proteína), mas continua sem custo: difusão facilitada. Subir pela escada rolante que desce é o transporte ativo: cada degrau custa esforço, e se você parar de pagar, desce de novo. A analogia falha em três pontos. Na escada, o “para baixo” é um só; na célula, o Na+ e o K+ têm gradientes em sentidos opostos, e a mesma bomba sobe os dois. A escada move qualquer pessoa; a bomba move só três Na+ e dois K+, e nada mais. E a analogia sugere que passivo é “deixar-se levar” devagar, enquanto a difusão do oxigênio pela bicamada é um dos processos mais rápidos da célula. A escada serve para a direção; para velocidade, não serve.
O gradiente como estoque de energia: transporte ativo secundário. O gradiente de Na+ que a bomba mantém é como água represada, e outras proteínas o usam. No intestino, o transportador SGLT1 deixa dois Na+ entrarem a favor do gradiente e, no mesmo movimento, carrega uma glicose contra o gradiente dela, do intestino com pouca glicose para a célula com muita. É assim que o soro de reidratação oral funciona (a glicose está na fórmula para puxar o sódio, e a água vem atrás dos dois) e é assim que o rim recupera a glicose que seria perdida na urina. A célula vegetal usa bombas de prótons para encher o vacúolo de soluto, e é essa concentração que segura a água dentro e mantém o turgor; a raiz absorve sais do solo contra o gradiente pelo mesmo tipo de mecanismo, o que explica por que ela gasta ATP e precisa de oxigênio, e por que uma planta em solo encharcado, sem oxigênio na raiz, absorve mal os nutrientes. A batata em água pura não “dilui” o próprio citoplasma até igualá-lo ao pote: os solutos ficam retidos, a parede freia a entrada de água e as bombas repõem o pouco que vaza.
Exemplo resolvido: ativo ou passivo, pelo critério certo. Classifique cada transporte como difusão simples, difusão facilitada, osmose, transporte ativo ou transporte ativo secundário, respondendo três perguntas na ordem: passa por proteína? a favor ou contra o gradiente? gasta ATP diretamente? (I) O2 entrando numa célula muscular durante a corrida. (II) K+ saindo de um neurônio por um canal, do lado com 140 mmol/L para o lado com 4 mmol/L. (III) Glicose entrando numa célula muscular por um transportador GLUT depois de uma refeição. (IV) Na+ saindo de uma célula pela bomba, de 10 para 145 mmol/L. (V) Água entrando numa hemácia posta em água destilada. (VI) Glicose entrando numa célula do intestino junto com Na+, de um intestino com pouca glicose para uma célula com muita.
(I) Difusão simples: sem proteína, a favor do gradiente (o músculo consome O2 e o mantém baixo dentro), sem ATP. (II) Difusão facilitada: por canal, a favor (de 140 para 4), sem ATP; ser íon não a torna ativa. (III) Difusão facilitada: transportador, a favor (a glicose do sangue está alta depois da refeição e a célula a consome), sem ATP. (IV) Transporte ativo primário: bomba, contra (de 10 para 145), ATP direto. (V) Osmose: água, a favor do seu próprio gradiente (do meio sem soluto para o citoplasma com soluto), sem ATP; pela bicamada e pelas aquaporinas. (VI) Transporte ativo secundário: a glicose sobe contra o gradiente dela, mas a energia vem do Na+ descendo o gradiente que a bomba (IV) mantém.
Conferência pelos casos-limite. Em (III), se a célula parasse de consumir glicose, o gradiente desapareceria e a entrada pararia: típico de transporte passivo, que depende do gradiente existir. Em (IV), se o ATP acabasse (um veneno como o cianeto bloqueia a respiração), a bomba pararia, o Na+ vazaria para dentro por difusão, a água o seguiria por osmose e a célula incharia. Os dois casos-limite distinguem passivo de ativo melhor do que qualquer velocidade.
"Ativo é o rápido; passivo é o lento"
Os dois adjetivos falam de direção em relação ao gradiente e de energia, não de velocidade. A difusão do oxigênio é passiva e instantânea na escala da célula; a bomba é ativa e trabalha molécula a molécula. Um item que ofereça “ativo porque é rápido” ou “passivo porque é lento” está usando o critério errado. Mesmo erro, outra roupa: “a bomba de sódio e potássio é um tipo de osmose”. Osmose é água a favor do gradiente, sem ATP; a bomba move íons contra o gradiente, com ATP. Nada em comum além da membrana.
Quando a membrana engole: endocitose e exocitose
Um neutrófilo do seu sangue tem uns 12 a 15 µm; uma bactéria como a Escherichia coli, uns 2 µm. O neutrófilo destrói a bactéria por dentro. Nenhum canal nem transportador deixa passar algo tão grande. A célula resolve dobrando a própria membrana.
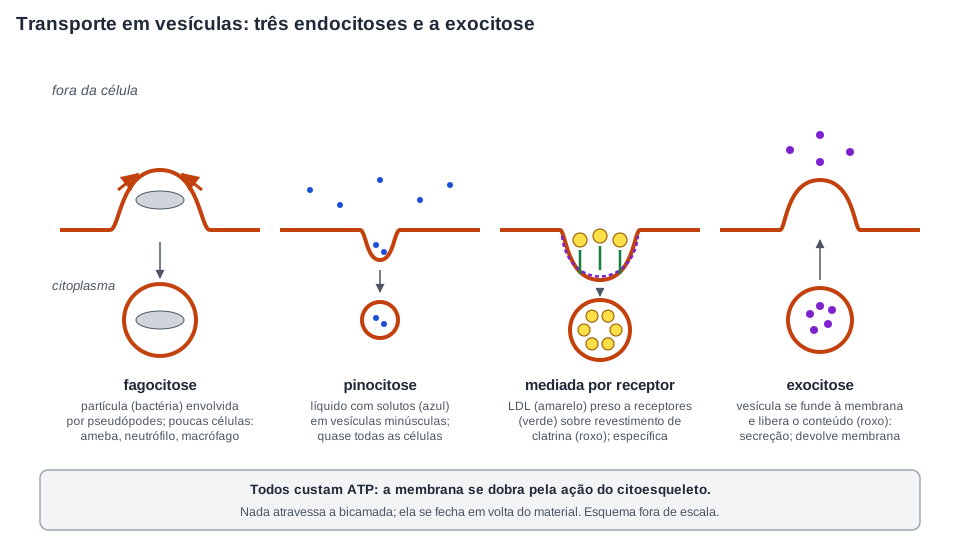
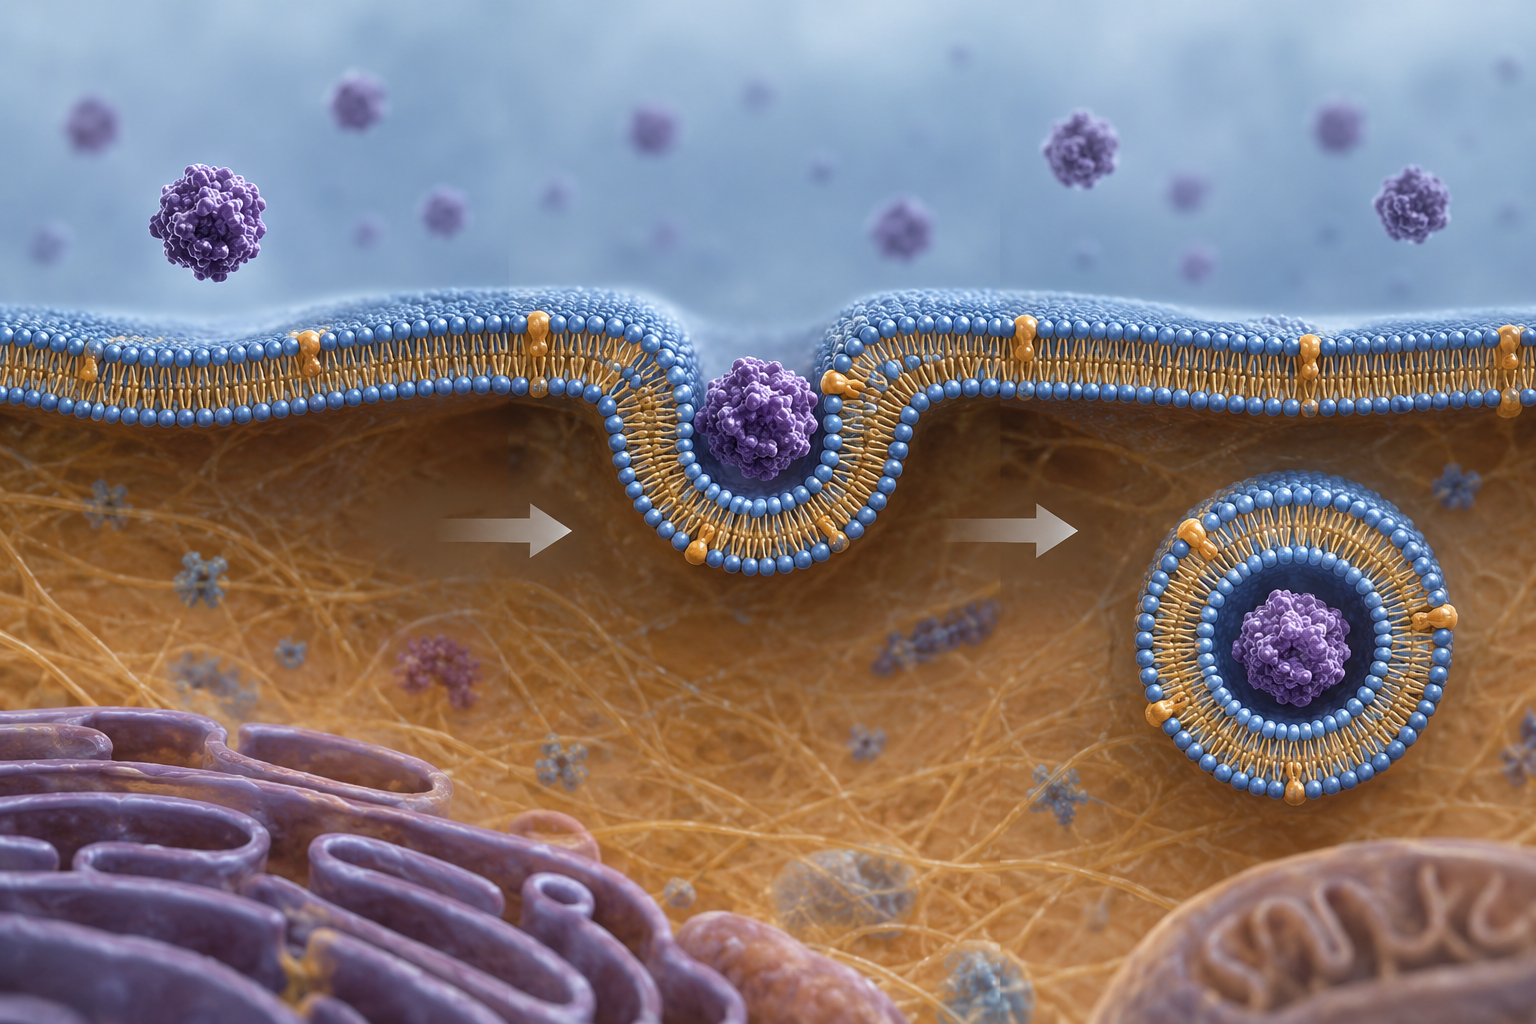
Na endocitose, um trecho da membrana se curva para dentro em torno do material, as bordas se encontram e se fundem, e o que estava fora fica dentro de uma bolsa de membrana, uma vesícula, no citoplasma. Nada atravessou a bicamada; a bicamada é que se fechou em volta. A curvatura é produzida por proteínas do citoesqueleto e custa ATP: endocitose é sempre ativa, e “a favor do gradiente” não se aplica a uma partícula envolvida por membrana. Há três modalidades, e a diferença entre elas está no conteúdo da vesícula, não em quem a faz.
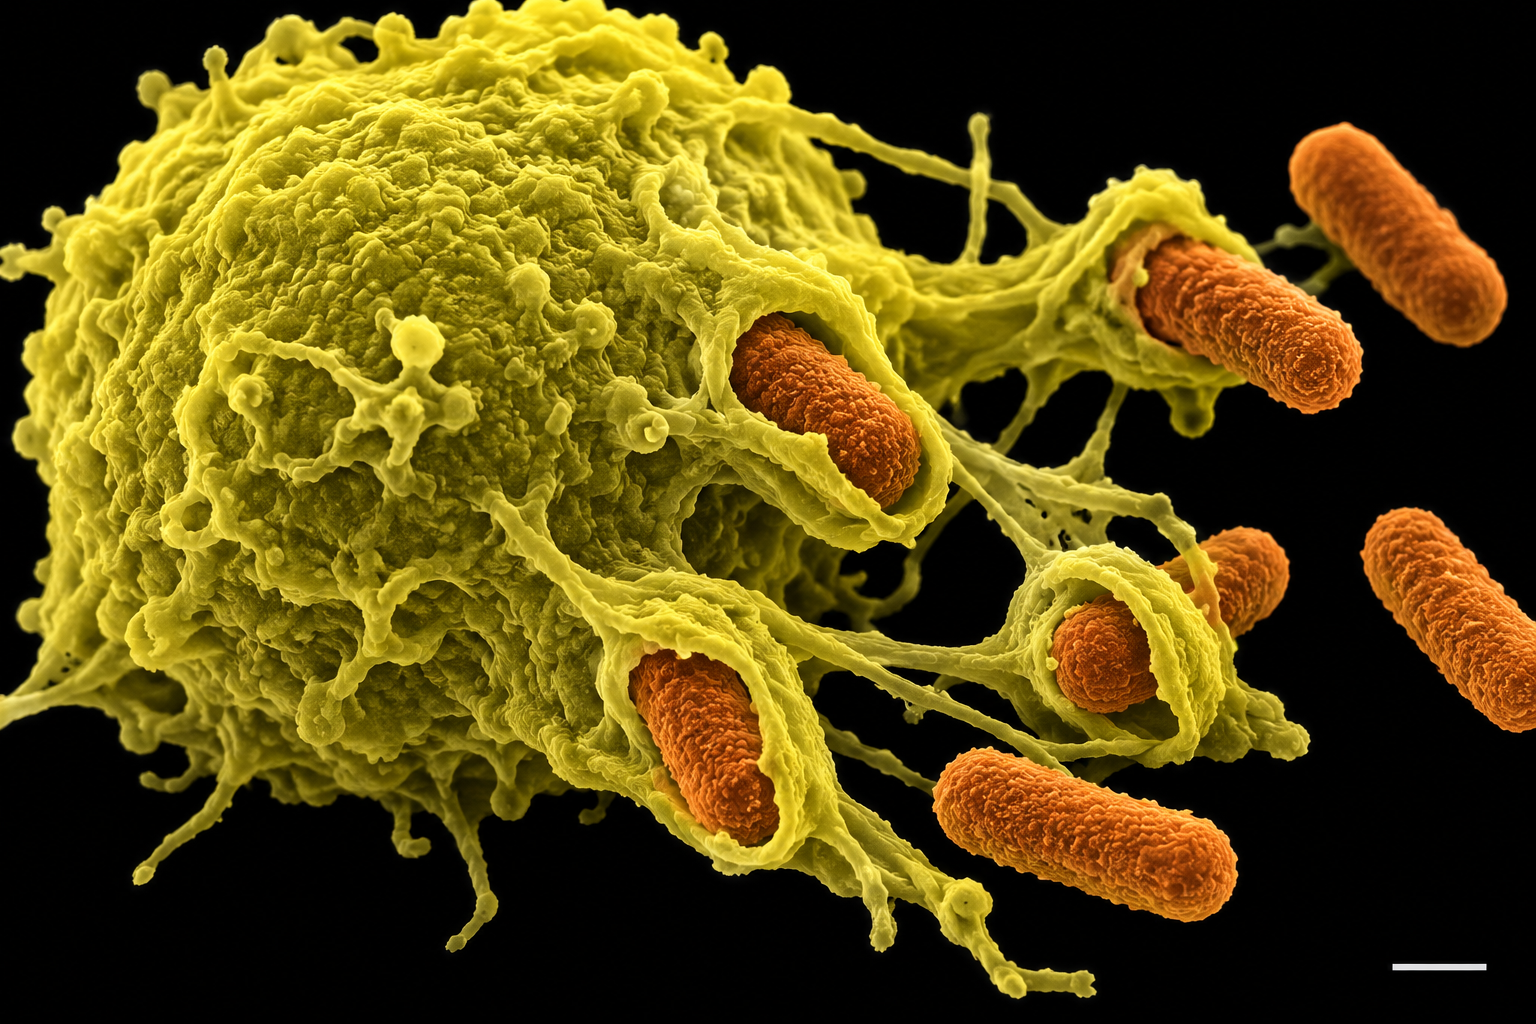
Fagocitose (“comer”): a célula envolve uma partícula (uma bactéria, um resto de célula morta, um grão de poeira no pulmão) com prolongamentos da membrana, os pseudópodes, e forma uma vesícula grande, o fagossomo. É como a ameba se alimenta, mas no seu corpo é sobretudo um mecanismo de defesa e limpeza: os neutrófilos (metade ou mais dos seus glóbulos brancos) e os macrófagos fagocitam bactérias o dia inteiro, e o pus de uma ferida é, em boa parte, neutrófilos que morreram fazendo isso. Poucos tipos de célula fagocitam. A fagocitose como parte da defesa do corpo está em vacinas e soros.
Pinocitose (“beber”): a membrana invagina em vesículas minúsculas cheias do líquido de fora, com o que estiver dissolvido nele, sem escolher. Quase todas as células fazem, continuamente. Não é “absorver água”: água entra por osmose; a pinocitose traz solutos, e um pouco de líquido junto.
Endocitose mediada por receptor: proteínas receptoras na face externa ligam uma molécula específica, os receptores se agrupam numa depressão revestida por dentro por uma proteína chamada clatrina, e a depressão se fecha em vesícula, concentrando a molécula captada muito acima do que a pinocitose traria. É assim que o colesterol chega às suas células: ele circula no sangue empacotado em partículas de LDL, que se ligam ao receptor de LDL e entram em vesículas. Michael Brown e Joseph Goldstein descreveram esse caminho nos anos 1970 e receberam o Nobel de Fisiologia ou Medicina de 1985; pessoas com o receptor defeituoso têm LDL muito alto desde a infância. O LDL como partícula de transporte de lipídios está em lipídios.
O que acontece com a vesícula? Na maioria dos casos ela se funde com um lisossomo, a bolsa de enzimas digestivas da célula, e vira um vacúolo digestório: a bactéria é desmontada, o LDL libera o colesterol, e o que não serve é devolvido para fora. As organelas desse caminho estão em organelas celulares. O último passo, devolver para fora, é o caminho inverso.
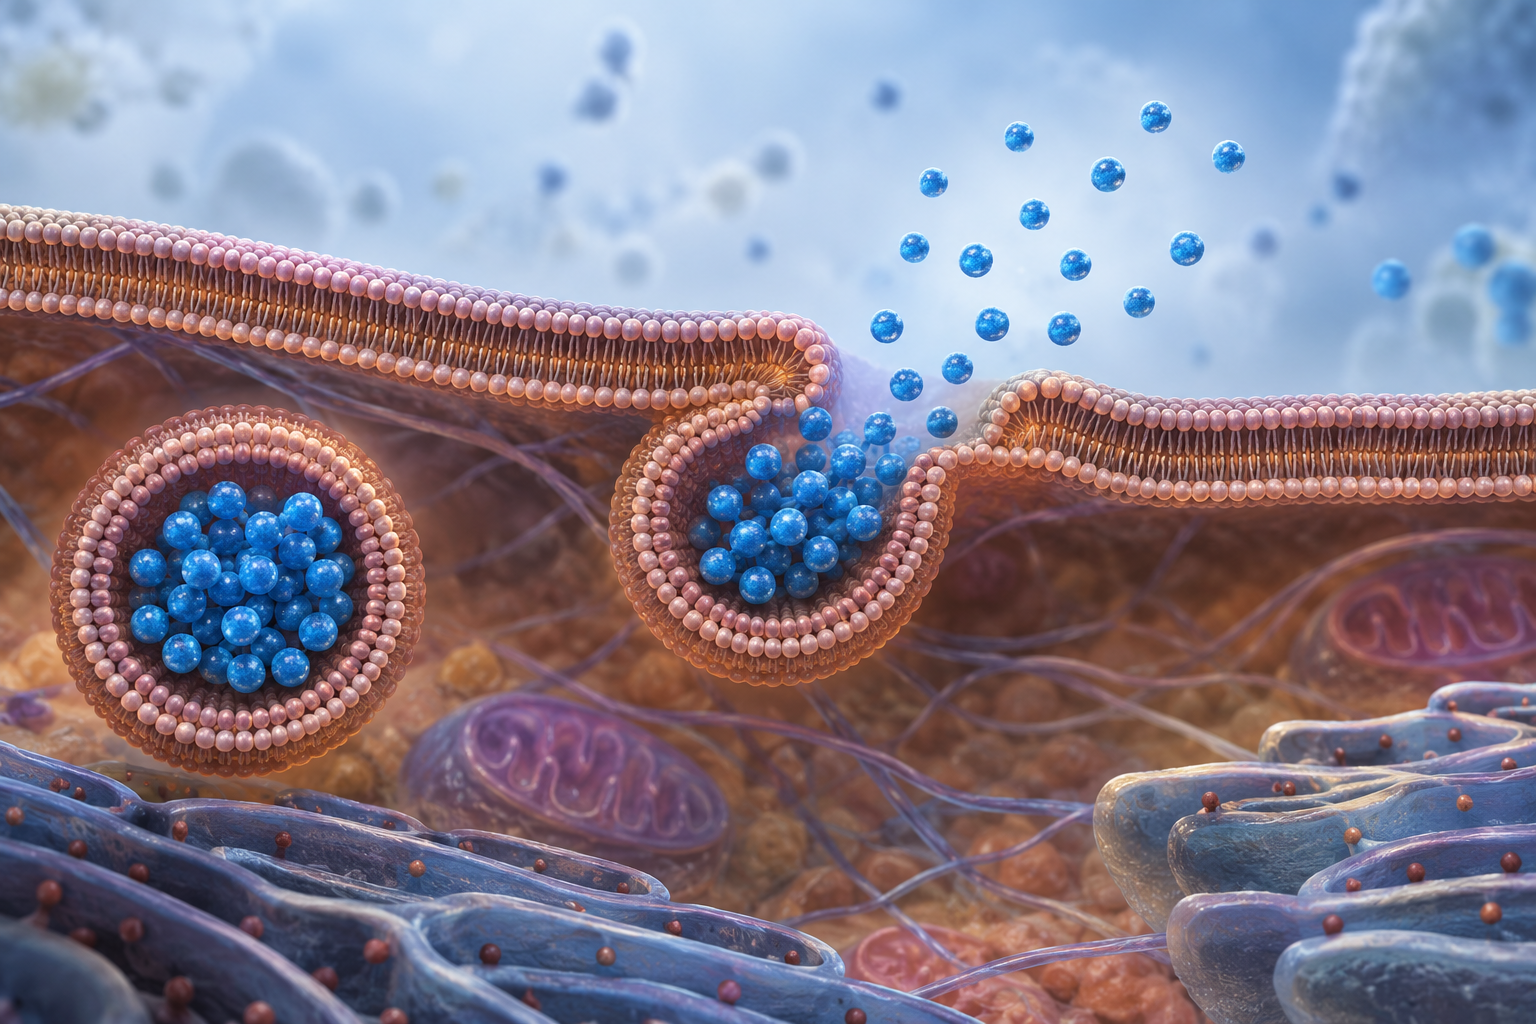
Na exocitose, uma vesícula do citoplasma se aproxima da membrana, funde-se com ela e despeja o conteúdo para fora, e a membrana da vesícula passa a fazer parte da membrana plasmática. É assim que a célula secreta: a insulina sai das células do pâncreas em vesículas que se fundem com a membrana quando a glicose do sangue sobe; os neurotransmissores saem do neurônio por exocitose quando o impulso chega (sistema nervoso); as enzimas digestivas, o muco e os anticorpos saem do mesmo jeito. Exocitose também gasta ATP. E ela fecha um balanço que a endocitose abriria: uma célula que engolisse membrana o tempo todo encolheria; a exocitose devolve a membrana, e um macrófago recicla o equivalente à sua superfície inteira em menos de uma hora.
Transporte em vesículas. Nas três endocitoses (fagocitose, pinocitose e mediada por receptor) a membrana se dobra para dentro e se fecha em torno do material; na exocitose uma vesícula se funde com a membrana e libera o conteúdo. Cinza: partícula (bactéria); azul: solutos do líquido; amarelo: LDL preso a receptores (verde) sobre um revestimento de clatrina (roxo pontilhado); roxo: produto secretado. Todos custam ATP. Esquema fora de escala. Diagrama autoral.
O item 83 do PAS 1 de 2015 mostrava uma figura com cinco etapas numeradas: uma bactéria em forma de bastão sendo envolvida pela membrana (1), uma vesícula pequena com enzimas (2) se fundindo à vesícula que contém a bactéria (3), a vesícula com o conteúdo fragmentado (4) e uma vesícula se fundindo à membrana e liberando os fragmentos para fora (5). O item afirmava que 5 representa o fenômeno de pinocitose, associado à absorção de partículas de água. Gabarito: errado, por dois motivos. A etapa 5 é exocitose, saída de resíduos; e pinocitose não é absorção de água, é captura de líquido com solutos em vesículas; água entra por osmose. O item está na lista de questões, com a descrição da figura.
Exemplo resolvido: critique a argumentação. Um resumo diz: “Fagocitose é o processo pelo qual organismos unicelulares, como a ameba, comem; pinocitose é o processo pelo qual as células bebem água. Células humanas não fazem nenhum dos dois, porque recebem nutrientes pelo sangue.” Critique as três afirmações.
A primeira está parcialmente certa e mal generalizada: a ameba se alimenta por fagocitose, mas a definição é a formação de uma vesícula grande em torno de uma partícula, e no corpo humano ela é feita por neutrófilos e macrófagos como defesa; a bactéria engolida não é alimento, é ameaça. A segunda erra o objeto: a água entra na célula por osmose, pela bicamada e pelas aquaporinas; a pinocitose traz solutos dissolvidos em vesículas minúsculas, e o líquido vem junto. A terceira erra duas vezes: células humanas fazem fagocitose (neutrófilos, macrófagos), pinocitose (quase todas) e endocitose mediada por receptor, e é por essa última que o colesterol do LDL chega a cada célula. “Receber nutrientes pelo sangue” não diz como o nutriente atravessa a membrana; o sangue entrega na porta, e a porta, para o LDL, é uma vesícula.
Conferência pela figura. Na figura desta seção, a diferença entre os três painéis de endocitose está no conteúdo da vesícula (partícula, líquido, molécula presa a receptor), nunca em quem a faz. Um resumo que classifica por “quem” erra o critério.
Os erros que a prova planta
A banca do PAS não pergunta se o sal conserva ou se a célula engole. Pergunta como, e troca um mecanismo pelo vizinho. Dez trocas, com o antídoto de cada uma.
“A osmose vai do mais concentrado para o menos concentrado.” A frase vale para o soluto na difusão, não para a água na osmose. A água vai do meio com menos soluto para o meio com mais soluto. Antídoto: antes de julgar, pergunte “quem viaja e para onde?”: a água, para onde há mais soluto.
“A água vai para onde tem mais água.” Dá a direção certa nos casos simples e falha com vários solutos ou com soluto que atravessa. A regra conta o soluto retido. Um item que definiu a osmose pela concentração do solvente, e não do soluto, estava errado.
“O sal entra na célula por osmose” ou “os microrganismos foram eliminados durante a salga” (item 48 de 2011). Íons não atravessam a bicamada, e o sal não mata: a salga desidrata por saída de água; o verbo certo é “desidratar”, não “eliminar”.
“Parede é membrana” ou “a membrana é impermeável” (item 61 de 2014). A membrana é seletivamente permeável e está em toda célula; a parede é porosa, limita o volume e só existe em plantas, fungos e bactérias.
“A difusão facilitada gasta ATP porque usa proteína.” Proteína não é energia. A favor do gradiente, sem ATP, por mais proteína que use. O item 81 de 2014 (PAS 3) chamou de difusão facilitada a passagem por permeases sem menção a energia, e estava certo.
“Transporte ativo é o rápido.” Ativo é contra o gradiente, com ATP; a velocidade não entra no critério. Variante: “o transporte ativo dispensa ATP porque ocorre a favor do gradiente”, a definição enunciada pelo avesso.
“A célula vegetal estoura em água pura.” Não estoura: a parede segura a célula túrgida, e a osmose “sofre resistência da parede” (item 115 de 2023, certo). Quem estoura é a hemácia.
“Hipertônico quer dizer com mais água.” Hiper se refere ao soluto. Hipertônico = mais soluto = a água sai.
“A bomba de sódio e potássio é osmose” ou “faz o sódio entrar e o potássio sair”. A bomba move três Na+ para fora e dois K+ para dentro, contra os gradientes, com ATP. Osmose é água, passiva.
“Pinocitose é absorver água; fagocitose é só a ameba comendo” (item 83 de 2015). Pinocitose captura líquido com solutos em vesículas; água entra por osmose. Fagocitose é captura de partícula, e neutrófilos e macrófagos a fazem como defesa. E exocitose é saída, não entrada.
Como a prova cobrou o assunto. Na primeira etapa do PAS, entre 2005 e 2025, os itens de membrana e transporte foram seis: 2005/85 (carne-seca, certo), 2011/39 (três lâminas de hemácias, tipo C, resposta C), 2011/48 (salga “elimina” microrganismos, errado), 2011/51 (salga como desidratação por processo passivo, certo), 2014/61 (membrana “visível ao microscópio óptico e impermeável”, errado) e 2015/83 (figura da fagocitose, “pinocitose” na etapa de exocitose, errado). Na terceira etapa, quatro: 2012/33 (tipo D: um texto sobre a estrutura e a função da membrana, a partir da fibrose cística), 2014/80 (padrão básico da membrana numa figura, certo), 2014/81 (tipo C, difusão facilitada) e 2023/115 (parede e turgidez, certo). O padrão é constante: o texto-base é de alimento, de história ou de saúde, escrito por outra pessoa, e o item de Biologia cobra o mecanismo. Um substantivo trocado decide: “eliminados” por “desidratados”, “pinocitose” por “exocitose”, “impermeável” por “seletiva”.
Exemplo resolvido: o item discursivo. O item 33 do PAS 3 de 2012 informava que a causa primária da fibrose cística é o defeito dos canais de cloreto nas membranas de células epiteliais especializadas e pedia um texto sobre a estrutura e a função da membrana celular. Um texto que vale os pontos tem quatro partes, em qualquer ordem. Estrutura: bicamada de fosfolipídios (cabeças polares para fora, caudas apolares no meio) com proteínas integrais e periféricas, colesterol e glicocálix, o modelo do mosaico fluido. Função: delimitar a célula e controlar o que entra e sai, a permeabilidade seletiva, além de reconhecer e comunicar. Os transportes: difusão simples (gases pela bicamada), difusão facilitada (canais e transportadores, a favor do gradiente, sem ATP), osmose (água para o lado com mais soluto) e transporte ativo (contra o gradiente, com ATP, como a bomba de sódio e potássio), além de endocitose e exocitose. A ligação com o caso: o canal de cloreto é uma proteína integral que faz difusão facilitada de um íon; sem ele, o Cl− não sai para a superfície do epitélio, a água que o seguiria por osmose também não sai, e o muco das vias respiratórias fica espesso. Um único gene, uma única proteína de membrana, um defeito em cada tecido que usa esse canal. Esse item está na lista de questões como exemplo resolvido.
O essencial em meia página
Membrana (mosaico fluido, Singer e Nicolson, 1972): bicamada de fosfolipídios + proteínas integrais (canais, transportadores, bombas, receptores) e periféricas + colesterol (fluidez; só em animais) + glicocálix (açúcares, só na face externa; reconhecimento, grupos ABO). 5 a 10 nm; invisível ao microscópio óptico. Toda célula tem. Funções: fronteira seletiva, reconhecimento, comunicação.
Parede ≠ membrana: parede (celulose, quitina, peptidoglicano) só em plantas e algas, fungos e bactérias; rígida, porosa, não seleciona; limita o volume. Célula animal não tem. Hemácia em água destilada: hemólise; célula vegetal: túrgida, não estoura.
Permeabilidade seletiva: passam sozinhos gases e moléculas pequenas sem carga; água passa devagar pela bicamada e depressa por aquaporinas (Agre, 1992; Nobel de 2003); íons e moléculas polares grandes só por proteína (glicose por GLUT); partículas só em vesícula.
Difusão = fluxo líquido do mais para o menos concentrado, por movimento térmico. Passivo = a favor do gradiente, sem ATP, não “lento”. Tempo cresce com o quadrado da distância. Simples (bicamada; velocidade proporcional à concentração) × facilitada (canal ou transportador; satura).
Osmose = difusão da água por membrana seletiva, do meio com menos soluto para o com mais; conta-se o soluto retido, em mOsm. Plasma ≈ 290 mOsm/kg; soro 0,9 % = 9 g/L = 154 mmol/L de NaCl ≈ isotônico; água do mar ≈ 1 000 mOsm/L. Hipo/iso/hipertônico são relativos. Animal: hemólise / normal / crenação. Vegetal: túrgida (turgor) / flácida / plasmolisada (deplasmólise ao voltar). Protozoário de água doce: vacúolo contrátil, com ATP.
Aplicações: sal e açúcar conservam por desidratação (charque ≈ 15 g de sal por 100 g); soro de reidratação oral é levemente hipotônico (245 mOsm/L) e usa o cotransporte Na⁺/glicose; água do mar desidrata (o rim não concentra sal acima do mar); água demais dilui o plasma (hiponatremia); peixe de água doce excreta água, marinho excreta sal; solo salino plasmolisa a raiz.
Variação de massa:(final−inicial)÷inicial×100; sinal dá a direção; o cruzamento com zero no gráfico variação × concentração estima a concentração interna.
Transporte ativo = contra o gradiente, por bomba, com ATP; critério é direção + energia, nunca velocidade. Bomba Na⁺/K⁺: 3 Na⁺ fora, 2 K⁺ dentro, 1 ATP (Skou, 1957; Nobel de 1997); 19 a 28 % do oxigênio gasto na produção de ATP em repouso. Ativo secundário: usa o gradiente de Na⁺ (SGLT1: glicose contra, Na⁺ a favor); raiz e vacúolo vegetal.
Vesículas (sempre com ATP): fagocitose (partícula; neutrófilo, macrófago, ameba), pinocitose (líquido + solutos; quase todas), mediada por receptor (LDL; Brown e Goldstein, Nobel de 1985); vesícula → lisossomo. Exocitose: secreção (insulina, neurotransmissor, enzimas) e reposição de membrana.
Três perguntas decidem qualquer caso: passa por proteína? a favor ou contra o gradiente? gasta ATP? Na osmose, siga a água: ela vai para onde há mais soluto.
Exercícios temporariamente indisponíveis
Não foi possível consultar o banco de questões. O conteúdo da aula continua disponível.
Flashcards temporariamente indisponíveis
Não foi possível consultar os cartões de revisão.
Modelo de mosaico fluido das membranas celulares
Khan Academy Brasil · 9:01
Introdução à estrutura. Em nove minutos, a aula apresenta o modelo do mosaico fluido e o papel de cada componente: fosfolipídios, proteínas, glicoproteínas, colesterol e glicolipídios. Corresponde à seção “Um mosaico que flui: a membrana por dentro”. Assista antes de ler e, a cada componente citado, localize-o na figura do mosaico fluido desta página e pergunte se ele é polar ou apolar; é esse critério que decide onde cada molécula fica.
Transporte ativo
Brasil Escola Oficial · 9:08
Aprofundamento do transporte ativo. Em nove minutos, a aula define o transporte ativo como o movimento de soluto contra o gradiente de concentração, com gasto de energia e por meio de proteínas transportadoras específicas, e mostra como ele mantém a diferença de concentração entre o interior e o exterior da célula. Corresponde à seção “Transporte ativo: subir contra o gradiente custa ATP”. Enquanto assiste, responda às três perguntas desta página para cada exemplo citado: passa por proteína? a favor ou contra o gradiente? gasta ATP?
Osmose: experimento na batata
Licenciatura em Biologia IFB · 8:04
Aplicação experimental. Estudantes da Licenciatura em Biologia do Instituto Federal de Brasília, campus Planaltina, montam o experimento da batata em soluções de concentrações diferentes, o mesmo da seção “Batata na balança” desta página. Assista anotando as variáveis que eles controlam e as que não controlam; depois calcule, com a fórmula da variação percentual de massa, o que você esperaria em cada pote e compare com o que o vídeo mostra.
Questão de vestibular sobre osmose: como resolver?
Biologia de Verdade · 8:28
Resolução de questão. A professora Ligia Marinho resolve uma questão de vestibular sobre osmose e mostra como interpretar o enunciado antes de aplicar o conteúdo. Use depois de ler a seção “Os erros que a prova planta”: pause no enunciado, identifique quem se move (a água) e para onde (o lado com mais soluto), decida a resposta e só então compare com a resolução do vídeo.
A membrana separa compartimentos e permite trocas seletivas, com participação de lipídios e proteínas.O mosaico fluido em corte. Bicamada de fosfolipídios (cabeças laranja, caudas cinza), proteínas integrais (verde: um canal com poro e um transportador sem poro), proteína periférica (roxo) na face interna, colesterol (amarelo) entre as caudas e glicocálix (verde-escuro) só na face externa. A seta dupla laranja indica que os lipídios trocam de lugar lateralmente. Espessura real: 5 a 10 nm, abaixo do limite do microscópio óptico. Esquema fora de escala. Diagrama autoral.A regra de trânsito da bicamada. Setas verdes cheias: atravessam a região das caudas por conta própria. Água: passa pela bicamada, mas devagar; as aquaporinas (canal verde ao centro) multiplicam a velocidade. Íons (com carga) e moléculas polares grandes, como a glicose, não atravessam a gordura e dependem de uma proteína, canal ou transportador. Esquema fora de escala. Diagrama autoral.Velocidade de entrada contra concentração externa. Na difusão simples (verde), dobrar a concentração fora dobra a velocidade, sem limite. Na difusão facilitada (laranja), a velocidade cresce e depois satura: todos os transportadores estão ocupados o tempo todo, e mais substância fora não entra mais depressa. Um transporte ativo por bomba (roxo) também satura, porque também usa proteínas em número finito: a forma da curva revela proteína, não energia. Curvas esquemáticas, sem escala. Diagrama autoral.A mesma água, três meios, dois tipos de célula. Setas azuis mostram o sentido do fluxo líquido de água. Na célula vegetal, a linha grossa é a parede, que não muda de tamanho; a linha fina é a membrana e o retângulo azul é o vacúolo. Na plasmólise a membrana se descola da parede porque o conteúdo da célula encolheu. Esquema fora de escala. Diagrama autoral.Variação percentual de massa de cubos de batata contra a concentração de sacarose do meio, após 24 horas. À esquerda do zero a água entra (meio hipotônico); à direita, sai (hipertônico). O cruzamento com o zero, entre 0,2 e 0,3 mol/L, é a concentração isotônica, uma estimativa da concentração de soluto do citoplasma da batata. Dados construídos para a figura. Diagrama autoral.A bomba de sódio e potássio. A cada ATP, três Na⁺ saem e dois K⁺ entram, os dois contra os gradientes que os canais de vazamento (cinza), por difusão, tendem a desfazer. A bomba não “sabe” que precisa bombear: a fosforilação pelo ATP muda a forma da proteína, e a mudança de forma move os íons. Concentrações típicas, arredondadas. Esquema fora de escala. Diagrama autoral.Transporte em vesículas. Nas três endocitoses (fagocitose, pinocitose e mediada por receptor) a membrana se dobra para dentro e se fecha em torno do material; na exocitose uma vesícula se funde com a membrana e libera o conteúdo. Cinza: partícula (bactéria); azul: solutos do líquido; amarelo: LDL preso a receptores (verde) sobre um revestimento de clatrina (roxo pontilhado); roxo: produto secretado. Todos custam ATP. Esquema fora de escala. Diagrama autoral.O meio externo pode favorecer saída de água das células. Osmose descreve o movimento líquido de água, não a passagem de sal.A endocitose incorpora material por reorganização da membrana, processo diferente de atravessar um canal.Na exocitose, vesículas se fundem à membrana e liberam conteúdo no meio externo.A perda de água pode retrair o conteúdo celular sem reduzir proporcionalmente a parede, produzindo plasmólise.Utilizar proteína não torna um transporte automaticamente ativo. A difusão facilitada acompanha um gradiente favorável.Elódea ao microscópio: células túrgidas em água doce e plasmolisadas em água salgada. A parede não encolhe; o conteúdo da célula perde água e se afasta dela.Cubos de batata em soluções de concentrações diferentes: a variação percentual de massa mede para onde a água foi, e a diferença entre cubos iguais mede a incerteza.Charque e bacalhau salgado: cerca de 15 g e mais de 20 g de sal em cada 100 g. Para um microrganismo, é um meio hipertônico do qual a água sai por osmose. O sal não esteriliza: desidrata.Hemácias em meio isotônico (discos), em meio hipotônico (esferas, algumas rompidas: hemólise) e em meio hipertônico (enrugadas: crenação). Ilustração esquemática, não micrografia real.Um neutrófilo engolindo bactérias por fagocitose: a membrana se dobra em torno da partícula e se fecha numa vesícula. No corpo humano, fagocitose é defesa, não alimentação. Ilustração esquemática.Soro fisiológico: 9 g de cloreto de sódio por litro, 0,9 %. É a concentração de partículas do plasma; nem menos (as hemácias incham) nem mais (as hemácias murcham).Peixe de água doce e peixe marinho resolvem o problema oposto: um elimina a água que entra sem parar pelas brânquias, com urina abundante; o outro bebe água do mar e excreta o sal pelas brânquias. Trocados de ambiente, nenhum sobrevive.
Rota PAS 1
Citologia: a célula por dentro · PAS 1
Fontes desta página
Os materiais abaixo contribuíram para a explicação e os exemplos deste assunto.
Biologia EM1 — Capítulo 6: A membrana e o que entra e sai · A fronteira: um mosaico que flui; Parede não é membrana; O que atravessa sozinho e o que precisa de porta; Difusão: o movimento que ninguém empurra; Osmose: para onde vai a água; Transporte ativo: subir contra o gradiente custa ATP; Quando a membrana engole: endocitose e exocitose; Mão na massa (batata em quatro soluções); exercícios 1 a 20
Fonte principal da estrutura, dos exemplos resolvidos, dos experimentos (hemácia e elódea, batata na balança, ovo sem casca), dos dados da TACO e do estudo da Maratona de Boston. A espessura da membrana foi harmonizada para 5 a 10 nm (o capítulo usa cerca de 5 nm; o Rota PAS, 8 nm), em coerência com a página de teoria celular. O custo da bomba foi reescrito como fração do oxigênio acoplado à síntese de ATP, conforme o resumo de Rolfe e Brown (1997).
Biologia EM1 — Respostas do Capítulo 6 · Checagens 1 a 7; exercícios 1 a 20; Para ir além A a E
Conferência das classificações, das contas de variação de massa e da leitura dos gráficos.
Biologia EM1 — Bloco PAS do Capítulo 6 (itens reais com textos-base) · Texto-base I (2011, item 39), texto-base II (2011, itens 48 e 51), texto-base III (2015, item 83, com a figura descrita); gabarito comentado
Itens do PAS/UnB reproduzidos verbatim, com os textos-base integrais e os gabaritos oficiais.
Rota PAS 1 — Citologia: a célula por dentro · Antes de começar: dez minutos de aquecimento (solução e concentração); Membrana e transportes: por que a água obedece ao sal? (itens 2005/85 e 2011/48); Como a banca cobra este capítulo; Resolvidos (salga e osmose); Banco de treino (T6 a T9: itens 2011/51, 2014/61 e 2011/39)
Recorte por assunto: só membrana e transportes. Teoria celular, organelas, endossimbiose e divisão celular ficam nas páginas próprias.
Rota PAS 1 — Banco de treino da Citologia, resoluções · T6 (2011/51), T8 (2014/61) e T9 (2011/39)
Conferência dos gabaritos dos itens reais e da análise dos distratores.
Rota PAS 3 — Citologia e bioquímica: a célula em funcionamento · Membrana plasmática: a fronteira que escolhe o que passa (itens 2014/80, 2023/115 e 2012/33); Como a banca cobra (item 2014/81); Resolvidos no formato da prova (a alface na salgadeira); Banco de treino (T4, T17 a T19)
Itens reais da 3.ª etapa sobre membrana e transportes; o item 2014/80 depende de uma figura não reproduzida e aparece só na teoria.
Rota PAS 3 — Banco de treino, resoluções · T4 (2023/115), T17 (variante de 2014/80), T18 (2014/81) e T19
Conferência dos gabaritos e dos distratores do tipo C de 2014.