Numa cidade de 10 000 habitantes, o teste do pezinho encontra quatro bebês com anemia falciforme. Como, a partir só desse número, se estima que cerca de 400 moradores carregam o alelo sem saber, e o que a mesma conta revela sobre se a população está ou não evoluindo?
O que você vai aprender
Definir população, pool gênico e evolução como mudança das frequências alélicas entre gerações, e distinguir frequência alélica de frequência genotípica e de frequência fenotípica.
Calcular p e q a partir de contagens de genótipos (p = (2N_AA + N_Aa)/2N), inclusive com três alelos e com genes ligados ao X, e verificar que p + q = 1.
Demonstrar as proporções p², 2pq e q² pela união ao acaso dos gametas, explicar o fator 2 de 2pq e mostrar que as frequências alélicas não mudam de uma geração para outra sob as condições do teorema.
Enunciar as cinco condições do equilíbrio de Hardy-Weinberg (população grande, cruzamentos ao acaso, sem mutação, sem migração, sem seleção) e interpretá-lo como modelo nulo que serve para detectar evolução pelo desvio entre observado e esperado.
Resolver a conta da prova nos dois sentidos: do fenótipo recessivo à frequência de portadores (q² → q → 2pq) e da frequência do alelo ao número esperado de heterozigotos em N indivíduos, inclusive com o atalho 2pq ≈ 2q para alelos raros.
Julgar que dominância e frequência são propriedades independentes e que um alelo recessivo raro não tende a desaparecer, com a conta da seleção contra um recessivo letal.
Testar o equilíbrio comparando genótipos observados e esperados e interpretar um déficit de heterozigotos como sinal de endogamia ou subdivisão.
Descrever o efeito de cada força evolutiva sobre p e sobre a variabilidade: mutação (fonte), seleção (direção; valor adaptativo; vantagem do heterozigoto e polimorfismo balanceado), deriva (acaso, população pequena, gargalo e fundador), fluxo gênico (homogeneização; p' = (1 − m)p + m·p_M) e acasalamento não aleatório (homozigose sem mudar p; coeficiente F).
Explicar com casos documentados os efeitos gargalo (guepardo, elefante-marinho-do-norte, bisão) e fundador (albinismo na ilha dos Lençóis, amish, Tristão da Cunha) e por que a variabilidade perdida não volta com o crescimento da população.
Aplicar os conceitos à conservação de espécies brasileiras (mico-leão-preto, onça-pintada em fragmentos, lobo-guará): tamanho efetivo, população mínima viável, corredores ecológicos e bancos de germoplasma.
Ler com cuidado dados de ancestralidade genômica da população brasileira e explicar por que cor não é ancestralidade e por que raça não é categoria genética.
Reconhecer a força evolutiva pela forma de um gráfico de p ao longo das gerações e interpretar tabelas de genótipos e mapas de frequência alélica (HbS e malária; ABO).
Em uma cidade de 10 000 habitantes, o teste do pezinho de um ano encontra quatro bebês com anemia falciforme. Ninguém fez exame nos outros 9 996 moradores. Mesmo assim, com esse único número, dá para estimar quantas pessoas da cidade carregam o alelo S sem saber: cerca de 400, uma em cada 25. E dá para fazer a pergunta inversa: se o hemocentro medir a frequência do alelo e ela for de 2 %, quantos portadores deveriam existir, caso nada estivesse agindo sobre esse gene? Se a conta bater com o que se observa, a população está parada para aquele gene; se não bater, alguma força está em ação: seleção, migração, sorteio. A 1 000 km dali, numa mancha de cerrado cercada de soja, uma bióloga fotografa lobos-guarás com armadilhas noturnas e conta uns 30 animais. Ela sabe que, numa população desse tamanho, alelos somem ou se fixam a cada geração por puro acaso, sem que nenhum deles seja melhor ou pior. As duas cenas pertencem à mesma disciplina: a genética de populações, que descreve uma população pelas frequências dos seus alelos e tem um critério para dizer o que acontece quando nada acontece. É esse critério que permite reconhecer a evolução quando ela acontece.
A página começa pelo vocabulário (população, alelo, frequência), ensina a contar alelos a partir de contagens de indivíduos, demonstra o teorema de Hardy-Weinberg e mostra o uso que a prova mais pede: calcular portadores a partir de afetados. Depois percorre, uma a uma, as forças que tiram a população do equilíbrio (mutação, seleção, deriva, fluxo gênico, acasalamento não aleatório), com números, e aplica tudo isso à conservação de espécies brasileiras e à genética das populações humanas. Fecha com a leitura de tabelas e gráficos, os erros que os itens plantam e os treze itens do PAS/UnB que cobraram o assunto.
A evolução acontece com a população, não com o indivíduo
Um indivíduo nasce com um genótipo e morre com ele. O que muda ao longo das gerações é a composição do grupo: a proporção de cada alelo entre todos os alelos que a população carrega. Por isso a unidade da evolução é a população, o conjunto de indivíduos da mesma espécie que vive no mesmo lugar e na mesma época e que se reproduz entre si: os lobos-guarás de um parque, as bactérias de uma placa, os moradores de uma ilha. O conjunto de todos os alelos de todos os genes de uma população é o seu pool gênico (ou patrimônio genético). Cada geração é uma amostra tirada desse pool, e evolução, na definição que a genética de populações usa, é a mudança das frequências alélicas de uma geração para a seguinte.
Três ideias do ensino fundamental sustentam o resto. Um gene é um trecho de DNA com a receita de uma característica; um alelo é uma versão desse gene (o gene da cadeia beta da hemoglobina existe nas versões A e S). Cada pessoa carrega dois alelos de cada gene autossômico, um de cada genitor, iguais (homozigoto: AA ou SS) ou diferentes (heterozigoto: AS). Quando um alelo basta para a característica aparecer, ele é dominante; quando só aparece em dose dupla, é recessivo: a pessoa AS não tem anemia falciforme porque S é recessivo para a doença. A última ideia é a mais simples e a mais traída nas provas: frequência é uma fração, o número de vezes que algo aparece dividido pelo total. Escrita como decimal, fica entre 0 e 1; como porcentagem, entre 0 e 100; e as frequências de todas as opções somam 1.
Frequência alélica e frequência genotípica são contagens diferentes
A frequência genotípica conta indivíduos: quantos AA, quantos Aa, quantos aa, divididos pelo total de indivíduos N. A frequência alélica conta alelos: quantos A e quantos a, divididos pelo total de alelos, que é 2N num gene autossômico, porque cada indivíduo carrega dois. Para um gene com dois alelos, chama-se p a frequência de um deles (por convenção, o dominante) e q a do outro. Como todo alelo é um ou outro, p+q=1. A frequência do alelo recessivo (q) nunca é a frequência dos indivíduos de fenótipo recessivo: um alelo pode estar escondido em heterozigotos que não mostram nada.
Contar alelos: a frequência alélica sai da contagem de genótipos
Num canteiro há 50 plantas de ervilha: 20 são AA, 20 são Aa e 10 são aa. Cada planta tem dois alelos, logo há 2×50=100 alelos. Quantos são A? As 20 plantas AA contribuem com 20×2=40; as 20 Aa, com 20; as aa, com nenhum. São 60 alelos A em 100: p=0,6. Os alelos a são os 40 restantes (20 das Aa mais 10×2=20 das aa): q=0,4. Conferência: 0,6+0,4=1. Repare que a frequência do alelo recessivo (0,4) é o dobro da frequência das plantas de fenótipo recessivo (10/50=0,2). Alelo e indivíduo são contagens diferentes.
A regra geral, com NAA, NAa e Naa indivíduos de cada genótipo:
p=2N2NAA+NAa,q=2N2Naa+NAa.
Há um atalho equivalente que vale a pena memorizar: a frequência de um alelo é a frequência do homozigoto correspondente mais a metade da frequência do heterozigoto. No canteiro, p=0,40+21×0,40=0,60. Essas contagens não dependem de equilíbrio nenhum: valem para qualquer população em que se conheçam os genótipos. O que exige condições é a passagem inversa, dos alelos para os genótipos, e é dela que trata a próxima seção.
contagem
ervilhas (N = 50)
fração
indivíduos AA
20
frequência genotípica de AA = 0,40
indivíduos Aa
20
frequência genotípica de Aa = 0,40
indivíduos aa
10
frequência genotípica de aa = 0,20
alelos A
40 + 20 = 60
p = 60/100 = 0,60
alelos a
20 + 20 = 40
q = 40/100 = 0,40
Exemplo resolvido: um censo de lobos-guarás. Uma equipe genotipa 40 lobos-guarás de um fragmento para um gene com dois alelos e encontra 12 BB, 20 Bb e 8 bb. Qual a frequência de cada alelo? Total de alelos: 2×40=80. Alelos B: 2×12+20=44, logo p=44/80=0,55. Alelos b: 2×8+20=36, logo q=36/80=0,45. Conferência: 0,55+0,45=1. Pelo atalho: p=12/40+21(20/40)=0,30+0,25=0,55. A frequência genotípica de bb é 8/40=0,20, e a de b é 0,45: mais que o dobro, porque 20 heterozigotos carregam o alelo sem mostrá-lo.
Dois detalhes de contagem aparecem em itens. Com mais de dois alelos (o sistema ABO tem três), a regra é a mesma: cada alelo é contado em todos os genótipos em que aparece, e a soma de todas as frequências alélicas continua sendo 1. E num gene ligado ao X, os homens carregam um só alelo: numa população com Nh homens e Nm mulheres, o total de alelos do gene é Nh+2Nm, não 2N. A frequência de homens daltônicos é a própria frequência do alelo, q, enquanto a de mulheres daltônicas é q2: com q=0,08, 8 % dos homens e 0,64 % das mulheres.
Fenótipo dominante não é p, e fenótipo recessivo não é q
Com dominância completa, a fração de indivíduos que mostram o fenótipo dominante reúne os homozigotos AA e os heterozigotos Aa. Ela não é p, e também não é p2. Do mesmo modo, a fração que mostra o fenótipo recessivo é a dos homozigotos aa, que em equilíbrio vale q2, e não q. No canteiro, 80 % das plantas mostram o fenótipo dominante enquanto p é 0,6. Quem lê “60 % das plantas são dominantes” num enunciado e escreve p=0,6 erra a conta inteira.
Hardy-Weinberg: o que acontece se nada acontecer
Em 1908, numa reunião da Royal Society of Medicine, o estatístico Udny Yule sugeriu, como crítica à genética de Mendel, que, se a braquidactilia (dedos curtos) fosse dominante, com o tempo seria de esperar três pessoas com dedos curtos para cada uma normal. O matemático Godfrey Harold Hardy, de Cambridge, respondeu com uma carta à revista Science, publicada em 10 de julho de 1908, dizendo que “não há o menor fundamento para a ideia de que um caráter dominante tenda a se espalhar por toda uma população, ou de que um recessivo tenda a desaparecer”. A prova cabia, nas palavras dele, em “um pouco de matemática do tipo tabuada”. Seis meses antes, em 13 de janeiro de 1908, o médico Wilhelm Weinberg tinha lido em Stuttgart um trabalho com o mesmo resultado, que ficou desconhecido fora da Alemanha por décadas. O princípio leva hoje o nome dos dois.
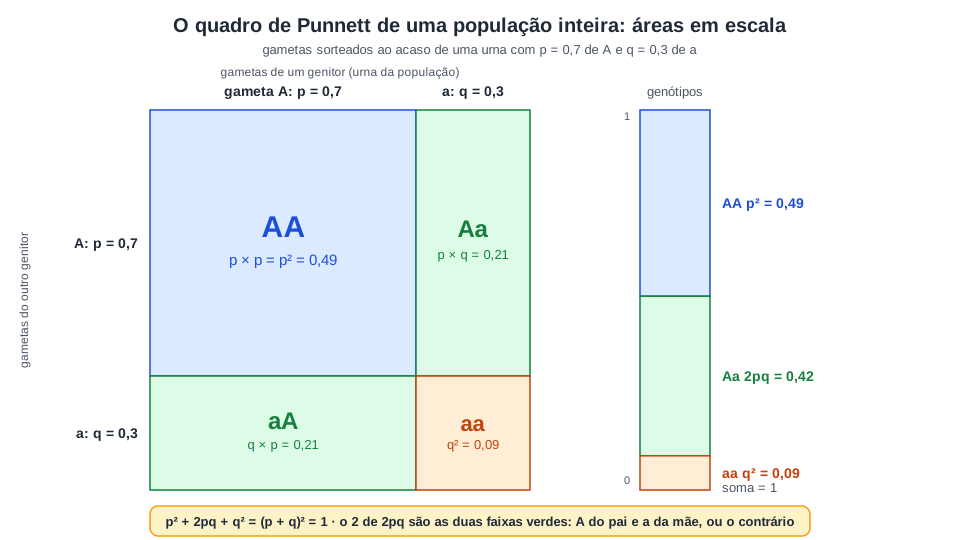
A demonstração usa o que a página anterior ensinou. Pense nos gametas da população como uma urna: uma fração p deles carrega A e uma fração q carrega a. Se os cruzamentos são ao acaso, cada zigoto é o encontro de dois gametas sorteados independentemente dessa urna. A chance de um zigoto AA é p×p=p2; a de aa é q2; e a de Aa é pq+qp=2pq, porque há duas maneiras de ser heterozigoto, receber A do pai e a da mãe, ou o contrário. Como essas três são as únicas possibilidades,
p2+2pq+q2=(p+q)2=1.
O quadro de Punnett de uma população inteira. Em vez de um casal, a urna de gametas: as larguras e alturas são as frequências dos gametas, e as áreas são as frequências dos genótipos. As duas faixas verdes explicam o 2 de 2pq. Áreas em escala. Diagrama autoral.
Agora o passo que transforma a conta em teorema. Calcule a frequência de A entre os gametas da nova geração: os AA produzem só gametas A, os Aa produzem metade A, os aa nenhum. Logo p′=p2+21(2pq)=p2+pq=p(p+q)=p. A frequência do alelo não mudou. E, como p′=p, a geração seguinte terá de novo genótipos em p2, 2pq, q2. Duas conclusões saem daí. Primeira: as frequências alélicas se mantêm constantes de geração em geração. Segunda: as frequências genotípicas atingem as proporções p2:2pq:q2 em uma única geração de cruzamentos ao acaso, qualquer que fosse a distribuição inicial dos genótipos, e depois ficam nelas. Hardy fez a conta com a braquidactilia: começando de 1 pessoa com dedos curtos para 10 000 normais, a proporção dobraria na segunda geração e “não teria depois tendência nenhuma a aumentar”.
símbolo
leitura
exemplo com q=0,3
p
frequência do alelo dominante
p=1−0,3=0,7
q
frequência do alelo recessivo
q=0,3 (30 % dos alelos)
p2
fração de homozigotos dominantes (AA)
0,72=0,49
2pq
fração de heterozigotos (Aa)
2×0,7×0,3=0,42
q2
fração de homozigotos recessivos (aa)
0,32=0,09
As cinco condições do equilíbrio de Hardy-Weinberg
O resultado vale para uma população grande (para que o sorteio dos gametas não desvie as frequências por acaso), com cruzamentos ao acaso em relação ao gene estudado, sem mutação que crie ou converta alelos, sem migração que traga ou leve alelos de fora, e sem seleção natural: os três genótipos sobrevivem e se reproduzem igualmente. Cada condição corresponde a uma força evolutiva; quando uma delas falha, a força correspondente está agindo. O PAS 3 de 2020 (item 88) deu como certo que, “para que essa população esteja em equilíbrio de Hardy-Weinberg, os cruzamentos devem ocorrer ao acaso”: é a condição nominal do teorema.
Leia o teorema pelo que ele é: um modelo nulo, o retrato da população que não está evoluindo. Nenhuma população real cumpre as cinco condições à risca, e isso não é defeito do modelo: é a sua utilidade. Ele diz o que esperar se nada agir, e a diferença entre o observado e o esperado é a medida de que algo age. Um físico faz o mesmo quando calcula a queda de um corpo sem resistência do ar e usa o desvio para medir a resistência. Em genética de populações, o desvio das proporções de Hardy-Weinberg, ou a mudança de p entre gerações, é o sinal de que seleção, deriva, migração, mutação ou acasalamento preferencial estão agindo. O item 89 da mesma prova de 2020 afirmou que “seleção natural e deriva genética são fatores evolutivos que atuam para manter as frequências alélicas em equilíbrio genético”, e o gabarito foi errado: seleção e deriva são exatamente o que desfaz o equilíbrio.
Uma consequência que a prova de 2017 explorou: mantidas as condições, as frequências não mudam em cem gerações nem em mil. O texto-base descrevia uma população hipotética de 1 000 indivíduos com alelos A e a em frequências de 95 % e 5 %, mantida em equilíbrio por 100 gerações, e o item 74 afirmou que, “mantidas as condições iniciais, na centésima geração da população hipotética, a frequência de A aumentou e a de a diminuiu”. Gabarito errado. Equilíbrio é equilíbrio: a frequência do alelo raro não cai por ser rara, nem por ser recessiva.
O uso prático: do fenótipo recessivo à frequência dos portadores
É aqui que o teorema deixa de ser teoria. Numa doença autossômica recessiva, só os homozigotos aa são afetados, e eles são a única classe que se vê. Em equilíbrio, a fração de afetados é q2. Logo, a partir da frequência de afetados, tira-se a raiz quadrada e obtém-se q; depois p=1−q; e então 2pq dá a fração de portadores, os heterozigotos que não têm a doença mas podem transmiti-la. Três passos, sempre nesta ordem: q2→q→2pq.
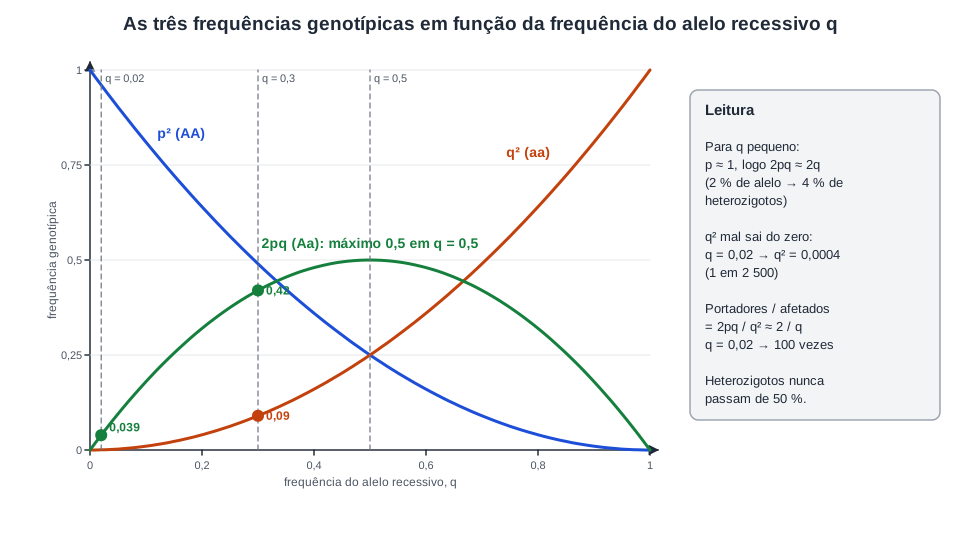
Fibrose cística. A doença ocorre em cerca de 1 em 2 500 a 3 500 recém-nascidos de ascendência europeia, segundo o MedlinePlus Genetics, da Biblioteca Nacional de Medicina dos Estados Unidos. Tomando 1 em 2 500: q2=0,0004, logo q=0,02 e p=0,98. Portadores: 2pq=2×0,98×0,02=0,0392, cerca de 4 %, uma pessoa em 25. Cem vezes mais portadores que doentes. É por isso que uma doença recessiva rara não some: a imensa maioria dos alelos está em pessoas saudáveis, fora do alcance da seleção.
Albinismo oculocutâneo. A prevalência mundial é estimada em 1 em 17 000 (Moura e colaboradores, Genetics and Molecular Biology, 2023). Então q2≈0,0000588, q≈0,0077 e 2pq≈0,0152: cerca de 1,5 % de portadores, uma pessoa em 65, para uma doença que atinge uma em 17 000. A proporção portadores/afetados é, aproximadamente, 2/q: quanto mais raro o alelo, maior essa razão.
Anemia falciforme no Brasil. O Programa Nacional de Triagem Neonatal registrou, entre 2014 e 2020, uma incidência de doença falciforme de 3,75 a cada 10 000 nascidos vivos (Ministério da Saúde). Tomando q2=0,000375: q≈0,0194, cerca de 2 %, e 2pq≈2×0,98×0,0194≈0,038, cerca de 4 % de pessoas com o traço falciforme (AS), uma em 26. O PAS 3 de 2025 (item 41) fez a mesma conta no sentido inverso: dada a frequência do alelo S de 2 %, a frequência esperada de heterozigotos AS é “aproximadamente 4 %”, e o gabarito foi certo. Há um atalho honesto para q pequeno: como p≈1, 2pq≈2q. Dobre a frequência do alelo e você tem, em dez segundos, a dos portadores.
As três frequências genotípicas em função de q. Para alelos raros, a curva verde dos heterozigotos sobe quase como uma reta de inclinação 2 enquanto a laranja dos afetados mal sai do zero: é por isso que portadores são sempre muito mais numerosos que doentes. A fração de heterozigotos nunca passa de 50 %, atingida quando p = q = 0,5. Diagrama autoral.
Exemplo resolvido: os pássaros de bico curto (PAS 3 2020, item 90). O texto-base dizia: “em uma população de determinada espécie de pássaro em equilíbrio de Hardy-Weinberg, o tamanho do bico é controlado por um único gene autossômico com dois alelos, p e q, sendo o alelo p dominante sobre o alelo q. Indivíduos homozigotos qq apresentam bico curto, enquanto indivíduos homozigotos pp, assim como os heterozigotos, apresentam bico longo. A frequência do alelo que determina bico curto (q) é de 30 %”. O item 90 afirmou que “a porcentagem de indivíduos heterozigotos na população em questão é de 42 %”. Aqui o dado já é a frequência do alelo, não do fenótipo: q=0,3, p=0,7, 2pq=2×0,7×0,3=0,42. Gabarito certo. Os de bico curto são q2=0,09, 9 %, e não 30 %: a variante do item que dissesse “30 % de bico curto” seria errada.
Exemplo resolvido: o censo de heterozigotos (PAS 3 2017, item 75). Na população hipotética de 1 000 indivíduos com p=0,95 e q=0,05, o item afirmou que “no momento inicial, são encontrados 95 indivíduos heterozigotos na população hipotética”. Fração de heterozigotos: 2pq=2×0,95×0,05=0,095. Número: 0,095×1000=95. Gabarito certo. A regra para converter fração em número de indivíduos é multiplicar pelo tamanho da população; a regra inversa, de número para fração, é dividir.
Exemplo resolvido: o item de resposta construída (PAS 3 2022, item 65). “Considerando uma cidade da Bahia com 10.000 habitantes em que a frequência do alelo βS seja 0,04, p+q=1, em que p representa a frequência do alelo βA na população e q a frequência do alelo βS na mesma população, e considerando, ainda, o teorema de Hardy-Weinberg, segundo o qual, em uma população em equilíbrio, a frequência dos genótipos é igual a p2+2pq+q2, calcule o número de indivíduos heterozigotos na população em apreço.” Etapas, como a prova pede no campo “Desenvolvimento”: (1) q=0,04, logo p=1−0,04=0,96; (2) fração de heterozigotos =2pq=2×0,96×0,04=0,0768; (3) número =0,0768×10000=768 indivíduos. No campo “Resultado”: 768. Repare que a fórmula veio no enunciado. A prova não pede memória do teorema; pede saber usá-lo sem trocar 2pq por q2 no caminho, e cada etapa escrita vale crédito parcial.
Três números que se confundem: q, q² e 2pq
q é a fração dos alelos; q2 é a fração dos indivíduos que mostram o fenótipo recessivo; 2pq é a fração dos portadores, que não mostram nada. Com q=0,3: 30 % dos alelos, 9 % dos indivíduos, 42 % de heterozigotos. O enunciado costuma dar um dos três e perguntar outro. Escreva os três no rascunho antes de julgar; se o dado for um fenótipo recessivo (como o Rh negativo), comece por q2 e tire a raiz; se o dado for a frequência do alelo (como os 30 % dos pássaros ou os 2 % do alelo S), não tire raiz nenhuma. E lembre que 2pq nunca passa de 0,5: um item que afirme 60 % de heterozigotos está errado antes de qualquer conta.
Dominante não quer dizer frequente
A objeção de Yule que Hardy respondeu em 1908 continua sendo um erro recorrente nos itens: a ideia de que o alelo dominante, por “vencer” no heterozigoto, tende a se tornar o mais comum, e o recessivo, a desaparecer. O teorema mostra o contrário: na ausência de forças evolutivas, as frequências ficam onde estão, seja qual for a relação de dominância. Dominância descreve o que aparece no heterozigoto; frequência descreve quantas cópias existem na população. São propriedades independentes. A polidactilia (dedos a mais) é dominante e rara; o grupo sanguíneo O exige dois alelos recessivos e nem por isso é raro; o albinismo é recessivo e, na ilha dos Lençóis, chega a 3 % da população. O PAS 3 de 2010 (item 56) deu como certo que “a frequência de um dado alelo em uma população independe de ele ser recessivo ou dominante, isto é, o dominante não necessariamente é o mais comum, do mesmo modo que o recessivo não necessariamente é o mais raro”.
O segundo erro da mesma família é “o recessivo tende a sumir”. Ele sobrevive porque esconde um fato: um alelo recessivo raro está quase todo em heterozigotos. Com q=0,01, a fração de alelos a que está em homozigotos aa é q2/q=q=1 %; os outros 99 % estão em portadores Aa, com fenótipo normal. Mesmo que a seleção eliminasse todos os aa antes de se reproduzirem, só 1 % dos alelos a sairia de circulação a cada geração, e a frequência cairia cada vez mais devagar. A seção sobre seleção faz essa conta.
Mais de dois alelos: o sistema ABO como exemplo
Quando um gene tem três alelos, como o ABO (IA, IB e i), a lógica da urna é a mesma, com três frequências que somam 1. Chamando-as de p, q e r:
p+q+r=1,(p+q+r)2=p2+q2+r2+2pq+2pr+2qr=1.
Cada termo é um genótipo: p2 é IAIA, 2pr é IAi, r2 é ii, e assim por diante. O grupo O só tem um genótipo, ii, e por isso é a porta de entrada da conta: r=f(O). Numa população em equilíbrio com 36 % de pessoas do grupo O, r=0,6. Se o grupo A (genótipos IAIA e IAi) tem 45 %, então p2+2pr=0,45; somando com r2: p2+2pr+r2=(p+r)2=0,81, logo p+r=0,9 e p=0,3. Sobra q=1−0,6−0,3=0,1. Conferência: grupo B =q2+2qr=0,01+0,12=0,13, e grupo AB =2pq=0,06; soma dos quatro grupos: 0,36+0,45+0,13+0,06=1. O truque de somar o grupo O ao grupo A para obter (p+r)2 é o único passo que não é imediato; o resto é a tabuada do teorema. Os cruzamentos do sistema ABO, as transfusões e o fator Rh ficam na página de leis de Mendel.
grupo
genótipos
frequência em equilíbrio
exemplo (p=0,3; q=0,1; r=0,6)
O
ii
r2
0,36
A
IAIA, IAi
p2+2pr
0,09 + 0,36 = 0,45
B
IBIB, IBi
q2+2qr
0,01 + 0,12 = 0,13
AB
IAIB
2pq
0,06
Testar o equilíbrio: observado contra esperado
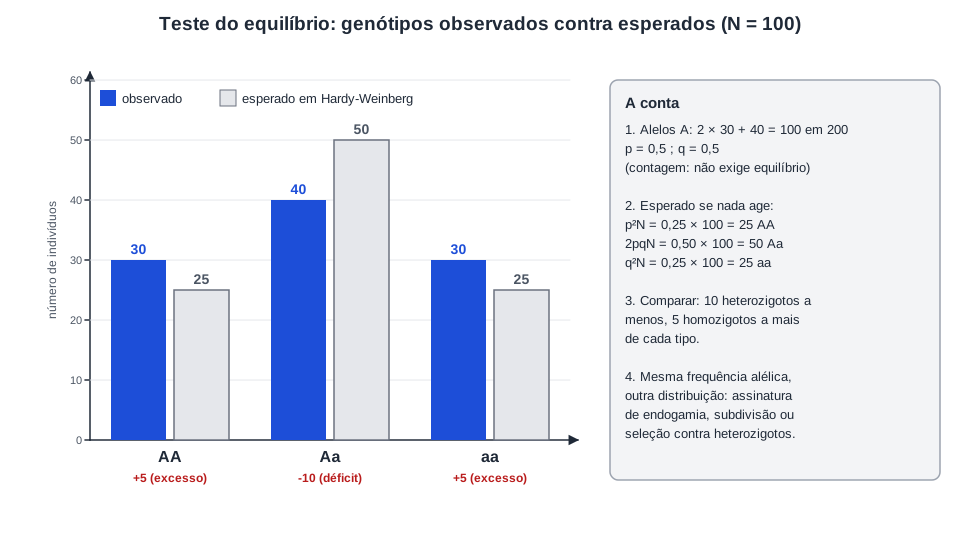
O teorema só serve para alguma coisa se puder ser confrontado com dados. O roteiro tem quatro passos. (1) Conte os genótipos observados. (2) Calcule p e q a partir dessas contagens, pela regra da seção de contagem (isso não exige equilíbrio). (3) Calcule os genótipos esperados em equilíbrio: p2N, 2pqN e q2N. (4) Compare. Se observado e esperado são próximos, nada indica que uma força esteja desviando a população naquele gene; se diferem muito, alguma condição está violada.
Exemplo resolvido: um levantamento com 100 indivíduos. Observam-se 30 AA, 40 Aa e 30 aa. Alelos A: 2×30+40=100 em 200, p=0,5; q=0,5. Esperado em equilíbrio: p2N=0,25×100=25 AA, 2pqN=50 Aa, q2N=25 aa. Observado: 30, 40, 30. Há menos heterozigotos do que o esperado (40 contra 50) e mais homozigotos dos dois tipos. Esse padrão, déficit de heterozigotos com as frequências alélicas intactas, é a assinatura do acasalamento não aleatório (endogamia) ou de uma população que na verdade é a mistura de duas subpopulações com frequências diferentes. Seleção contra os heterozigotos também produziria isso. A conta identifica o desvio; dizer qual força o causou exige mais informação sobre a população.
Observado contra esperado. As frequências alélicas (p = q = 0,5) são calculadas a partir da contagem e não dependem de equilíbrio; o que o teorema prevê é como esses alelos deveriam se distribuir em genótipos. A diferença (10 heterozigotos a menos) é o dado que pede explicação: endogamia, subdivisão ou seleção contra heterozigotos. Diagrama autoral.
Exemplo resolvido: a mesma frequência, outra distribuição. Noutro levantamento com 100 indivíduos, observam-se 25 AA, 50 Aa e 25 aa. Também aqui p=q=0,5, e o esperado é 25, 50, 25: observado e esperado coincidem. Nada nesses dados sugere força evolutiva agindo sobre o gene. Mas atenção ao que isso prova e ao que não prova: proporções compatíveis com o equilíbrio num gene não demonstram que a população inteira esteja parada (outros genes podem estar sob seleção), nem que cada condição seja cumprida à risca (forças fracas ou que se compensam passam despercebidas numa amostra pequena). Em laboratório, a comparação é feita com um teste estatístico (o qui-quadrado) que leva em conta o tamanho da amostra; na prova, basta a comparação direta.
Como ler uma tabela de genótipos num item. O enunciado dá contagens (às vezes porcentagens) de AA, Aa e aa, ou de fenótipos. Primeiro decida o que foi dado: genótipos ou fenótipos. Com genótipos, calcule p pela contagem. Com fenótipos e dominância completa, só a classe recessiva revela um genótipo; aí q=f(aa), e isso já pressupõe equilíbrio. Depois compare esperado e observado. Um item que pergunte “a população está em equilíbrio?” se responde pela comparação; um item que pergunte “qual a frequência do alelo?” se responde pela contagem, que vale sempre.
As forças que tiram a população do equilíbrio
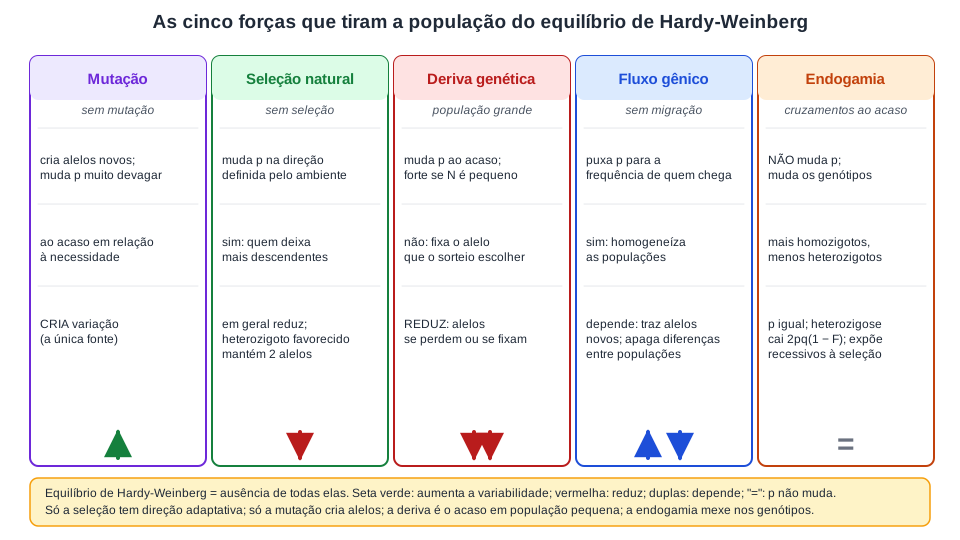
Cada condição do teorema tem uma força que a viola, e essas forças são os fatores evolutivos. Elas diferem em três coisas: se criam ou só reorganizam a variação, se têm direção ou são cegas, e se aumentam ou reduzem a variabilidade genética da população. O quadro resume; as seções seguintes dão os números.
força
condição violada
o que faz com p
tem direção?
efeito sobre a variabilidade
mutação
sem mutação
muda muito devagar
ao acaso em relação à necessidade
cria alelos novos: a única fonte
seleção natural
sem seleção
muda em direção definida pelo ambiente
sim: favorece quem deixa mais descendentes
em geral reduz; a vantagem do heterozigoto mantém
deriva genética
população grande
muda ao acaso, mais em populações pequenas
não: pode fixar o alelo pior
reduz: alelos se perdem ou se fixam
fluxo gênico (migração)
sem migração
puxa p para a frequência da população de origem dos migrantes
sim: homogeneíza populações
pode aumentar (alelos novos) ou reduzir (apaga diferenças)
acasalamento não aleatório (endogamia)
cruzamentos ao acaso
não muda p; muda os genótipos
aumenta homozigose
não muda sozinho; expõe recessivos à seleção
As cinco forças lado a lado. Só a mutação cria alelos; a seleção é a única com direção adaptativa; a deriva é o acaso em população pequena; o fluxo gênico mistura; a endogamia mexe nos genótipos sem mexer na frequência alélica. Diagrama autoral.
Mutação: a fonte de tudo, com pressão fraca
A mutação é a única força que cria alelos novos; sem ela não haveria p nem q para contar. Mas, como força que muda frequências, é fraca: as taxas de mutação por gene e por geração são muito baixas, e converter uma fração apreciável dos alelos A em a levaria milhares de gerações. O que a mutação faz, geração após geração, é alimentar a população com variantes que as outras forças depois espalham, eliminam ou sorteiam. Dois pontos entram em itens: a mutação é ao acaso em relação às necessidades do organismo (o ambiente não encomenda a mutação útil), e um alelo novo nasce em um único indivíduo, com frequência 1/2N, o que o torna muito vulnerável a desaparecer por acaso nas primeiras gerações. Os tipos de mutação, os agentes mutagênicos e o reparo do DNA estão na página de mutações.
Seleção natural: a conta muda quando os genótipos deixam números diferentes de descendentes
A seleção entra na conta por meio do valor adaptativo (ou aptidão, w) de cada genótipo: a contribuição relativa de descendentes, com o melhor genótipo valendo 1. Se os aa deixam 20 % menos descendentes que os AA e os Aa, então wAA=wAa=1 e waa=0,8. A cada geração, a frequência de a cai, porque uma parte dos alelos a (a que estava em homozigotos) é descartada. A seleção é a única força com direção adaptativa: ela muda p no sentido definido pelo ambiente, e por isso é a única que produz adaptação. Os modos de seleção (direcional, estabilizadora, disruptiva), a seleção artificial e a resistência a antibióticos e inseticidas estão na página de seleção natural; aqui interessa como a seleção aparece nas frequências.
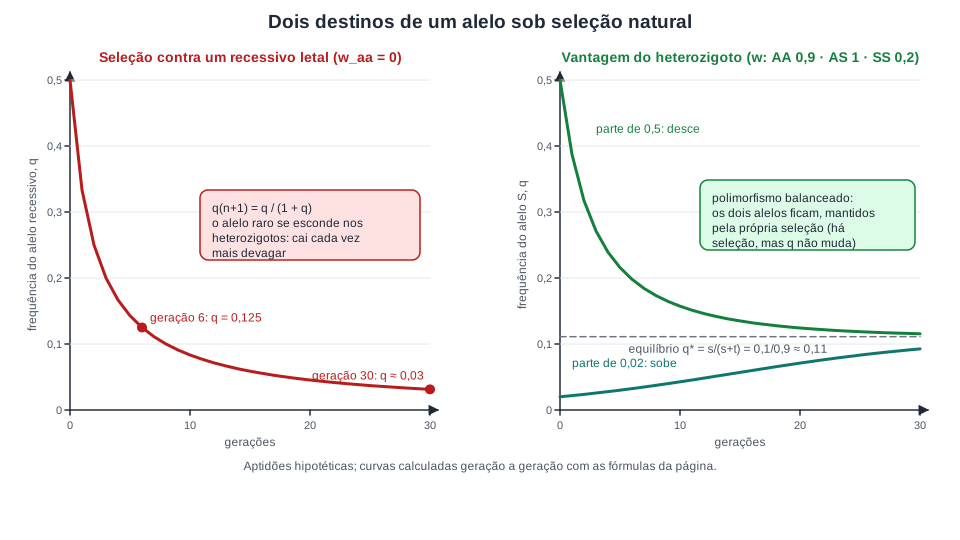
Exemplo resolvido: seleção contra um recessivo letal. Suponha que todo aa morra antes de se reproduzir (waa=0) e que AA e Aa sejam iguais. Começando de q=0,5 (genótipos 25 % AA, 50 % Aa, 25 % aa), os reprodutores são só AA e Aa, na proporção 25 : 50, ou 1 : 2. Entre eles, a frequência de a é 21×32=31. Na geração seguinte, q=0,333; repetindo, q=0,25; depois 0,20; depois 0,167. A regra geral é qn+1=qn/(1+qn), e depois de n gerações qn=q0/(1+nq0). Para cair de 0,5 a 0,1 bastam 8 gerações; para cair de 0,01 a 0,005, são necessárias 100; de 0,001 a 0,0005, 1 000. Quanto mais raro o alelo, mais devagar a seleção o remove, porque quase todas as cópias estão escondidas em heterozigotos. É a demonstração numérica de que “o recessivo tende a sumir” é falso mesmo com seleção máxima contra ele.
Dois destinos para um alelo sob seleção. À esquerda, mesmo letal em homozigose, o alelo recessivo demora cada vez mais a cair. À direita, quando o heterozigoto é o genótipo mais apto, a frequência converge para um equilíbrio interno qualquer que seja o ponto de partida: o alelo que mata em dose dupla é mantido. Valores das aptidões hipotéticos; curvas calculadas pelas fórmulas do texto. Diagrama autoral.
A vantagem do heterozigoto e o polimorfismo balanceado. Se SS é uma doença grave, por que o alelo S não caiu a zero ao longo dos séculos? Porque, onde há malária, o heterozigoto AS tem mais chance de sobreviver à forma grave da doença do que o AA, e os dois homozigotos ficam em desvantagem: o AA pela malária, o SS pela anemia. Anthony Allison mostrou, em 1954, que o traço falciforme protege contra a infecção pelo Plasmodium falciparum, e um mapa global publicado em 2010 por Frédéric Piel e colaboradores (Nature Communications) confirmou que a distribuição do alelo S acompanha a da malária, com relação forte na África. Na conta, a seleção empurra q para baixo quando ele é alto (muitos SS morrem) e para cima quando ele é baixo (os AS sobrevivem mais que os AA), e a população converge para uma frequência intermediária de equilíbrio. Com aptidões wAA=1−s, wAS=1 e wSS=1−t, esse equilíbrio é q∗=s/(s+t): com s=0,1 e t=0,8, q∗=0,1/0,9≈0,11. É um polimorfismo balanceado: dois alelos mantidos na população pela própria seleção. A população está fora do equilíbrio de Hardy-Weinberg (há seleção), e, no entanto, as frequências não mudam: equilíbrio seletivo não é equilíbrio de Hardy-Weinberg. Os 4 % de portadores no Brasil são história evolutiva registrada em sangue: o alelo veio da África com as pessoas escravizadas, e sua frequência aqui reflete a frequência lá e a ancestralidade de cada região, mais do que a malária daqui.
Deriva genética: o acaso em populações pequenas
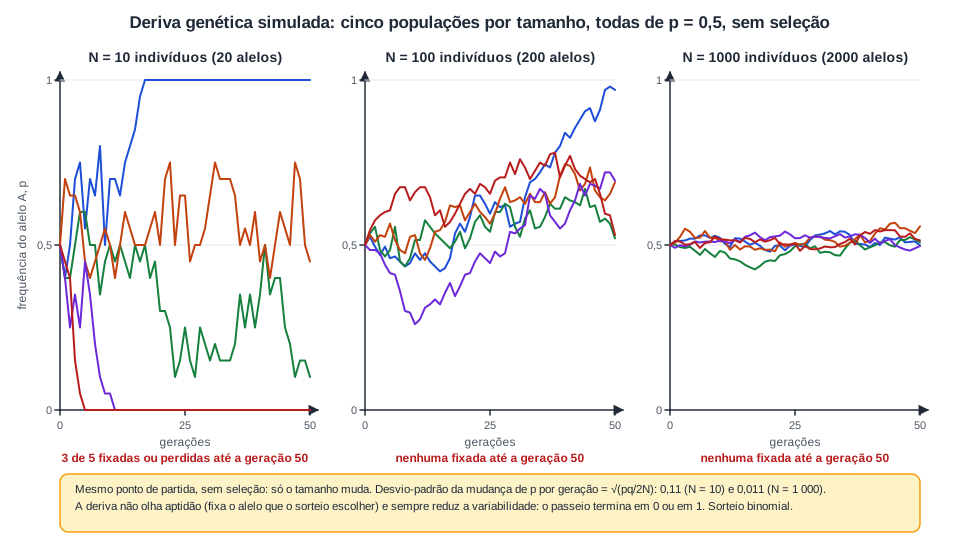
Mesmo sem seleção, as frequências de uma população pequena mudam de uma geração para outra, por puro erro de amostragem. Pense numa urna com 50 % de bolas vermelhas e 50 % de azuis. Tire 2 000 bolas (uma população de 1 000 indivíduos) e a proporção de vermelhas sairá muito perto de 50 %. Tire 20 bolas (uma população de 10 indivíduos) e ela pode sair 35 %, 60 %, 45 %: a amostra é pequena demais para representar a urna. A geração seguinte é formada a partir dessa amostra desviada, que vira a nova urna, e o desvio seguinte se soma ao anterior. Esse passeio ao acaso da frequência alélica é a deriva genética, estudada matematicamente por Sewall Wright a partir de 1931, e sua intensidade depende do tamanho da população. Numa população de N indivíduos com p=0,5, o desvio-padrão da mudança de p em uma geração é pq/2N: com N=10, cerca de 0,11; com N=1000, cerca de 0,011, dez vezes menor. E a heterozigosidade esperada cai, em média, uma fração 1/2N por geração: 5 % por geração com N=10; 0,05 % com N=1000.
Simulação de deriva: cinco populações independentes de cada tamanho, todas começando com p = 0,5 e sem seleção. Em populações de 10, alelos se perdem ou se fixam em poucas dezenas de gerações; em populações de 1 000, a frequência quase não sai do lugar. Trajetórias geradas por sorteio binomial com semente fixa. Diagrama autoral.
Três propriedades da deriva decidem itens. Primeira: ela não olha aptidão. Pode fixar um alelo neutro, pode fixar um alelo pior, pode eliminar um alelo melhor. “Deriva é seleção fraca” é falso: seleção tem direção, deriva não. Segunda: num gene sem seleção, a probabilidade de um alelo acabar fixado (chegar a 100 %) é igual à sua frequência atual: um alelo novo, com frequência 1/2N, quase sempre se perde. Terceira: a deriva sempre reduz a variabilidade, porque o fim de todo passeio ao acaso é a fixação de um alelo e a perda dos outros. Nos anos 1960, Motoo Kimura propôs que grande parte da variação molecular (as diferenças de DNA e de proteínas entre indivíduos e espécies) é neutra e evolui por deriva, e não por seleção: a teoria neutra da evolução molecular, publicada na Nature em 1968.
Efeito gargalo e efeito do fundador: dois cenários da deriva
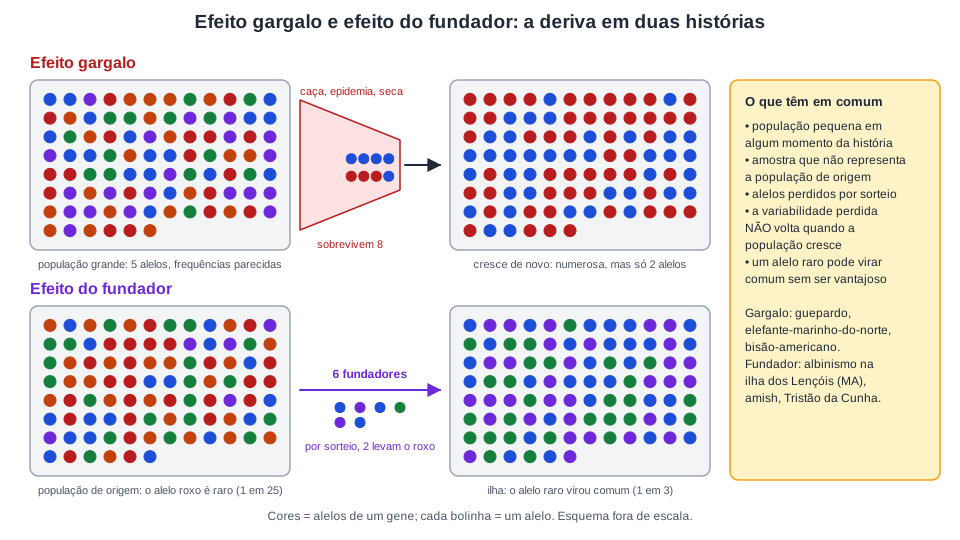
No efeito gargalo, uma população grande despenca (caça, epidemia, seca, destruição do hábitat) e a amostra que sobrevive não representa a original: alelos se perdem, e a população que depois cresce de novo carrega pouca variação, mesmo que volte a ser numerosa. No efeito do fundador, poucos indivíduos colonizam um lugar novo (uma ilha, um fragmento, uma comunidade isolada) e levam consigo frequências tortas: um alelo raro na população de origem pode ser comum entre os fundadores por sorteio, e a nova população nasce com ele em alta frequência. Os dois são deriva: a diferença é só a história (uma população que encolheu; uma população que começou pequena). Nenhum dos dois garante um resultado específico; os dois tornam o acaso decisivo.
Gargalo (em cima) e fundador (embaixo). Nos dois casos a população que cresce depois é numerosa e pobre em variação, e um alelo raro pode ter virado comum por sorteio. Cada bolinha é um alelo; esquema fora de escala. Diagrama autoral.
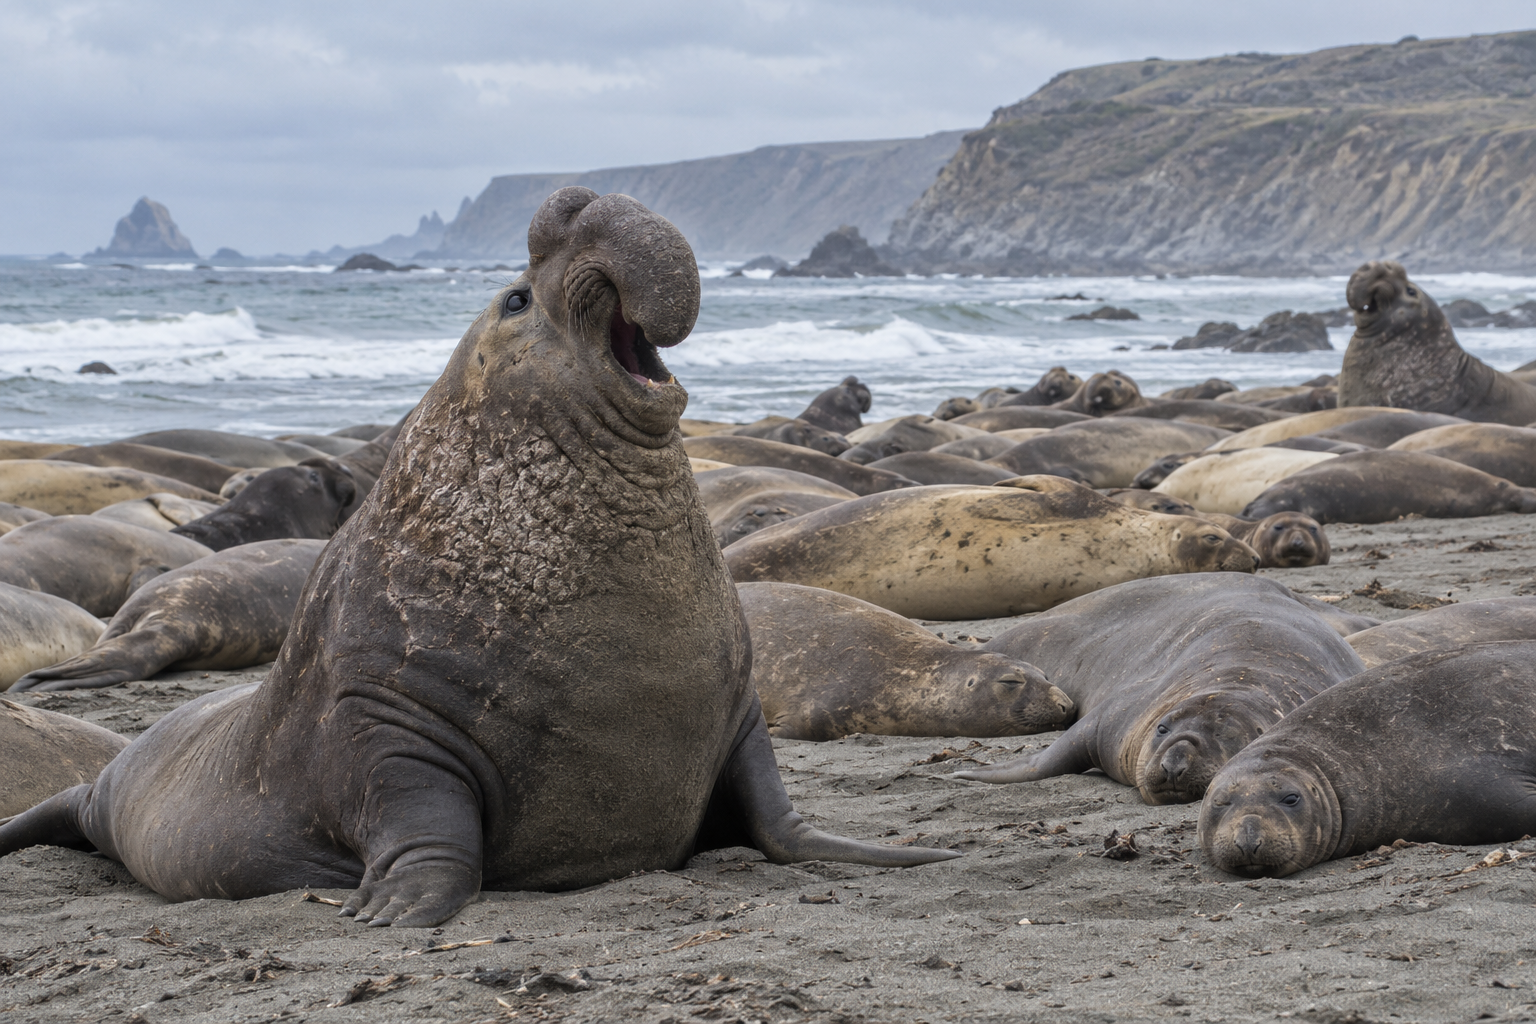
Gargalos documentados. O guepardo (Acinonyx jubatus) é o caso clássico: em 1983, Stephen O’Brien e colaboradores encontraram, em 55 guepardos sul-africanos, os mesmos alelos em cada um dos 47 genes de enzimas analisados, uma uniformidade sem paralelo entre felinos, e em 1985 mostraram que enxertos de pele entre guepardos não aparentados não eram rejeitados, sinal de que até os genes de histocompatibilidade (MHC), os mais variáveis dos mamíferos, eram quase idênticos; um surto de peritonite infecciosa felina matou grande parte de uma colônia em 1983, enquanto o mesmo vírus mal adoece gatos domésticos. Os autores atribuíram a uniformidade a um gargalo severo no passado da espécie. O elefante-marinho-do-norte (Mirounga angustirostris) foi caçado no século XIX até restarem, segundo a simulação de Rus Hoelzel e colaboradores (1993), menos de 30 animais; hoje são dezenas de milhares, mas com dois únicos tipos de DNA mitocondrial numa região em que a espécie irmã do sul, que nunca caiu abaixo de 1 000 animais, tem 23. O bisão-americano, de muitos milhões em meados do século XIX, chegou perto da extinção na década de 1880; os bisões das planícies de hoje descendem de menos de 100 fundadores, e boa parte dos rebanhos carrega ancestralidade de gado por cruzamentos feitos pelos fazendeiros que os salvaram (Philip Hedrick, Journal of Heredity, 2009).
Fundadores documentados. Na ilha dos Lençóis, no Maranhão, Newton Freire-Maia e colaboradores contaram, num estudo publicado em 1978, 18 albinos nascidos numa população pequena e isolada, o que correspondia a uma prevalência de cerca de 3 %, e concluíram que a frequência alta se devia à deriva, sem seleção mensurável contra o alelo. Foi esse caso que o PAS 3 de 2015 (item 77) usou num item de múltipla escolha: o texto-base descrevia “uma localidade relativamente fechada”, “formada por migrantes portugueses”, com cerca de 3 % de albinos contra uma taxa mundial muito menor, onde “todos os indivíduos albinos apresentam o mesmo alelo mutado”, e perguntou como explicar a frequência maior de albinos; a resposta foi “o efeito do fundador, um tipo de deriva genética observado quando o número de fundadores é pequeno”. As outras opções davam à seleção natural um mérito que ela não tem (albinismo não protege de nada numa ilha de sol), falavam em seleção sexual ou em caracteres adquiridos. Uma revisão de 2023 identificou 18 aglomerados de albinismo em comunidades isoladas do Brasil, sete no Nordeste e sete em comunidades indígenas, e apontou isolamento, endogamia e efeito do fundador como a explicação mais plausível. Entre os amish da Antiga Ordem do condado de Lancaster, na Pensilvânia, Victor McKusick descreveu em 1964 a síndrome de Ellis-van Creveld (um nanismo recessivo com dedos a mais), que ocorre em 1 em 60 000 a 200 000 nascimentos no mundo e é muito mais comum naquela comunidade, descendente de poucas famílias fundadoras. E a ilha de Tristão da Cunha, no Atlântico Sul, cuja população descende de apenas 28 fundadores, tem 36 % de asmáticos (Duffy e colaboradores, 2019).
Fluxo gênico: a migração mistura e homogeneíza
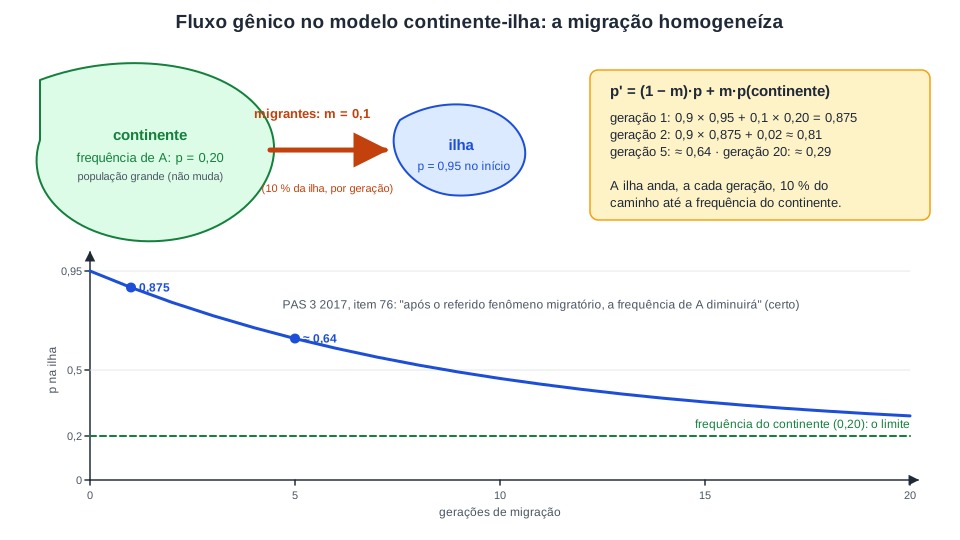
Quando indivíduos (ou gametas, como o pólen) entram numa população e se reproduzem, trazem alelos de fora: é o fluxo gênico. A conta mais simples trata a população receptora como uma ilha que recebe, a cada geração, uma fração m de migrantes vindos de um continente onde a frequência do alelo é pM. A nova frequência é a média ponderada:
p′=(1−m)p+mpM.
Exemplo resolvido: a imigração do PAS 3 de 2017 em números. O texto-base dizia que a população hipotética (p=0,95, q=0,05), depois de 100 gerações em equilíbrio, foi “exposta à imigração de uma população com alta frequência do alelo recessivo a”. O item 76 afirmou que, “após o referido fenômeno migratório, a frequência de A diminuirá”, e o gabarito foi certo. Dê números: se os migrantes têm pM=0,20 e passam a ser 10 % da população (m=0,1), então p′=0,9×0,95+0,1×0,20=0,855+0,020=0,875. A frequência de A caiu de 0,95 para 0,875 numa geração, e a de a subiu de 0,05 para 0,125. O fluxo tem direção: puxa a população receptora para a frequência de quem chega.
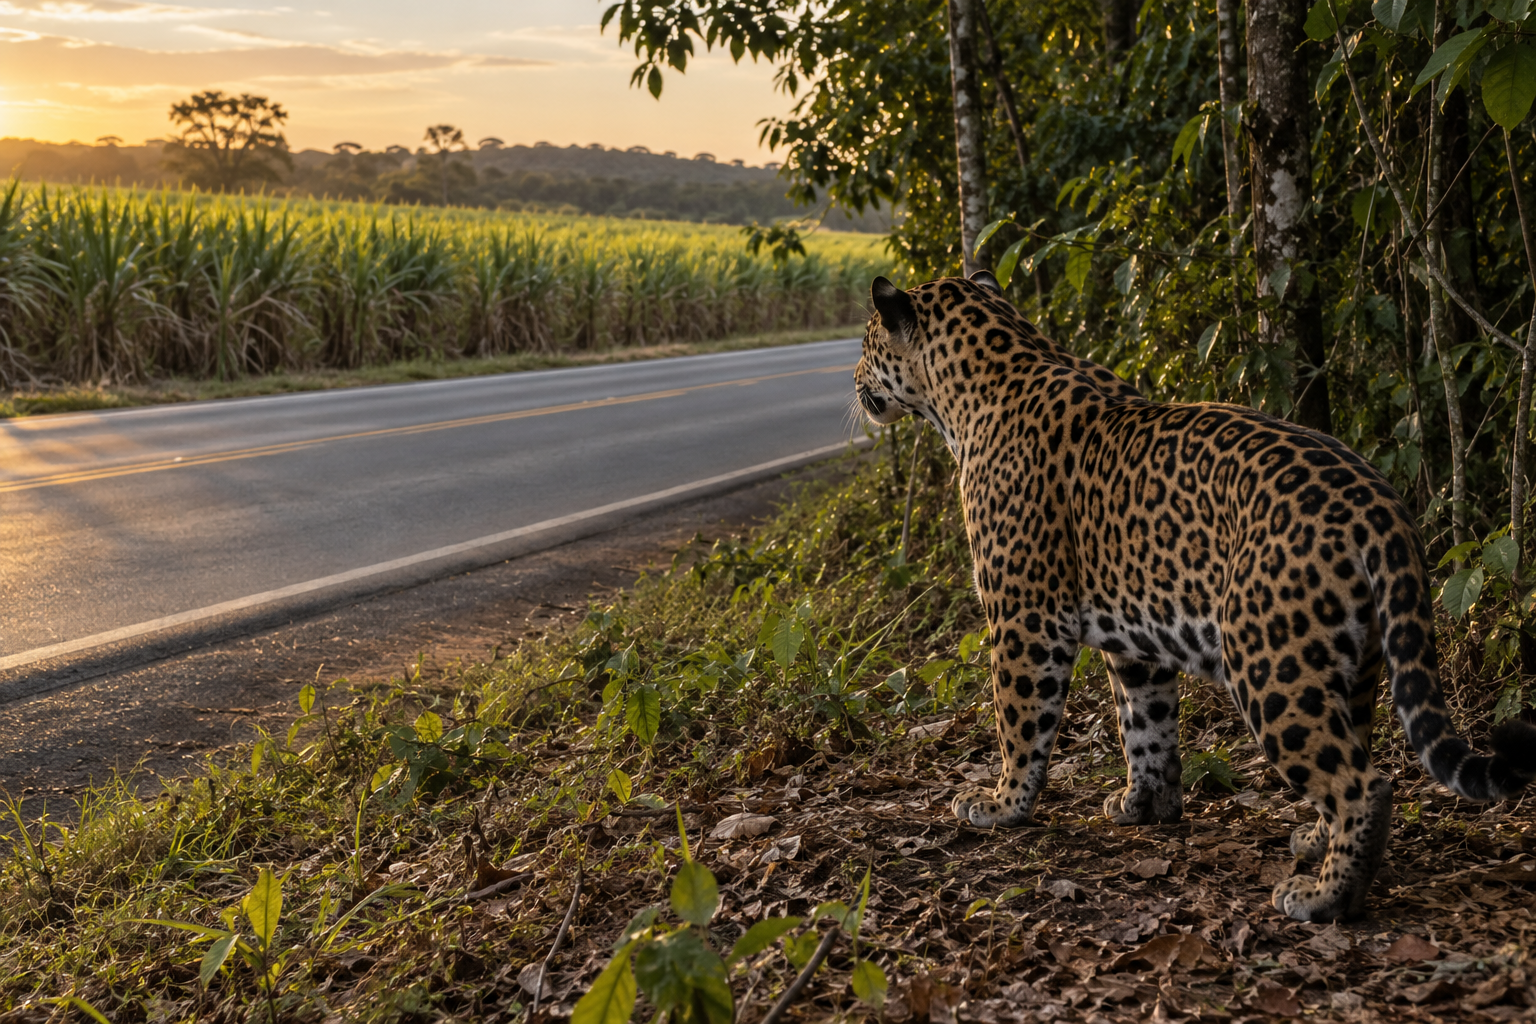
Daí o efeito mais importante do fluxo gênico: ele homogeneíza as populações que se trocam. Duas populações que trocam migrantes a cada geração não conseguem se diferenciar muito, por mais que a deriva e a seleção local tentem; por isso o fluxo gênico é a força que trabalha contra a especiação (página de evidências da evolução e especiação). E daí a resposta ao erro “migração sempre aumenta a variabilidade”: depende. Para a população receptora, migrantes trazem alelos que ela não tinha (variabilidade sobe); para o conjunto das populações, o fluxo apaga as diferenças entre elas (a diversidade entre populações cai). Para a conservação, a lição é o inverso da deriva: um corredor que restabelece o fluxo entre fragmentos devolve alelos perdidos e dilui a endogamia. A Lei do Sistema Nacional de Unidades de Conservação define os corredores ecológicos como porções que ligam unidades de conservação e possibilitam o fluxo de genes e o movimento da biota entre elas. Um estudo de 2010 com 13 marcadores de microssatélites em onças-pintadas de quatro remanescentes de Mata Atlântica encontrou diferenciação marcada entre eles e perda recente de alelos em cada um, atribuída à deriva em populações isoladas por paisagens que a onça já não atravessa (Haag e colaboradores, Molecular Ecology). A fragmentação dos biomas e seus efeitos ecológicos estão nas páginas de impactos ambientais e do Cerrado.
Modelo continente-ilha. A cada geração, a ilha recebe 10 % de migrantes com frequência 0,20, e sua frequência de A anda uma fração do caminho até a do continente. Com migração contínua, a ilha acaba igual ao continente: o fluxo gênico homogeneíza. Diagrama autoral.
Acasalamento não aleatório e endogamia: muda o genótipo, não o alelo
A última condição é a mais sutil. Se os indivíduos escolhem parceiros parecidos consigo (acasalamento preferencial) ou cruzam com parentes (endogamia ou consanguinidade), os gametas deixam de se encontrar ao acaso. O efeito sobre a conta é preciso: a frequência alélica não muda (ninguém nasce nem morre a mais por causa da escolha de parceiro), mas a distribuição dos genótipos sim: sobem os homozigotos, descem os heterozigotos. O coeficiente de endogamiaF mede a probabilidade de os dois alelos de um indivíduo serem cópias do mesmo alelo de um ancestral comum; os filhos de primos em primeiro grau têm F=1/16. Com endogamia, as frequências genotípicas passam a ser p2+Fpq para AA, 2pq(1−F) para Aa e q2+Fpq para aa.
Exemplo resolvido: o risco numa união entre primos. Para uma doença recessiva com q=0,02 (como a fibrose cística), o risco de um filho afetado em casais sem parentesco é q2=0,0004, 1 em 2 500. Para um casal de primos em primeiro grau, é q2+Fpq=0,0004+161×0,98×0,02=0,0004+0,0012=0,0016, 1 em 625: quatro vezes maior. Quanto mais raro o alelo, maior a razão entre os dois riscos, porque Fpq cai com q enquanto q2 cai com q2. Esse aumento de homozigose é o que se chama depressão endogâmica: a queda de sobrevivência e fertilidade numa população endogâmica, porque alelos recessivos prejudiciais, antes escondidos em heterozigotos, passam a aparecer em dose dupla. Em populações humanas, a consanguinidade é um fato social e geográfico (comunidades isoladas, tradições de casamento entre primos), e o aconselhamento genético trata o tema com os números acima, sem juízo sobre as pessoas; a probabilidade individual de cada casal está na página de leis de Mendel. Em conservação, a depressão endogâmica é a razão de programas de cativeiro cruzarem animais de origens diferentes e evitarem acasalar parentes.
Uma consequência indireta fecha o raciocínio: a endogamia não muda p sozinha, mas, ao expor recessivos em homozigose, entrega-os à seleção. Por isso populações pequenas e endogâmicas tendem a perder alelos deletérios mais depressa, ao custo de muitos indivíduos afetados no caminho.
Variabilidade genética é o que uma população tem para responder ao futuro
Por que a conservação se preocupa tanto com alelos que ninguém vê? Porque a variabilidade genética é a matéria-prima da seleção: uma população com muitos alelos tem mais chance de conter, já pronta, a variante que sobrevive a uma doença nova, a uma seca mais longa ou a um clima mais quente. O guepardo é a demonstração: com genes de histocompatibilidade quase idênticos entre indivíduos, um vírus que mal incomoda gatos domésticos dizimou uma colônia inteira. O PAS 3 de 2014 (item 78), num texto sobre o complexo principal de histocompatibilidade, o conjunto de genes mais variável do genoma humano, deu como certo que “a presença de muitos alelos de MHC diferentes na população humana foi determinada pela história demográfica e seletiva de algumas populações”: quantos alelos uma população carrega é resultado do seu tamanho e das suas migrações (demografia) e das pressões de patógenos (seleção). E o PAS 3 de 2009 (item 94), num texto sobre a seleção de embriões para evitar uma mutação no gene BRCA1, deu como errado que “a eliminação, em determinada população, do gene BRCA1 mutado aumenta a variabilidade genética entre os indivíduos dessa população”: retirar um alelo é ter menos versões do gene, não mais. Eliminar um alelo, por seleção, por deriva ou por decisão humana, sempre reduz a variabilidade.
Tamanho efetivo, população mínima viável e o que a conservação mede
O tamanho efetivo (Ne) de uma população é o número de indivíduos de uma população ideal que perderia variabilidade por deriva na mesma velocidade que a população real; como nem todos os indivíduos se reproduzem, e as contribuições são desiguais, Ne costuma ser bem menor que o número contado. A população mínima viável é o menor tamanho que dá a uma população uma probabilidade alta de persistir por um prazo longo, somando os riscos demográficos, ambientais e genéticos. Os geneticistas de conservação medem o que esta página ensinou a calcular: heterozigosidade (a fração esperada de heterozigotos, 2pq somada sobre os genes), riqueza alélica (quantos alelos por gene) e diferenciação entre fragmentos.
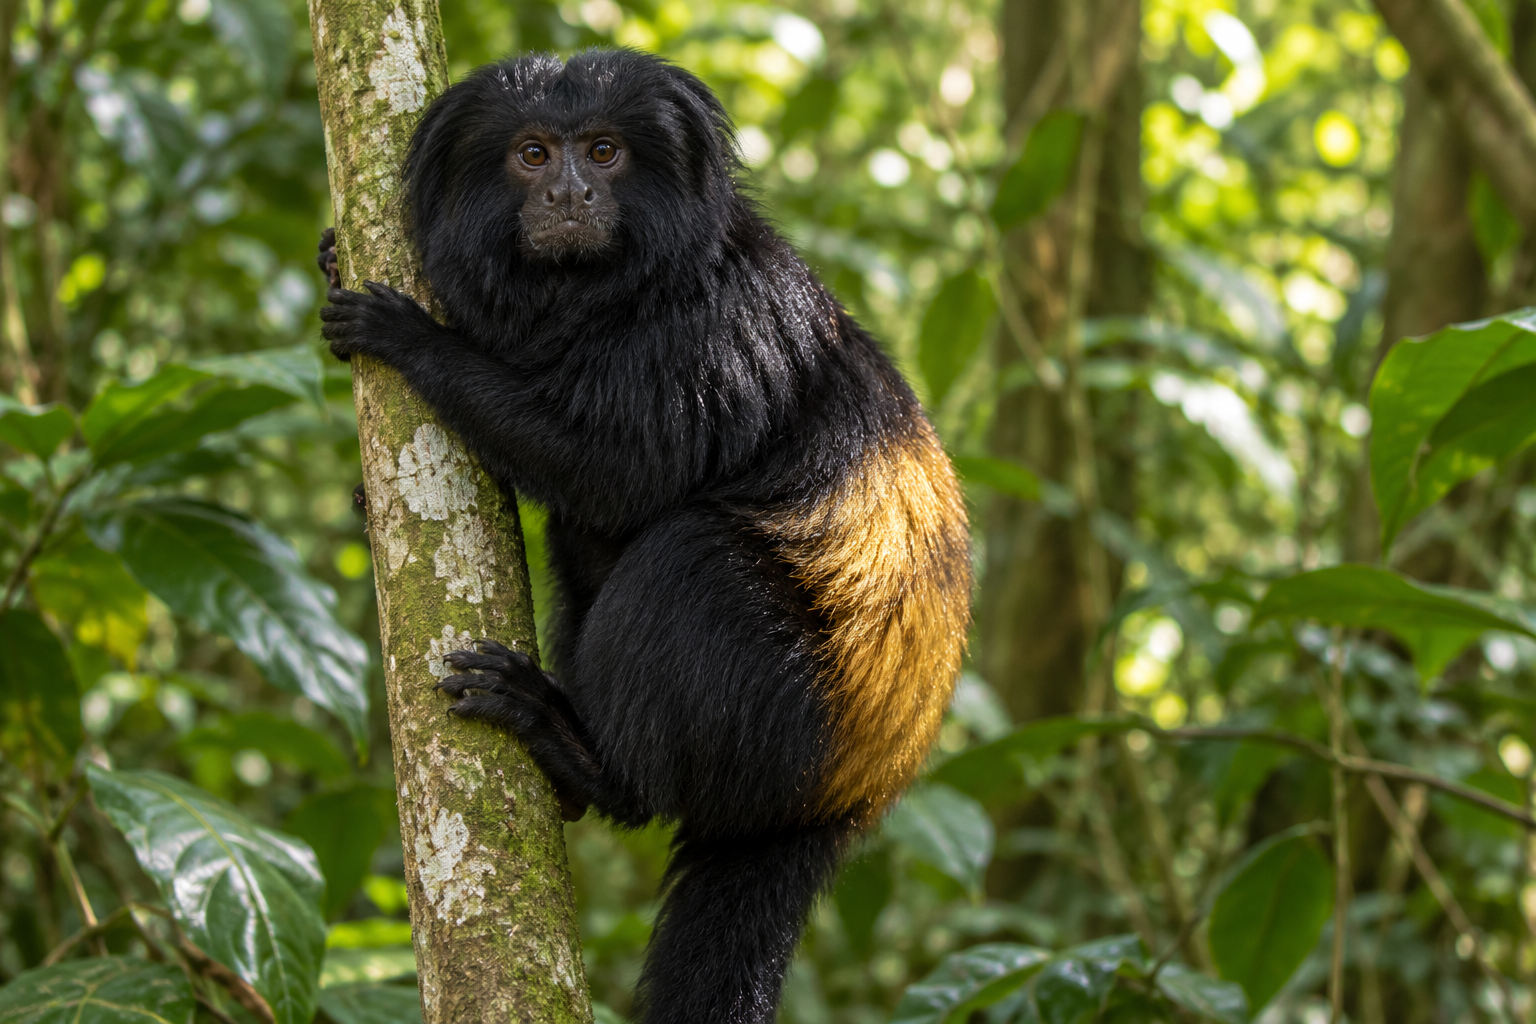
Três espécies brasileiras mostram a aplicação. O mico-leão-preto (Leontopithecus chrysopygus), primata endêmico da Mata Atlântica e alvo do Plano de Ação Nacional para a Conservação dos Primatas da Mata Atlântica e das Preguiças-de-coleira (ICMBio), tem um programa de reprodução em cativeiro cujo monitoramento genético, publicado em 2025, mostrou que o programa conseguiu evitar a perda de heterozigosidade, mas não a redução da riqueza alélica: alelos raros se perderam com a morte de alguns animais, e a população selvagem de origem, apesar de pequena, reteve mais diversidade do que os grupos de cativeiro na projeção para os próximos 100 anos. A onça-pintada de remanescentes de Mata Atlântica, como visto, já exibe diferenciação entre fragmentos e perda de alelos por deriva. E o lobo-guará, do Cerrado, teve seu próprio Plano de Ação Nacional, cujo objetivo era reverter o declínio populacional da espécie na sua área de distribuição; em fragmentos cercados de lavoura, a população local de poucas dezenas de animais é exatamente o cenário em que a deriva corrói alelos a cada geração. A resposta técnica a tudo isso tem três frentes: aumentar o tamanho das populações, reconectá-las por corredores (fluxo gênico) e, no cativeiro, manejar os cruzamentos para maximizar a variabilidade retida. Para plantas cultivadas e seus parentes silvestres, há uma quarta: os bancos de germoplasma. O Banco Genético da Embrapa, em Brasília, inaugurado em 2014, tem capacidade para conservar até 750 mil amostras de sementes, além de material em nitrogênio líquido e coleções de DNA: é variabilidade guardada fora da população, para quando a lavoura precisar de um alelo que a seleção artificial descartou.
O teste do pezinho e a frequência de um alelo
O Programa Nacional de Triagem Neonatal rastreia, no sangue colhido do calcanhar do recém-nascido, a doença falciforme e outras hemoglobinopatias. Como a eletroforese distingue AS de AA e de SS, a triagem não encontra só os doentes: encontra também os bebês com o traço falciforme. É um censo genético em escala de país. No Mato Grosso do Sul, entre 35 858 recém-nascidos triados, o traço falciforme apareceu em 1,9 % (Cândido-Bacani e colaboradores, 2022), e a incidência foi maior nos municípios com maior proporção de pessoas autodeclaradas pretas, como se espera de um alelo cuja frequência reflete a ancestralidade africana. Com 2pq≈0,019, a frequência do alelo S naquele estado fica em torno de 1 %, e a de doentes esperada, q2, em torno de 1 em 10 000.
Genética das populações humanas: migração, mistura e o que “raça” não é
A espécie humana é um caso de genética de populações como qualquer outro, com uma história marcada por migrações e por mistura. No Brasil, três raízes ancestrais, ameríndia, europeia e africana, se combinaram em cinco séculos, e a genética mede essa combinação pessoa a pessoa. Em 2011, Sérgio Pena e colaboradores (PLoS ONE) estimaram, com 40 marcadores de ancestralidade, as proporções genômicas de 934 brasileiros das quatro regiões mais populosas e, ponderando pelas categorias de cor do censo, chegaram a estimativas regionais: a ancestralidade europeia foi predominante em todas as regiões, de 60,6 % no Nordeste a 77,7 % no Sul; a africana foi maior no Nordeste (30,3 %), seguida pelo Sudeste (18,9 %), pelo Sul (12,7 %) e pelo Norte (10,9 %); a ameríndia foi maior no Norte (19,4 %). O título do artigo diz o resultado: a ancestralidade genômica das regiões é “mais uniforme do que o esperado”. Dois achados do mesmo estudo mostram por que cor e ancestralidade não são a mesma coisa: pessoas autodeclaradas pardas no Norte tinham, em média, 68,6 % de ancestralidade europeia, enquanto no Sul tinham 44,4 % de ancestralidade africana; a mesma palavra do censo descreve composições genéticas muito diferentes conforme a região.
Esses números precisam ser lidos com cuidado, e a leitura é a mesma da página de evidências da evolução: “raça” não é uma categoria genética na espécie humana. A variação genética humana é majoritariamente dentro de qualquer grupo, não entre grupos; as frequências alélicas mudam de modo gradual e contínuo ao longo da geografia, sem fronteiras; e marcadores de ancestralidade estimam de onde vieram os ancestrais de uma pessoa em média, não a que “raça” ela pertence. O alelo S é um bom exemplo: é mais frequente entre pessoas de ascendência africana porque surgiu e foi mantido pela malária na África, mas o gene da hemoglobina e os genes da pigmentação da pele são independentes, e séculos de mistura o espalharam por toda a população brasileira, como a triagem neonatal mostra. Nas comunidades isoladas, a história é outra: a revisão de 2023 sobre aglomerados de albinismo encontrou sete deles em comunidades do Nordeste de ancestralidade predominantemente africana e sete em comunidades indígenas, sobretudo entre os Kaingang, e explicou todos pelo mesmo trio, isolamento, endogamia e efeito do fundador.
Um último marcador, curioso e útil: em muitas sociedades os sobrenomes passam de pai para filho como um alelo ligado ao Y, e a frequência de casais com o mesmo sobrenome (isonímia) é usada por geneticistas como estimativa indireta do grau de endogamia de uma população.
Ler tabelas, gráficos e mapas de frequência
Os itens de genética de populações vêm em três formatos de dado. O primeiro é a tabela de contagens (genótipos ou fenótipos), tratada na seção sobre o teste do equilíbrio: decida se o dado é alelo, genótipo ou fenótipo; calcule p pela contagem; compare com p2, 2pq, q2.
O segundo é o gráfico de p ao longo das gerações. A forma da curva identifica a força. Uma reta horizontal é equilíbrio. Uma curva que sobe ou desce de modo contínuo e regular, em todas as populações do gráfico na mesma direção, é seleção (ou fluxo gênico constante). Curvas que oscilam de modo errático, diferentes de uma população para outra ainda que todas tenham começado iguais, e que terminam em 0 ou em 1, são deriva; quanto mais pequena a população, mais bruscas as oscilações e mais cedo a fixação. Uma curva que converge para um valor intermediário a partir de pontos de partida diferentes é o polimorfismo balanceado da vantagem do heterozigoto. Numa simulação de deriva com populações de 10, 100 e 1 000 indivíduos, o gráfico dos 10 é o das linhas que batem no teto e no chão; o dos 1 000 é o das linhas quase planas.
O terceiro é o mapa de frequências. A frequência do alelo S na África e no Mediterrâneo acompanha a distribuição histórica da malária, como o mapa de Piel e colaboradores confirmou: onde a seleção pelo parasita foi mais forte, o alelo é mais comum. As frequências dos alelos do sistema ABO variam gradualmente pelo mundo, sem fronteiras nítidas, como se espera de populações ligadas por fluxo gênico e com histórias de migração diferentes. Para ler um mapa desses, pergunte sempre o que a cor mede (frequência do alelo, do genótipo ou do fenótipo) e qual força explicaria o padrão: gradientes suaves sugerem migração e deriva; coincidência com um fator ambiental sugere seleção; manchas isoladas de alta frequência sugerem efeito do fundador.
O dilema de Hardy: um matemático que não queria se intrometer
Hardy abriu sua carta à Science dizendo que relutava “em me intrometer numa discussão sobre assuntos de que não tenho conhecimento especializado” e que esperava que “o ponto muito simples” que queria fazer já fosse familiar aos biólogos. A carta tem pouco mais de uma página, trata a objeção de Yule com “um pouco de matemática do tipo tabuada” e termina observando que os pequenos desvios casuais de cada geração não acumulam tendência nenhuma. Um matemático puro, chamado por um amigo biólogo (Punnett) a resolver uma dúvida de salão, deixou à biologia o seu modelo nulo.
Os erros que os itens plantam
Os erros marcados com ano e item apareceram em itens reais ou são a inversão direta de um gabarito; os demais são os que a conta desta página desmonta. A versão correta vem em seguida.
“O alelo dominante é o mais frequente.” Dominância é expressão no heterozigoto; frequência é contagem. Independentes (2010/56).
“O recessivo tende a desaparecer.” Em equilíbrio, nada muda; sob seleção, o recessivo raro se esconde em heterozigotos e cai cada vez mais devagar (de 0,01 a 0,005 em 100 gerações com letalidade total).
“A frequência de um alelo raro cai com o tempo só por ser rara.” Mantidas as condições, as frequências não mudam em cem gerações (2017/74).
“Seleção e deriva mantêm o equilíbrio.” São exatamente o que o desfaz (2020/89). Equilíbrio é ausência das forças.
“q é a frequência dos indivíduos recessivos.”q é a fração dos alelos; os indivíduos aa são q2. Com q=0,3: 9 % de indivíduos (2020/90 cobrou o 42 % dos heterozigotos).
“2pq é a frequência dos doentes.”2pq são os portadores, que não têm a doença recessiva; os doentes são q2 (2025/41: 2 % de alelo S dá 4 % de heterozigotos, não 4 % de doentes).
“p2 é a frequência do alelo dominante.”p2 é a fração de homozigotos dominantes; o alelo é p.
“Em equilíbrio não há heterozigotos.” Em equilíbrio os heterozigotos são 2pq, até 50 % da população.
“Hardy-Weinberg descreve as populações reais.” É um modelo nulo: nenhuma população real cumpre as cinco condições, e é por isso que ele serve para medir desvios.
“Deriva é uma seleção fraca.” Deriva não tem direção: fixa alelos neutros ou piores. Seleção tem direção.
“Efeito gargalo aumenta a variabilidade.” Reduz: a amostra sobrevivente perde alelos, e eles não voltam quando a população cresce (guepardo, elefante-marinho).
“Migração sempre aumenta a variabilidade.” Para a população receptora, em geral sim; para o conjunto das populações, apaga diferenças. Depende de que variabilidade se fala.
“Endogamia muda a frequência alélica.” Muda os genótipos (mais homozigotos), não p.
“O indivíduo evolui.” Evolução é mudança das frequências da população entre gerações; o indivíduo morre com o genótipo com que nasceu.
“Populações pequenas se adaptam mais depressa.” Perdem variabilidade por deriva e sofrem depressão endogâmica; têm menos matéria-prima para a seleção.
“Eliminar um alelo ruim aumenta a variabilidade.” Reduz (2009/94).
“Equilíbrio seletivo é equilíbrio de Hardy-Weinberg.” No polimorfismo balanceado as frequências ficam constantes por causa da seleção, não por ausência dela.
Como a prova cobrou: treze itens, uma conta
O PAS/UnB cobrou genética de populações em treze itens válidos da terceira etapa entre 2009 e 2025, em nove provas diferentes: 2009 (item 94), 2010 (56), 2014 (78), 2015 (77, tipo C), 2016 (106, tipo C), 2017 (74, 75 e 76), 2020 (88, 89 e 90), 2022 (65, resposta construída) e 2025 (41). Oito pedem conceito (condições do equilíbrio, papel das forças, dominância e frequência, variabilidade, efeito do fundador); cinco pedem a conta, e em todas elas o número a calcular foi 2pq ou derivou dele: 95 heterozigotos (2017/75), 42 % (2020/90), 5 000 (2016/106), 768 (2022/65) e “aproximadamente 4 %” (2025/41). Entre esses treze não houve item de resposta numérica tipo B; o formato numérico apareceu como múltipla escolha e como resposta construída. A fórmula sempre veio no enunciado ou no texto-base. O que a prova testa é o uso: ler se o dado é alelo ou fenótipo, tirar a raiz quando for fenótipo recessivo, não esquecer o 2 de 2pq, converter fração em número de indivíduos e, nos itens de julgamento, lembrar que equilíbrio é a ausência das forças.
O essencial em meia página
Unidade e definição. A evolução acontece com a população (pool gênico), não com o indivíduo; evoluir é mudar as frequências alélicas entre gerações.
Contar. Alelos somam 2N num gene autossômico; p=(2NAA+NAa)/2N = frequência do homozigoto + metade da do heterozigoto; p+q=1. A contagem não exige equilíbrio. Ligado ao X: homens têm um alelo; frequência de homens afetados = q, de mulheres afetadas = q2.
Hardy-Weinberg (1908). População grande, cruzamentos ao acaso, sem mutação, migração ou seleção: p e q não mudam e os genótipos ficam em p2:2pq:q2 em uma geração. É um modelo nulo; a diferença entre observado e esperado mede a evolução.
A conta da prova. Fenótipo recessivo dado: q2→q→2pq (Rh negativo 25 % → q=0,5 → 5 000 heterozigotos em 10 000). Alelo dado: não tire raiz (q=0,3 → 42 % de heterozigotos; q=0,04 → 768 em 10 000). q pequeno: 2pq≈2q (2 % → 4 %). 2pq≤0,5.
Dominante ≠ frequente; recessivo não some. Dominância é expressão; frequência é contagem (2010/56). Alelo raro vive em heterozigotos: qn=q0/(1+nq0) sob letalidade total.
ABO.p+q+r=1; grupo O =r2 (comece por ele); A =p2+2pr; somar O e A dá (p+r)2.
Teste.p pela contagem; esperado p2N, 2pqN, q2N; compare. Déficit de heterozigotos com p intacto: endogamia ou subdivisão.
Forças. Mutação cria (fraca, ao acaso). Seleção tem direção; w; contra recessivo letal, lenta quando raro; vantagem do heterozigoto mantém dois alelos (q∗=s/(s+t); HbS e malária). Deriva: acaso, forte em população pequena (pq/2N; perda de heterozigosidade 1/2N por geração), fixa sem olhar aptidão, reduz variabilidade; gargalo (guepardo, elefante-marinho < 30, bisão < 100 fundadores) e fundador (Lençóis 3 % de albinos; amish; Tristão da Cunha, 28 fundadores). Fluxo gênico: p′=(1−m)p+mpM, homogeneíza, corredores. Endogamia: p fixo, heterozigotos 2pq(1−F), risco q2+Fpq (primos: F=1/16), depressão endogâmica.
Conservação. Eliminar alelo reduz variabilidade (2009/94); MHC variável por história demográfica e seletiva (2014/78); Ne, população mínima viável, heterozigosidade e riqueza alélica; mico-leão-preto, onça em fragmentos, lobo-guará; corredores; Banco Genético da Embrapa (750 mil amostras de sementes).
Humanos. Ancestralidade genômica regional mais uniforme que o esperado (Pena 2011: europeia de 60,6 % a 77,7 %); cor não é ancestralidade; “raça” não é categoria genética; aglomerados de albinismo por isolamento e fundador.
Leitura. Reta horizontal = equilíbrio; curva regular na mesma direção = seleção ou fluxo; oscilação errática até 0 ou 1 = deriva (mais brusca quanto menor N); convergência a valor intermediário = heterozigoto favorecido.
Exercícios temporariamente indisponíveis
Não foi possível consultar o banco de questões. O conteúdo da aula continua disponível.
Flashcards temporariamente indisponíveis
Não foi possível consultar os cartões de revisão.
Genética de populações - Equilíbrio de Hardy-Weinberg
Me Gusta Bio · 12:28
Introdução. Em pouco mais de doze minutos, o professor apresenta o que é a genética de populações (frequências gênicas na população) e o essencial do equilíbrio de Hardy-Weinberg, com a matemática básica que o assunto exige. Corresponde às seções “Contar alelos” e “Hardy-Weinberg: o que acontece se nada acontecer” desta página. Assista antes de ler e, ao fim, refaça sozinho a conta do canteiro de ervilhas (20 AA, 20 Aa, 10 aa) e confira p = 0,6.
Equilíbrio de Hardy-Weinberg - Aula 17 - Módulo II: Genética | Prof. Gui
Prof. Guilherme Goulart - Biologia · 19:56
Aprofundamento. A aula tem capítulos marcados na descrição: definição do equilíbrio (1 min 13 s), fórmulas e aplicação (5 min 28 s) e um exercício resolvido (15 min 13 s). Desenvolve as condições do teorema e a passagem de p e q a p², 2pq e q², conteúdo das seções sobre o teorema e sobre o uso prático (q² → q → 2pq). Pause no exercício, resolva antes do professor e compare com os exemplos do fator Rh e dos pássaros de bico curto desta página.
A deriva genética, efeito gargalo e efeito fundador | Biologia | Khan Academy
Khan Academy Brasil · 7:11
Aplicação. O vídeo, dublado em português pela Khan Academy Brasil, mostra como eventos fortuitos alteram as frequências alélicas em populações pequenas, com o efeito gargalo e o efeito do fundador. É a seção “Deriva genética: o acaso em populações pequenas” desta página. Depois de assistir, releia os casos documentados (guepardo, elefante-marinho, ilha dos Lençóis) e classifique cada um como gargalo ou fundador.
5 exercícios equilíbrio de Hardy e Weinberg
Biologuia - Seu guia de biologia na internet · 25:32
Resolução de questões. Cinco exercícios resolvidos de genética de populações, incluindo, segundo a descrição do autor, frequência gênica e genotípica, identificação de dominância a partir de frequências e um exercício com polialelia (três alelos), que corresponde à seção sobre o sistema ABO desta página. Para cada exercício, pause depois do enunciado, decida se o dado é alelo, genótipo ou fenótipo, resolva e só então veja a resolução.
A genética de populações acompanha variantes hereditárias e suas frequências. Aparência isolada não revela todos os genótipos.O quadro de Punnett de uma população inteira. Em vez de um casal, a urna de gametas: as larguras e alturas são as frequências dos gametas, e as áreas são as frequências dos genótipos. As duas faixas verdes explicam o 2 de 2pq. Áreas em escala. Diagrama autoral.As três frequências genotípicas em função de q. Para alelos raros, a curva verde dos heterozigotos sobe quase como uma reta de inclinação 2 enquanto a laranja dos afetados mal sai do zero: é por isso que portadores são sempre muito mais numerosos que doentes. A fração de heterozigotos nunca passa de 50 %, atingida quando p = q = 0,5. Diagrama autoral.Observado contra esperado. As frequências alélicas (p = q = 0,5) são calculadas a partir da contagem e não dependem de equilíbrio; o que o teorema prevê é como esses alelos deveriam se distribuir em genótipos. A diferença (10 heterozigotos a menos) é o dado que pede explicação: endogamia, subdivisão ou seleção contra heterozigotos. Diagrama autoral.As cinco forças lado a lado. Só a mutação cria alelos; a seleção é a única com direção adaptativa; a deriva é o acaso em população pequena; o fluxo gênico mistura; a endogamia mexe nos genótipos sem mexer na frequência alélica. Diagrama autoral.Dois destinos para um alelo sob seleção. À esquerda, mesmo letal em homozigose, o alelo recessivo demora cada vez mais a cair. À direita, quando o heterozigoto é o genótipo mais apto, a frequência converge para um equilíbrio interno qualquer que seja o ponto de partida: o alelo que mata em dose dupla é mantido. Valores das aptidões hipotéticos; curvas calculadas pelas fórmulas do texto. Diagrama autoral.Simulação de deriva: cinco populações independentes de cada tamanho, todas começando com p = 0,5 e sem seleção. Em populações de 10, alelos se perdem ou se fixam em poucas dezenas de gerações; em populações de 1 000, a frequência quase não sai do lugar. Trajetórias geradas por sorteio binomial com semente fixa. Diagrama autoral.Gargalo (em cima) e fundador (embaixo). Nos dois casos a população que cresce depois é numerosa e pobre em variação, e um alelo raro pode ter virado comum por sorteio. Cada bolinha é um alelo; esquema fora de escala. Diagrama autoral.Modelo continente-ilha. A cada geração, a ilha recebe 10 % de migrantes com frequência 0,20, e sua frequência de A anda uma fração do caminho até a do continente. Com migração contínua, a ilha acaba igual ao continente: o fluxo gênico homogeneíza. Diagrama autoral.Poucos fundadores levam apenas uma amostra das variantes da população de origem. Isso não significa que as variantes retidas sejam superiores.Deriva genética envolve variação aleatória nas frequências entre gerações; seus efeitos podem ser mais intensos em populações pequenas.No modelo diploide, cada indivíduo carrega duas cópias de um locus. Frequências alélicas e genotípicas contam unidades diferentes.Uma redução acentuada pode reter uma amostra limitada de variantes. O modelo ilustra o gargalo, sem representar uma causa única.A contribuição de migrantes ou gametas à reprodução pode transferir variantes entre populações; deslocamento sem reprodução não basta para definir fluxo gênico.Guepardos aceitam enxertos de pele uns dos outros: o gargalo que a espécie atravessou deixou até os genes de histocompatibilidade quase idênticos.O teste do pezinho identifica doentes e portadores do traço falciforme: um censo genético em escala de país, de onde sai a frequência do alelo S.Variabilidade guardada fora da população: um banco de germoplasma conserva alelos que a seleção artificial descartou e que a lavoura pode precisar de volta.Dezenas de milhares de animais hoje, menos de 30 no fim do século XIX: a população se recuperou, a variabilidade genética não.No mico-leão-preto, o programa de cativeiro manteve a heterozigosidade mas perdeu alelos raros: riqueza alélica e heterozigosidade são medidas diferentes da variabilidade.Fragmentos que a onça já não atravessa viram populações pequenas e isoladas, cada uma perdendo alelos por deriva; o corredor ecológico é a resposta que restabelece o fluxo gênico.Uma comunidade pequena e fechada, fundada por poucas famílias: na ilha dos Lençóis, o efeito do fundador levou o albinismo a cerca de 3 % da população.
Rota PAS 3
Origens da vida e evolução: quem seleciona o que vive · PAS 3
Fontes desta página
Os materiais abaixo contribuíram para a explicação e os exemplos deste assunto.
Rota PAS 3 — Origens da vida e evolução: quem seleciona o que vive · Antes de começar (ideias 1, 2 e 4; exemplo-guia da contagem de alelos no canteiro; checagem); Genética de populações: a evolução medida em frequências (conceito, tabela q = 0,3, exemplo da anemia falciforme, itens reais 2020/88, 2020/89, 2017/74–76, 2022/65 tipo D, 2010/56, 2009/94, 2014/78, 2015/77 tipo C, 2016/106 tipo C, armadilha q/q²/2pq, checagem); Leia como na prova (item 2020/90 e seu texto-base); Resolvidos (o limiar de Hardy-Weinberg; o censo dos heterozigotos); Exercícios 6–12 (texto-base do lobo-guará) e 14; Banco de treino T19–T24
Fonte principal dos itens reais e dos exemplos. As seções sobre origem da vida, Lamarck/Darwin, evidências, seleção em ação (inclusive o bloco do cupuaçu, exceto o item 2020/90) e especiação pertencem a outras páginas.
Rota PAS 3 — Exercícios e banco de treino de Origens da vida e evolução, gabaritos · Itens 6 a 12 (texto-base do lobo-guará; item 11 tipo B, gabarito 084) e 14
Conferência dos gabaritos dos exercícios usados como modelo das questões autorais.
Rota PAS 3 — Resoluções dos exercícios do capítulo · Item 11 (2pq × 2 000 = 840; marcação 084)
Conferência da conversão de fração em número de indivíduos. Fontes externas (não estão no repositório): Hardy, Science 28:49–50, 10 jul. 1908 (texto integral lido na reprodução de esp.org) e Edwards, Genetics 179:1143, 2008 (Weinberg, Stuttgart, 13 jan. 1908; Yule 1902 e Pearson 1904); Wright, Genetics 16:97, 1931; Kimura, Nature 217:624, 1968; Allison, BMJ 1:290, 1954; Piel et al., Nat Commun 1:104, 2010; O'Brien et al., Science 221:459, 1983 e Science 227:1428, 1985; Menotti-Raymond & O'Brien, PNAS 90:3172, 1993; Hoelzel et al., J Hered 84:443, 1993; Hedrick, J Hered 100:411, 2009; Freire-Maia et al., Hum Hered 28:401, 1978 (Lençóis, ~3 % de albinos, deriva); Moura et al., Genet Mol Biol 46:e20230164, 2023 (prevalência mundial 1/17 000; 18 aglomerados); McKusick et al., Bull Johns Hopkins Hosp 115:306, 1964 e MedlinePlus Genetics (Ellis-van Creveld, 1/60 000–200 000; fibrose cística, 1/2 500–3 500); Duffy et al., Twin Res Hum Genet 22:277, 2019 (Tristão da Cunha, 28 fundadores, 36 % asmáticos); Haag et al., Mol Ecol 19:4906, 2010 (onças em fragmentos); Javarotti et al., PLoS ONE 20:e0322817, 2025 (mico-leão-preto ex situ); Pena et al., PLoS ONE 6:e17063, 2011 (ancestralidade por região); Cândido-Bacani et al., Einstein 20:eAO6535, 2022 (traço falciforme 1,9 % em MS); Ministério da Saúde, Doença falciforme (incidência 3,75/10 000, 2014–2020); ICMBio, PAN Lobo-guará e PAN Primatas da Mata Atlântica; Embrapa, Banco Genético (750 mil amostras); Lei 9.985/2000 (corredores ecológicos).